Ácidos Grasos en la Nutrición Porcina: Dinámica Digestiva, Salud Intestinal y Rendimiento Productivo
ácidos grasos en la nutrición porcina: La optimización de la digestibilidad y absorción lipídica en cerdos depende de la madurez enzimática, la relación entre ácidos grasos insaturados y saturados, la longitud de la cadena y el uso estratégico de emulsificantes nutricionales para maximizar la eficiencia energética. Mantener relación u/s de 2,25-2,50 en juveniles y 2,0-2,25 en adultos. Administrar. [1][2][3][4][5][36][20][17][13][14][31][37][47][49][50]
- Desafío Técnico y Causa Primaria: Guía técnica sobre ácidos grasos en la nutrición porcina: estrategias de suplementación, manejo de la oxidación, calidad de canal y salud en cerdos.
- Impacto Cuantitativo: Cada 1% de grasa suplementaria reduce el alimento por unidad de ganancia en 2%. La grasa peroxidada reduce el consumo y la respuesta productiva en aproximadamente 1% cada uno. La suplementación con AGCM (Vigorol®) en lechones ≤1250g reduce su riesgo de muerte 1,94 veces.
- Protocolo de Intervención Verificado: Mantener relación u/s de 2,25-2,50 en juveniles y 2,0-2,25 en adultos. Administrar 10g/día de ácido linoleico y alfa-linolénico en cerdas reproductoras. Administrar 3ml vía oral de un suplemento de AGCM (Vigorol®) durante los primeros 3 días en lechones ≤1250g. Evaluar oxidación mediante ácidos grasos libres e índice de anisidina.
Digestibilidad y Absorción de Grasas en Cerdos: Factores Clave y Eficiencia Energética
La optimización de la digestibilidad y absorción lipídica en cerdos depende de la madurez enzimática, la relación entre ácidos grasos insaturados y saturados, la longitud de la cadena y el uso estratégico de emulsificantes nutricionales para maximizar la eficiencia energética. [1][2][3][4]
Parámetros y factores determinantes de la digestibilidad de fuentes lipídicas en porcinos
| Categoría o Fuente Lipídica | Parámetro o Característica Crítica | Impacto Fisiológico y Digestivo | Referencia |
|---|---|---|---|
| Lechones en destete temprano (<28 días) | Baja secreción de lipasa endógena | Baja digestibilidad de ácidos grasos de cadena larga; digestión eficiente de AGCM vía vena porta sin requerir transporte quilomicrónico complejo | [1], [5], [4] |
| Dietas juveniles de crecimiento | Relación u/s mínima de 2,25 a 2,50 | Permite la adecuada emulsificación por sales biliares y contrarresta la baja digestibilidad de grasas saturadas como sebo o aceite de palma | [2] |
| Dietas de cerdos adultos | Relación u/s mínima de 2,0 a 2,25 | Mantiene la digestibilidad de grasas con mayor tolerancia a inclusiones de fuentes saturadas | [2] |
| Aceites acidulados | Hasta 50% de ácidos grasos libres (AGL) | Disminución marcada en el aprovechamiento de la energía dietaria en comparación con triglicéridos intactos | [6] |
| Aceite de soya comercial | Digestibilidad cercana al 90% | Aporte energético eficiente y mejora predictible y lineal en la digestibilidad aparente de aminoácidos | [6], [7] |
Madurez Enzimática y Dinámica de la Digestión Ileal
Durante las primeras etapas del desarrollo, la capacidad fisiológica del lechón impone restricciones severas al procesamiento de lípidos. La actividad de la enzima lipasa pancreática es baja antes de los 21 a 28 días de vida, lo que restringe drásticamente la digestibilidad de la grasa en la etapa posdestete temprana y hace perjudicial el exceso de grasa dietética en la ración. Por consiguiente, sobrecargar el tracto gastrointestinal en esta ventana crítica induce desbalances entéricos y compromete el aprovechamiento global del alimento disponible. [1][5]
Para una estimación precisa del valor nutritivo de los lípidos, la digestibilidad ileal es un estimador del aprovechamiento digestivo más confiable que la digestibilidad total, debido a que las pérdidas endógenas de grasa y la presencia de grasa microbiana son significativamente mayores en el intestino grueso que en el delgado. En el lumen del intestino delgado, la digestión de triglicéridos por lipasa pancreática y sales biliares genera dos ácidos grasos libres y un 2-monoglicérido, los cuales son absorbidos y re-esterificados en el enterocito principalmente a través de la ruta del monoacilglicerol, que representa alrededor del 80% de esta resíntesis. [4]
Estructura Química, Perfil Lipídico y Emulsificación Biliar
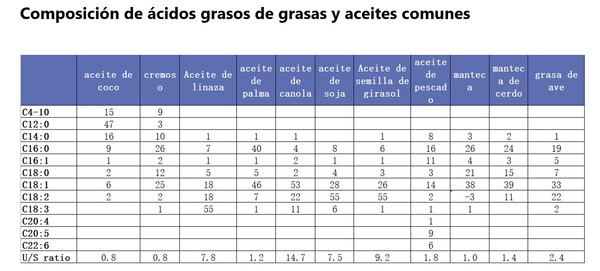
La arquitectura molecular del triglicérido ejerce una influencia determinante sobre la absorción de los nutrientes. La posición espacial de los ácidos grasos saturados condiciona su absorción: en las posiciones sn-1 y sn-3 pueden formar jabones insolubles con el calcio y perderse en las heces, mientras que la absorción de monoglicéridos con ácidos grasos saturados en la posición sn-2 es marcadamente superior. Para facilitar la adecuada acción detergente y asegurar una emulsificación adecuada por los ácidos biliares, se recomienda mantener una relación mínima de ácidos grasos insaturados a saturados de 2,25 a 2,50 en dietas para juveniles y de 2,0 a 2,25 en raciones para cerdos adultos. [2][4]
El grado de saturación y el estado físico de los lípidos añadidos también inciden de forma decisiva en la disponibilidad calórica. Los aceites con mayor porcentaje de ácidos grasos insaturados presentan mayor digestibilidad, alcanzando el aceite de soya valores cercanos al 90%, mientras que los aceites acidulados con niveles de hasta 50% de ácidos grasos libres reducen sensiblemente el aprovechamiento energético de la dieta porcina. Por su parte, los ácidos grasos de cadena media no presentan problemas de digestibilidad en lechones y se absorben principalmente vía vena porta, mientras que la digestibilidad de los ácidos de cadena larga como palmítico y oleico aumenta conforme madura la edad del cerdo. [6][5][4]
Emulsificantes Nutricionales e Interacción con Aminoácidos
La incorporación de aditivos funcionales representa una estrategia valiosa para sortear las limitaciones físicas del medio acuoso digestivo. La suplementación con emulsificantes nutricionales estimula la formación de micelas en la luz intestinal junto con las sales biliares, lo que en cerdas hiperprolíficas y lotes en desarrollo mejora la digestibilidad de la energía y reduce la variabilidad productiva. Paralelamente, la incorporación de fuentes de lípidos como aceite de soya o palma en lechones de destete mejora selectivamente la digestibilidad de los aminoácidos del pienso, reportándose un comportamiento más predecible y lineal con el aceite de soya para consolidar la eficiencia nutricional global. [3][8][9][7]
- Relación u/s por fase: Asegurar un ratio u/s mínimo de 2,25-2,50 en dietas juveniles y de 2,0-2,25 en adultos para optimizar la emulsificación biliar y digestión de fuentes saturadas como sebo o palma. [2]
- Impacto de ácidos grasos libres: Limitar materias primas con alta concentración de ácidos grasos libres (como aceites acidulados al 50% de AGL), cuya ineficiencia reduce la energía metabolizable disponible. [6]
- Maduración enzimática post-destete: Restringir excesos de grasas de cadena larga en las dietas previas a los 28 días de vida debido a la baja secreción de lipasa, recurriendo a lípidos de cadena media de fácil absorción. [1][5]
- Criterios para emulsificantes: Evaluar aditivos emulsificantes en función del balance hidrófilo-lipófilo (HLB) en el entorno intestinal y la concentración viable de principio activo, especialmente en cerdas hiperprolíficas. [9]
"Debido a que las pérdidas endógenas de grasa, incluyendo la grasa microbiana, son mayores en el intestino grueso que en el delgado, la digestibilidad ileal está menos afectada que la digestibilidad total y por lo tanto es un mejor estimador del aprovechamiento digestivo de la grasa." — Dr. Gerardo Mariscal Landín [4]
Calidad de Grasa Dorsal y Rendimiento de Canal en Engorde: Manejo del Índice de Yodo
El control de la firmeza de la panceta y grasa dorsal exige regular el valor de yodo limitando ingredientes ricos en ácidos grasos insaturados, como DDGS y soja integral, e incorporando fuentes saturadas en la etapa final de engorde. [10][11][12]
Factores de formulación lipídica y aminoacídica sobre la calidad de la grasa dorsal y panceta en cerdos
| Estrategia o Ingrediente | Fase o Límite de Inclusión | Impacto en Tejido Adiposo / Canal | Mecanismo o Causa Nutricional | Referencia |
|---|---|---|---|---|
| Grasas HIV a LIV | HIV hasta 70 lbs pv; LIV de 70 lbs pv a faena | Mayor firmeza y consistencia requerida en panceta | Transición de ácidos grasos poliinsaturados vegetales a saturados animales de bajo valor de yodo | [10] |
| Granos de destilería (DDGS) | Inclusión superior al 30% de la dieta | Correlación negativa con la firmeza de la panceta | Aporte elevado de grasas vegetales insaturadas que elevan el índice de yodo | [11] |
| Poroto de soja integral | Finalización del período de engorde | Relación PUFA:SFA sube de 0,38 a 0,55-0,72 (grasa blanda) | Aumento significativo en la proporción de ácidos linoleico y linolénico susceptibles a enranciamiento | [12] |
| Diferenciación sexual de lisina | A partir de los 45 kg de peso vivo | Maximiza crecimiento magro y controla grasa dorsal | Machos enteros demandan +10% de lisina que hembras y hembras +5% que castrados por diferencias metabólicas | [13], [14] |
Estrategias Dietéticas para Regular Firmeza y Estructura del Tocino
Para optimizar la consistencia de la panceta conforme a la clasificación del Iodine Value, se aconseja suministrar lípidos de alto valor de yodo (HIV), correspondientes a fuentes vegetales ricas en ácidos grasos poliinsaturados, hasta que los animales alcanzan las 70 lbs de peso vivo. A partir de esa etapa, el programa nutricional debe cambiar hacia insumos de bajo valor de yodo (LIV), caracterizados por lípidos saturados de procedencia animal hasta la finalización. Este perfil de ácidos grasos en la ración modula directamente la calidad final del tocino, ya que el suministro preferente de fracciones saturadas confiere una estructura compacta y adecuada firmeza culinaria, mientras que las fuentes insaturadas aportan un incremento en el nivel de marmoleo. [10][15]

La incorporación de materias primas con perfiles lipídicos altamente insaturados representa un factor crítico de manejo en la canal porcina. En dietas de engorde, la inclusión de granos secos de destilería (DDGS) por encima del 30% presenta una correlación negativa directa con la firmeza de la panceta y la consistencia de la grasa dorsal debido a su elevado contenido de aceites vegetales insaturados. Por ello, la formulación con DDGS encuentra sus límites esenciales en la concentración de fibra y ácidos grasos insaturados, manteniéndose segura en proporciones de al menos el 20% o superiores. De forma análoga, el uso de poroto de soja integral eleva drásticamente la relación PUFA:SFA en la grasa dorsal a rangos de 0,55 a 0,72 frente al 0,38 obtenido con harina de soja, consecuencia de su riqueza en ácidos linoleico y linolénico que favorece una grasa blanda propensa al enranciamiento. [11][16][12]
Eficiencia Metabólica y Partición Tisular entre Músculo y Grasa
Desde una perspectiva energética, orientar la ganancia hacia tejido magro resulta decisivo para la rentabilidad del engorde. La deposición de 1 kilogramo de tejido muscular, formado por 25% de proteína y 75% de agua, consume aproximadamente 2.650 calorías; en contraste, depositar 1 kilogramo de tejido graso, constituido por 90% de lípidos y 10% de agua, demanda cerca de 11.250 calorías. Este balance evidencia que el organismo del cerdo requiere unas cuatro veces más energía para sintetizar tejido adiposo que para estructurar músculo. [17]
Manejo Nutricional por Sexo y Balance en Finalización
A partir de los 45 kg de peso vivo, la formulación debe contemplar diferencias marcadas por sexo: los machos enteros precisan un 10% más de lisina y aminoácidos esenciales en comparación con las hembras, mientras que estas requieren un 5% más respecto a los machos castrados, quienes manifiestan un apetito más acentuado y una tasa acelerada de deposición de grasa dorsal. Asimismo, en la etapa de finalización, cualquier desbalance entre proteína cruda, extracto etéreo y carbohidratos desencadena el catabolismo proteico y el engrasamiento indeseado de la canal. Esta desviación se previene estableciendo un aporte adecuado de aminoácidos críticos como lisina disponible, metionina, triptófano y treonina, combinado con una densidad energética mínima de 3250 kcal de energía metabolizable por kilogramo de alimento. [13][14][18][19]
- Estrategia por Iodine Value: Suministrar dietas con ácidos grasos poliinsaturados de alto valor de yodo (HIV) hasta las 70 lbs y cambiar a fuentes saturadas de bajo valor (LIV) hasta la faena confiere firmeza a la panceta. [10]
- Restricción de DDGS y Soja: No superar el 30% de inclusión de DDGS y restringir la soja integral hacia la finalización previene la elevación de la relación PUFA:SFA y el ablandamiento de la grasa dorsal. [11][12][16]
- Manejo Nutricional por Sexo: Diferenciar raciones desde los 45 kg otorgando 10% más de lisina a machos enteros respecto a hembras y 5% más a hembras respecto a castrados previene el engrasamiento excesivo de los castrados. [13][14]
"Se ha observado una correlación negativa entre la adición de DDGS y la firmeza de la panceta y la calidad de la grasa con niveles superiores al 30%." — Sandra Carolina Salguero Cruz [11]
Criterios de Calidad, Estabilidad Oxidativa y Manejo de Fuentes Lipídicas en Planta de Alimentos
La evaluación analítica de lípidos en la nutrición porcina exige monitorear la acidez libre y el índice de anisidina, descartando grasas peroxidadas que merman la ganancia y alteran la integridad intestinal del cerdo. [20][21][5]
Criterios analíticos, operativos y sustitutivos de ingredientes lipídicos en nutrición porcina
| Fuente o Alternativa Energética | Criterio de Calidad y Especificación | Impacto Digestivo y Productivo | Parámetros Analíticos Críticos | Referencia |
|---|---|---|---|---|
| Sebo de res | Color blanco, textura de pasta sólida o cremosa y libre de residuos visibles | Requiere calor moderado para mezclado; el sobrecalentamiento causa peroxidación y merma digestiva | Apariencia física, textura y control de temperatura de fusión | [22], [5] |
| Grasas peroxidadas / recicladas | Grasas requemadas de restaurantes o partidas oxidadas con descomposición avanzada | Disminución de 1% en consumo de alimento y ~1% adicional en respuesta productiva; daño en membrana intestinal | Índice de anisidina y ácidos grasos libres (peróxidos insuficientes) | [20], [21], [5], [23] |
| Grasa animal de calidad suplementaria | Inclusión dietética evaluada de hasta 6.5% de grasa animal | Cada 1% de grasa disminuye en ~2% el alimento requerido por kg ganado; máxima ganancia diaria con 6.5% | Consumo diario de alimento y conversión alimenticia | [24], [25] |
| Gluconeogénicos en polvo | Sustitución del 80% al 100% de grasas añadidas (reemplazo de 1 a 7 hasta 1 a 9 de aceite) | Aporte energético estable durante 2 años de vida útil, sin producción de cuerpos cetónicos ni calor metabólico | Vida de anaquel y ausencia de peroxidación lipídica | [26], [23] |
Monitoreo Analítico y Riesgos de la Peroxidación Lipídica
El índice de peróxidos resulta insuficiente de forma aislada para determinar con precisión el avance de la degradación lipídica, dado que sus valores pueden presentarse engañosamente bajos tanto en las fases iniciales como en las etapas finales del proceso de descomposición; por consiguiente, el protocolo de control de calidad requiere cuantificar paralelamente los ácidos grasos libres y el índice de anisidina para medir los productos derivados de la oxidación secundaria. La presencia de grasa peroxidada en las dietas porcinas ocasiona una merma del 1% en el consumo voluntario de alimento, acompañada de una reducción productiva de aproximadamente un 1% adicional atribuible al trastorno metabólico derivado del estrés oxidativo que sufren los animales. [20][21]
La digestibilidad ileal y total de las grasas se reduce de forma directamente proporcional al avance de su grado de oxidación, facilitando la absorción de lípidos alterados que comprometen severamente la integridad estructural de la membrana intestinal, identificada como el principal órgano de choque frente a este desbalance. Asimismo, cuando se emplean fuentes ricas en ácidos grasos insaturados, el monitoreo rutinario del índice de yodo y del punto de fusión en la canal permite prevenir el riesgo de estrés oxidativo, una condición metabólica que se asocia con mayores valores de sustancias reactivas al ácido tiobarbitúrico (TBARS) cuantificados en el tejido adiposo. [5][27]
Manejo Operativo de Materias Primas y Eficiencia Energética
Para garantizar la inocuidad de las materias primas en la planta de alimentos, el sebo de res de calidad adecuada debe caracterizarse por un color blanco, una consistencia sólida o cremosa en función de la temperatura del ambiente y una nula o mínima cantidad de impurezas. Su procesamiento exige implementar un calentamiento sumamente controlado que evite someter el producto a recalentamientos sucesivos inductores de procesos oxidativos severos. Por el contrario, el empleo de grasas recicladas u oxidadas procedentes de restaurantes introduce una notable variabilidad energética e incrementa los costos operativos por conceptos de bombeo y calentamiento continuo en planta, perjudicando sensiblemente el desempeño zootécnico en comparación con el uso de fuentes lipídicas estables. [22][23][28]
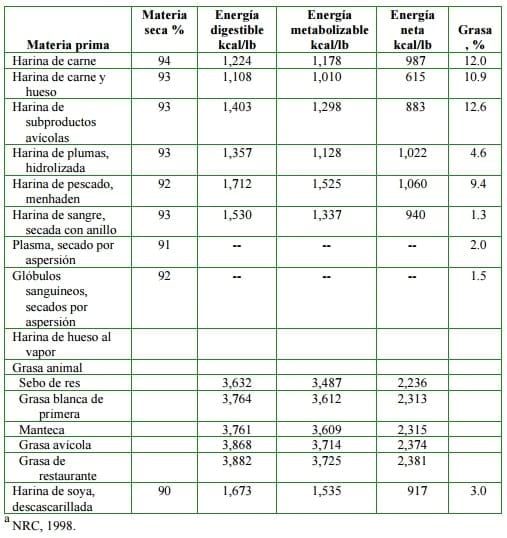
Desde una perspectiva zootécnica y de formulación, cada 1% de inclusión de grasa suplementaria en las dietas para porcinos disminuye el alimento requerido por unidad de ganancia en aproximadamente un 2%, optimizando de forma notable los parámetros de eficiencia alimenticia del lote. En consonancia con esta respuesta productiva, en cerdos alimentados con una ración que contenía una inclusión del 6.5% de grasa animal de calidad, se registró la mayor ganancia diaria de peso corporal del ensayo junto con un consumo de pienso numéricamente inferior, lo que confirma el valor de utilizar lípidos bien preservados. [24][25]
Alternativas Energéticas Mediante el Empleo de Gluconeogénicos
Como alternativa de manejo nutricional en fases de engorde, los productos gluconeogénicos permiten sustituir del 80% al 100% de las grasas añadidas a la fórmula mediante relaciones de reemplazo que van de 1 a 7 e incluso de 1 a 9 partes de aceite, suministrando una elevada biodisponibilidad energética sin inducir la formación de cuerpos cetónicos ni generar calor metabólico. A diferencia de las fuentes lipídicas convencionales cuya energía disponible suele degradarse paulatinamente por fenómenos de oxidación, los productos gluconeogénicos en presentación en polvo brindan dos años de vida de anaquel, lo que garantiza a los formuladores un aporte de energía completamente predecible y constante a lo largo del tiempo de almacenaje. [26][23]
- Monitoreo de oxidación secundaria: Medir analíticamente los ácidos grasos libres y el índice de anisidina en lugar de depender únicamente del índice de peróxidos para identificar el grado real de deterioro lipídico. [20]
- Inspección física del sebo: Verificar color blanco y consistencia sólida o cremosa; descartar sebos color café o con abundantes residuos por estar dañados, así como partidas excesivamente líquidas por riesgo de adulteración. [22]
- Manejo térmico en planta: Calentar el sebo de res con controles estrictos evitando sobrecalentamientos o calentamientos múltiples que aceleran la peroxidación y reducen la digestibilidad. [22][5]
- Sustitución con gluconeogénicos: Reemplazar aceites en proporción de 1 a 7 o 1 a 9 utilizando gluconeogénicos en polvo con dos años de vida de anaquel para eliminar los costos de bombeo y riesgos de rancidez. [26][23]
"Hay que tener en cuenta varios factores que se deben medir, ácidos grasos libres, peróxidos ya no nos sirve como un parámetro. Sí, porque peróxidos puede ser muy bajo al inicio del proceso de descomposición y muy bajo al final del proceso de descomposición." — Julieta Sierra Díaz [20]
Ácidos Grasos Poliinsaturados Omega 3 y Omega 6 en Reproductoras: Dinámica Reproductiva y Maduración Neonatal
En la nutrición en cerdos reproductores, la suplementación diaria con 10 gramos de ácido linoleico y 10 gramos de ácido alfa-linolénico asegura la exportación a leche, mientras que los omega-3 modulan la secreción de prostaglandinas favoreciendo la supervivencia embrionaria. [5]
Estrategias de suplementación con ácidos grasos esenciales y poliinsaturados en dietas de cerdas reproductoras
| Estrategia Nutricional | Fuentes y Dosificación en Dieta | Relación n-6:n-3 | Efecto Reproductivo o Fisiológico Observado | Referencia |
|---|---|---|---|---|
| Aporte basal de esenciales | 10 g/cerda/día de linoleico y 10 g/cerda/día de alfa-linolénico | Aporte individual superior a 0.1% de la dieta (7 g/día) | Compensación de la exportación neta a leche, menor pérdida de peso en lactación y mejora del peso al destete | [5] |
| Dieta control saturada | Sebo animal (2.2% en último tercio de gestación; 4.1% en lactación) | 13.5:1 | Registro basal de 12.86 lechones totales y 11.6 lechones nacidos vivos en evaluación experimental | [29], [30] |
| Enriquecimiento n-3 con DHA | Aceite de cártamo (94.8%) + suplemento de DHA de algas al 5.2% (LG-Max) | 5:1 | Atenuación de prostaglandinas endometriales; respuesta productiva comparable a sebo, con impacto sugerido en camadas >14 lechones | [5], [29], [30] |
Bases Bioquímicas y Requerimientos de Esenciales
Los cerdos carecen de las enzimas desaturasas delta-12 y delta-15 indispensables para posicionar dobles enlaces en las conformaciones omega-3 u omega-6, condición metabólica que sitúa al ácido linoleico (C18:2n-6) y al ácido alfa-linolénico (C18:3n-3) como nutrientes estrictamente esenciales en las raciones. Una vez consumidos, ambos compuestos operan a nivel hepático como sustratos precursores para la síntesis de ácidos grasos poliinsaturados de cadena larga mediante mecanismos continuos de elongación y desaturación, dando origen al ácido araquidónico (C20:4n-6), al ácido eicosapentaenoico (EPA; C20:5n-3) y al ácido docosahexaenoico (DHA; C22:6n-3). La cerda reproductora actúa como una exportadora neta de estos ácidos grasos esenciales hacia la leche; por esta razón técnica, se aconseja suministrar 10 g/día de ácido linoleico y 10 g/día de ácido alfa-linolénico, superando el requerimiento basal del 0.1% (7 g/día) para amortiguar el desgaste de masa corporal en la lactancia e incrementar el peso de los lechones al momento del destete. [31][5]
En el sistema reproductivo, la suplementación estratégica con ácidos grasos omega-3 de cadena muy larga como el DHA deprime la síntesis y liberación de prostaglandinas endometriales originadas a partir de la cascada del ácido araquidónico, prolongando la funcionalidad del cuerpo lúteo ovárico y consolidando la supervivencia embrionaria temprana. Por otro lado, la incorporación del ácido docosahexaenoico es un factor determinante en la estructuración y formación del tejido nervioso en los mamíferos, participando activamente en los procesos de maduración fetal y preservando la integridad y desarrollo neural del neonato. [5][32][33][29]
Equilibrio Inmunitario y Balance entre Familias
El balance de la relación n-6:n-3 en la ración de cerdas gestantes y lactantes debe gestionarse con rigor analítico, ya que cualquier desequilibrio provocado por el exceso de una familia induce el catabolismo metabólico de la otra, generando repercusiones desfavorables sobre la viabilidad y desarrollo de la camada. Bajo situaciones de exposición a desafíos sanitarios o inmunitarios, los ácidos grasos omega-6 muestran una acción activadora proinflamatoria, mientras que los omega-3 despliegan un rol modulador antiinflamatorio, regulando las respuestas de defensa al contener la elevación de citoquinas proinflamatorias como el TNF-alfa y promoviendo la síntesis de moléculas moduladoras como la interleucina 10 (IL-10). [29][33][34]
Evidencia Experimental en Gestación y Lactancia
La contrastación experimental de estas relaciones lipídicas ha sido explorada en diversas evaluaciones de campo. En un ensayo conducido sobre 151 ciclos reproductivos donde las cerdas recibieron 2.2% de grasa en gestación tardía y 4.1% en lactación, una relación n-6:n-3 de 5:1 estructurada con 94.8% de aceite de cártamo y 5.2% de DHA no exhibió diferencias estadísticas frente a dietas con sebo (relación 13.5:1) en variables de nacidos vivos, peso al nacimiento o peso al destete. Por su parte, en un estudio reportado sobre 179 ciclos reproductivos en hembras de 2.9 partos promedio, las madres alimentadas con sebo registraron 12.86 lechones totales y 11.6 nacidos vivos frente a 13.59 totales y 12.02 vivos en las raciones con adición de DHA; estos hallazgos permitieron postular que la manifestación productiva positiva de este ácido graso omega-3 podría resultar apreciable en escenarios con camadas hiperprolíficas mayores a 14 lechones o con una tasa acentuada de inmadurez al parto. [29][30]
El seguimiento del manejo lipídico demanda establecer protocolos sistemáticos que midan integralmente las variables del ciclo productivo. Dicho monitoreo comprende registrar con precisión el peso vivo de la madre al servicio, al día 109 de gestación y al destete, la ganancia de peso gestacional, el consumo de alimento y el desgaste físico sufrido en la lactancia, así como el intervalo destete-estro subsiguiente y la evolución ponderal de la camada manifestada en los pesajes totales tanto al nacimiento como al destete. [29]
- Dosificación de ácidos esenciales: Administrar 10 gramos diarios de ácido linoleico y 10 gramos diarios de ácido alfa-linolénico por reproductora para superar el mínimo de 7 gramos al día (0.1%) y compensar el gasto de lactancia. [5]
- Protección de la viabilidad embrionaria: Incorporar ácidos grasos omega-3 (DHA) para amortiguar la secreción endometrial de prostaglandinas y extender la permanencia del cuerpo lúteo materno. [5]
- Focalización en camadas numerosas: Priorizar la suplementación con fuentes de DHA (aceites marinos o algas) en rodeos hiperprolíficos donde los partos superen los 14 lechones o exista riesgo de lechones con retraso de maduración. [29][30]
"No se encontró ningún efecto positivo a la inclusión de DHA en la dieta de las cerdas, pero no puede excluirse la posibilidad que con camadas más numerosas (e.g., >14) o mayor frecuencia de lechones inmaduros al parto, se logre obtener los efectos del DHA." — Dr. José Cuarón [29]
Ácidos Grasos de Cadena Corta y Media en Lechones: Integridad Intestinal y Supervivencia Neonatal
La suplementación oral con ácidos grasos de cadena media y corta suministra energía de rápida metabolización a lechones débiles, estimula la morfología intestinal y reduce la mortalidad neonatal al controlar patógenos entéricos durante las primeras etapas de vida. [35][36][37]
Perfil porcentual de ácidos grasos de cadena media (AGCM) en fuentes vegetales para porcicultura
| Fuente Lipídica | Ácido Caprílico (C8:0) | Ácido Cáprico (C10:0) | Ácido Láurico (C12:0) | Referencia |
|---|---|---|---|---|
| Aceite de coco | 3,4 a 15% | 3,2 a 15% | 41 a 56% | [38] |
| Aceite de palma | 2,4 a 6,2% | 2,6 a 7,0% | 41 a 55% | [38] |
Suministro Energético y Supervivencia Neonatal
En el manejo de camadas vulnerables, los ácidos grasos de cadena media y corta actúan como energizantes inmediatos de rápida metabolización para lechones pequeños o débiles, mejorando su vitalidad y la tasa de supervivencia que alcanza el destete y la faena. De manera concreta, la administración oral de 3 ml diarios de ácidos grasos de cadena media (Vigorol®) durante los primeros tres días de vida a lechones con peso al nacimiento inferior o igual a 1250 g reduce el riesgo de muerte 1.94 veces (P<0.05), igualando su mortalidad a la de lechones con mayor peso. [36][35]
Para asegurar un aporte adecuado de estas fracciones lipídicas, el aceite de coco aporta entre 3,4% y 15% de ácido caprílico (C8:0), 3,2% a 15% de ácido cáprico (C10:0) y 41% a 56% de ácido láurico (C12:0), mientras que el aceite de palma contiene 2,4% a 6,2% de C8:0, 2,6% a 7,0% de C10:0 y 41% a 55% de C12:0. En el tracto digestivo, los ácidos grasos de cadena media (AGCM) de 8, 10 o 12 átomos de carbono facilitan la digestión y absorción de nutrientes, fortalecen la morfología de vellosidades y criptas, mitigan la inflamación intestinal y disminuyen los ácidos grasos volátiles indeseables. [37][38]
Modulación de Patógenos y Acción Sistémica
A nivel microbiológico, los AGCM, en forma libre o como monoglicéridos, modulan la microbiota combatiendo bacterias Gram negativas como Escherichia coli y Salmonella, y Gram positivas como Clostridium, Staphylococcus y Streptococcus, favoreciendo a la vez la flora láctica. Asimismo, el alfa-monolaurín ingerido por vía oral se absorbe mediante el sistema linfático tras la digestión de triglicéridos y alcanza la circulación sistémica hasta los pulmones, donde altera la membrana lipídica del PRRSv y modula a los macrófagos alveolares porcinos. [39][40]
Impacto de Grasas Saturadas en Crecimiento
Durante la fase posterior a la lactancia, el suministro de dietas ricas en ácidos grasos poliinsaturados omega-6 (n-6 PUFA) en el post-destete deprime la ingesta voluntaria de alimento y el peso vivo (P < 0.05), retraso en el crecimiento que se demostró reversible al sustituirlas por dietas con ácidos grasos saturados (SFA). Consistentemente, en el crecimiento temprano hasta el día 76 de vida, los lechones alimentados con dietas ricas en ácidos grasos saturados (AGS) presentan una ganancia diaria de peso significativamente superior en comparación con aquellos que reciben ácidos grasos insaturados. [41][27]
En el diseño de las raciones para estas etapas, la eficacia de los acidificantes en lechones depende de la capacidad amortiguadora del alimento y el cereal utilizado, mientras que la microencapsulación regula su liberación a lo largo del tracto digestivo y preserva la palatabilidad. Finalmente, en el ámbito de los ácidos grasos en la nutrición porcina, se plantea la combinación estratégica de AGCM con ácidos orgánicos o Lactobacillus spp. para optimizar la formulación del pienso y potenciar interacciones sinérgicas sobre la salud intestinal porcina. [42][43]
- Identificación de camadas de riesgo: Monitorear el peso al nacimiento para seleccionar animales con peso igual o inferior a 1250 g como población prioritaria de intervención. [36]
- Protocolo oral de choque neonatal: Administrar 3 ml diarios de suplemento con AGCM (Vigorol®) por vía oral durante los primeros 3 días posparto para revertir el riesgo de mortalidad. [36]
- Selección de materias primas con AGCM: Emplear fuentes concentradas como aceite de coco o aceite de nuez de palma en la ración en dosis mínimas efectivas para reforzar la barrera mucosa y la digestibilidad. [37]
"La eficacia de la suplementación con ácidos grasos sobre la supervivencia de los lechones con poco peso al nacimiento ha quedado perfectamente demostrada. Suplementando a los animales con menor peso al nacimiento conseguimos reducir de forma significativa la mortalidad de este grupo." — Xavier Casas, Joaquim Casellas y Jesús Piedrafita, Xavier Manteca [36]
Ácido Butírico y Tributirina para la Integridad Intestinal y Modulación de la Barrera Epitelial
El ácido butírico y la tributirina optimizan la integridad intestinal en cerdos al estimular el desarrollo de vellosidades, sellar las uniones epiteliales y modular la microbiota durante fases críticas como el destete. [44][45]
Estrategias de aditivos butíricos y derivados lipídicos para la salud e integridad intestinal porcina
| Aditivo o Molécula | Presentación / Formulación | Sitio de Liberación / Mecanismo | Efectos Fisiológicos y Productivos | Referencia |
|---|---|---|---|---|
| Butirato sódico protegido | Microencapsulado con recubrimiento de protección | Liberación duodenal y entérica | Resistencia a hidrólisis gástrica, modulación de microbiota y menor mortalidad post-destete | [46], [45] |
| 1-Monoglicéridos (C3-C12) | Mezcla de monoacilglicéridos (4 kg/ton por 7 d, luego 3 kg/ton por 63 d) | Luz intestinal y membrana bacteriana | Reducción de E. coli hemolítica y Aerococcus viridans, mejora de consistencia fecal y reducción de miostatina | [47] |
Morfología y Reparación del Epitelio Digestivo
A nivel celular, el ácido butírico estimula directamente la proliferación y diferenciación de las células epiteliales, promoviendo el mantenimiento continuo y la reparación activa del revestimiento intestinal porcino. Esta acción mitogénica y trófica resulta indispensable para preservar la funcionalidad de la mucosa frente al desgaste fisiológico continuo de la digestión y absorción. [44]
De manera complementaria, la inclusión de tributirina mejora sustancialmente la morfología de la mucosa digestiva al incrementar la altura de las vellosidades y optimizar la profundidad de las criptas. Estos cambios estructurales maximizan la superficie total de absorción de nutrientes, facilitando una utilización más eficiente del alimento y favoreciendo un óptimo desempeño zootécnico en los animales. [44]
Tecnología de Liberación y Formas Protegidas
Desde una perspectiva galénica y nutricional, la tributirina en presentación esterificada resuelve los problemas de olor característicos del butirato libre, asegurando además una alta estabilidad física y una concentración mínima garantizada durante las etapas de almacenamiento y mezclado del pienso. Por su parte, los butiratos sódicos protegidos y microencapsulados resisten la degradación enzimática desde la boca hasta el estómago, lo que garantiza una liberación efectiva a nivel del duodeno e intestino delgado. [44][46]
Control de Patógenos y Modulación de la Microbiota
El ácido butírico ejerce una profunda modulación sobre el equilibrio de la microbiota intestinal porcina, fomentando el desarrollo de bacterias benéficas e inhibiendo poblaciones patógenas, lo que refuerza la barrera física contra diversas infecciones entéricas. Para potenciar estos efectos, se investiga la combinación estratégica de butiratos sódicos protegidos con fitogénicos y aceites esenciales, buscando un control sinérgico de la microbiota y mejores rendimientos. Asimismo, los acidificantes con acción entérica logran reducir el pH digestivo para inhibir patógenos como Escherichia coli, Salmonella y Clostridium, mientras que los ácidos grasos de cadena media y las levaduras apoyan de forma sostenida a la flora benéfica. [44][46][48]
Protección Entérica y Crecimiento Post-Destete
En lechones post-destete, la incorporación de sales sódicas de ácido butírico en el alimento mitiga eficazmente las alteraciones microbianas inducidas por el estrés del destete, favoreciendo la absorción nutricional y disminuyendo la mortalidad. De igual forma, en ensayos con lechones destetados de 21 días y un peso inicial promedio de 5,5 kg, la administración de una mezcla de monoacilglicéridos o 1-monoglicéridos de ácidos grasos (C3 a C12) a razón de 4 kg/ton durante 7 días y 3 kg/ton durante 63 días redujo de forma significativa las poblaciones de Escherichia coli hemolítica y Aerococcus viridans en heces. Dicho protocolo nutricional con 1-monoglicéridos logró reducir la incidencia de diarreas y la mortalidad, mejorando la ganancia diaria de peso y reduciendo los niveles de miostatina para favorecer el desarrollo muscular del lechón. [45][47]
- Refuerzo de uniones intercelulares: La tributirina fortalece la barrera intestinal al estrechar las uniones intercelulares de los enterocitos, impidiendo la translocación de toxinas y patógenos hacia la circulación sistémica. [44]
- Morfometría mucosal y absorción: El ácido butírico incrementa la altura de las vellosidades y optimiza la profundidad de las criptas, ampliando la superficie efectiva de absorción y la eficiencia alimenticia. [44]
- Ventajas de la esterificación: El formato esterificado de la tributirina enmascara los olores intensos del butirato convencional y mantiene una elevada estabilidad frente a los procesos de fabricación del alimento. [44]
- Microencapsulación y liberación duodenal: Los sistemas de protección tecnológica en sales de butirato resguardan la molécula del ambiente gástrico, asegurando su liberación focalizada a partir del duodeno en lechones y madres. [46]
"Los ácidos grasos libres o en su forma de monoglicéridos han probado ser efectivos contra diversas bacterias patógenas causantes de enfermedades entéricas y mortalidad en animales." — Afro Quarantelli [47]
Metabolismo Lipídico, Regulación Genética y Enriquecimiento Nutricional de la Carne Porcina
La modulación del metabolismo lipídico en cerdos se centra en el tejido adiposo como sitio primario de lipogénesis, donde la inclusión de grasas inhibe la síntesis de novo y permite enriquecer la carne mediante la formulación dietética. [4][49]
Efectos metabólicos, transcripcionales y sobre la calidad de la grasa según la fuente lipídica en cerdos
| Fuente Lipídica / Intervención | Dosis o Etapa Productiva | Respuesta en Expresión Génica y Tejidos | Impacto en Calidad de Grasa y Canal | Referencia |
|---|---|---|---|---|
| Semillas de lino | Inclusión al 5% y 10% (55 a 110 kg de peso vivo) | Modificación del perfil graso en grasa intramuscular y subcutánea dorsal | Aumento de ácidos grasos poliinsaturados y omega-3 con menor relación n-6:n-3; aptitud mantenida en salames | [50] |
| Aceite de pescado | 5% en post-destete o 10% en dietas experimentales | Disminución de ARNm de SREBP1, ACACA y SCD en tejido hepático | Utilización como fuente energética sin alterar significativamente la relación AGS/AGM/AGP en jamón, lomo y paleta | [49], [51], [52] |
| DHA (fuente LG-Max®) | 2.2% a 4.1% en cerdas y 2% en finalización (hasta día 174) | Deposición tisular directa de ácidos poliinsaturados n-3 en grasa dorsal y tocino | Aumento del índice de yodo y menor punto de fusión; oxidación en grasa dorsal de 3.01 a 3.82 y 29.53% de merma en retención de agua | [27], [53] |
| Grasas y aceites suplementarios | Adición de 1% a 1.5% extra en dietas formuladas por EN | Reducción de la producción de calor metabólico respecto a almidones y azúcares | Mitigación del estrés calórico y sostenimiento de la eficiencia alimenticia en temperaturas altas | [2] |
Particularidades Metabólicas y Transporte Lipídico Tisular
A diferencia de roedores, aves y humanos donde el hígado desempeña la función primordial, en la especie porcina el tejido adiposo representa el órgano principal para la síntesis de novo de ácidos grasos. No obstante, el cerdo exhibe una capacidad metabólica marcadamente restringida para la cetogénesis y para transferir ácidos grasos de cadena larga hacia la matriz mitocondrial, limitación asociada a restricciones funcionales de la enzima carnitina palmitoiltransferasa. [5][49][52]
Desde una perspectiva bioenergética, la oxidación de las grasas mediante el proceso de beta-oxidación en el metabolismo intermediario genera 37,6 kJ/g, superando ampliamente el aporte de los carbohidratos y las proteínas, cuya liberación alcanza 16,7 kJ/g. Para que estos lípidos circulen sistémicamente, los quilomicrones y las VLDL en el torrente sanguíneo reciben las apoproteínas apo CII y apo E transferidas por las HDL; de manera fundamental, la apo CII activa a la enzima lipasa lipoproteica endotelial, catalizando la hidrólisis de triglicéridos para abastecer de ácidos grasos a los tejidos periféricos. [4]
Regulación Génica y Síntesis Lipídica Endógena
A nivel celular, el control del metabolismo graso está mediado por factores transcripcionales específicos, en los que las proteínas PPAR dirigen los procesos oxidativos de los lípidos, mientras que los factores SREBP controlan los genes que codifican para la maquinaria enzimática de la síntesis lipogénica. Cuando los animales ingieren raciones con aportes lipídicos reducidos del orden del 2-4%, el tejido adiposo asume activamente la síntesis endógena de novo, estableciendo una relación celular característica de ácidos palmítico, esteárico y oleico de aproximadamente 1.5:1:3. [49][52]
La naturaleza de las fuentes lipídicas suministradas ejerce una marcada reprogramación génica en el animal. En cerdos suplementados con sebo, la abundancia transcripcional de los ARNm para las enzimas acetil CoA carboxilasa (ACACA), ácido graso sintasa (FASN) y estearoil CoA desaturasa (SCD) decrece en el tejido adiposo frente a fuentes ricas en insaturados como el aceite de girasol. Paralelamente, la inclusión de aceite de pescado atenúa la expresión de ARNm de SREBP1 y de enzimas lipogénicas en el parénquima hepático, si bien el impacto cuantitativo sobre la masa grasa total resulta menor dado el papel secundario del hígado en la lipogénesis porcina. [49][52]
Enriquecimiento Nutricional de la Canal y Manejo Térmico
La manipulación nutricional permite diferenciar favorablemente el perfil tisular cárnico. La incorporación de semillas de lino en niveles del 5% o 10% durante la etapa de 55 a 110 kg de peso vivo induce un descenso en los ácidos grasos saturados acompañado de un incremento proporcional en los ácidos grasos poliinsaturados y omega-3, tanto en la grasa dorsal como en la intramuscular, preservando plenamente la aceptabilidad sensorial al procesar derivados curados. [50]
Asimismo, el enriquecimiento con DHA en la dieta logra elevar el índice de yodo y contraer el punto de fusión de las grasas corporales; no obstante, esta intervención puede detonar estrés oxidativo tisular, documentándose valores de oxidación lipídica en grasa dorsal comprendidos entre 3.01 y 3.82, así como pérdidas de retención de agua en la carne de hasta el 29.53%. Adicionalmente, incorporar de 1% a 1.5% adicional de lípidos en el pienso actúa mitigando el impacto del estrés calórico en los animales, ya que la utilización de grasas y aceites produce un menor incremento calórico metabólico respecto al generado por almidones, azúcares y carbohidratos fermentables. [27][53][2]
- Regulación transcripcional lipogénica: La inclusión de fuentes lipídicas saturadas como el sebo disminuye la expresión génica de ACACA y FASN en el tejido adiposo, deprimiendo la síntesis de novo de ácidos grasos corporales en cerdos en comparación con aceites vegetales insaturados. [49][52]
- Estrategia funcional con lino: La inclusión de 5% y 10% de semilla de lino durante la etapa de terminación (55 a 110 kg de peso) optimiza la relación omega-6/omega-3 en grasa intramuscular y tocino sin comprometer la preferencia del consumidor en salames. [50]
- Mitigación del estrés calórico: Añadir entre 1% y 1.5% adicional de lípidos en dietas bajo el sistema de energía neta reduce la termogénesis metabólica frente a dietas ricas en almidón, preservando el consumo voluntario en ambientes cálidos. [2]
"Al ser las grasas moléculas más reducidas; cuando son oxidadas en el metabolismo intermediario (β-oxidación) generan más energía (37,6 kJ/g), que las proteínas y carbohidratos (16,7 kJ/g)." — Dr. Gerardo Mariscal Landín [4]
Preguntas Frecuentes (FAQ)
Q: ¿Cuáles son los 3 tipos de ácidos grasos? A: Por la longitud de su cadena carbonada, se clasifican en: ácidos grasos de cadena corta (2 a 4 átomos de carbono), de cadena media (6 a 12 átomos de carbono) y de cadena larga (a partir de 14 átomos de carbono). [4]
Q: ¿Qué tipo de ácido graso tiene la manteca? A: La manteca de cerdo, al constituir una fuente lipídica de origen animal sólida a temperatura ambiente, contiene predominantemente ácidos grasos saturados. [4]
Q: ¿Cuáles ácidos grasos son esenciales en los cerdos y por qué? A: Son el ácido linoleico (C18:2n-6) y el alfa-linolénico (C18:3n-3). Son esenciales porque los mamíferos carecen de las enzimas Δ12 y Δ15-desaturasas, impidiendo sintetizarlos endógenamente al no poder insertar dobles enlaces en las posiciones omega-3 u omega-6. [31]
Q: ¿Cómo influye la relación de ácidos grasos insaturados/saturados (u/s) en la digestibilidad de las grasas? A: A mayor proporción de insaturados, mayor digestibilidad por facilitar la emulsificación biliar. [2][6]
Q: ¿Qué parámetros de laboratorio deben medirse para evaluar la calidad de las grasas y evitar la oxidación? A: Deben medirse los ácidos grasos libres y el índice de anisidina (oxidación secundaria). El índice de peróxidos no resulta confiable por sí solo, pues suele registrar valores engañosamente bajos tanto al inicio como al final del deterioro oxidativo. [21][20]
Q: ¿Qué ventajas ofrece la tributirina frente al ácido butírico libre o sus sales en el alimento de lechones? A: La forma esterificada de tributirina atenúa el olor característico del ácido butírico, facilitando el mezclado y manipulación. Brinda mayor estabilidad térmica durante el procesamiento del alimento y estimula la altura de vellosidades y profundidad de criptas intestinales. [44]
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
Everton Daniel: Tecnologías aplicadas en la Recría: Manejo, Ambiente y Nutrición
-
Rocky Gao, Lachance: Estudio sobre los factores que afectan la digestibilidad de las grasas en la dieta
-
Lien Vande Maele: Cómo promover el crecimiento y las características del canal en cerdos
-
Dr. Gerardo Mariscal Landín: Digestión y metabolismo de las grasas en cerdos.
-
Gerardo Mariscal Landín: Digestión y metabolismo de grasas en cerdos
-
David Chan Diaz: Mejorar la digestibilidad en cerdos sin aceites
-
Dave Albin: Beneficios de las Dietas de Mayor Contenido Graso: Cambios estructurales y funcionales, parte 3
-
Víctor Ríos: Evaluación del impacto de emulsificantes comerciales sobre el margen de utilidad en cerdos de sitio 3
-
Alfredo J. Escribano, PhD: La cerda de hoy día necesita de mayor energía: emulsificantes
-
Ing. Ag. Maurice Zarate MS: Efecto suplementación energética aceite
-
Sandra Carolina Salguero Cruz: Uso y aplicación de DDGS en la alimentación porcina
-
Ing. Agr. Roberto Bauza Devessi: Uso del poroto de soja integral como alimento para cerdos
-
PIC México: Impacto de las variables que determinan el desarrollo magro del cerdo. (Primera Parte)
-
Marcos Gil Campos: Impacto variables determinan desarrollo
-
Julieta Sierra Díaz: Grasas y aceites en la nutrición porcina
-
Hans H. Stein y K. de Lange: Uso de DDGS en alimentación porcina
-
Raúl Aguila: Formulación Moderna para Cerdos Modernos (I)
-
Jose Luis Jimenez Moreno: cerdos que engrasan el canal con alimentacion a voluntad
-
Victor Guerra Rodriguez: Cómo evitar la grasa en la engorda?
-
Julieta Sierra Díaz: Grasas y aceites en la nutrición porcina
-
Julieta Sierra Díaz: Grasas y aceites en la nutrición porcina
-
Julieta Sierra Díaz: Uso de Grasa de paso en las Raciones de cerdos
-
Hector Herrera: ¿Conviene utilizar grasas o aceites, o un gluconeogénico en la producción porcina?
-
Dr. Gary L. Cromwell: Subproductos reciclados de origen animal en la nutrición porcina
-
Dave Albin: Beneficios de las dietas de mayor contenido graso. Parte 2: El efecto en el consumo y el Rendimiento
-
Felix del Aguila: Uso de Grasa de paso en las Raciones de cerdos
-
María Alejandra Pérez Alvarado: Ácidos grasos insaturados de cadena larga en la producción de carne de cerdo diferenciada
-
Julieta Sierra Díaz: Grasas y aceites en la nutrición porcina
-
Dr. José Cuarón: Respuesta productiva de cerdas alimentadas con ácidos grasos insaturados de cadena larga
-
Samara Sánchez Piñeyro: Respuesta productiva cerdas alimentadas t41974
-
Stephan Alexander da Silva Alencar: Dietary lipid sources on the fatty acid profile of swine fat: a review
-
Sergio Bellver: Ácidos grasos sergio bellver t2063
-
Samara Sánchez Piñeyro: Respuesta productiva cerdas alimentadas t41974
-
Javier Polo: Relación entre nutrición salud t31607
-
Gerardo Roulet: Betabloqueantes y Acidos Grasos para cerdos
-
Xavier Casas, Joaquim Casellas y Jesús Piedrafita, Xavier Manteca: Efecto de la Suplementación con Ácidos Grasos de Cadena Media (Vigorol*) Sobre la Supervivencia de Lechones con Poco Peso al Nacimiento
-
Dra. Johana Andrea Ciro: Desempeño productivo del cerdo, Uso de sustancias bioactivas
-
Juan Jose Mallo, Mónica Puyalto, Cinta Sol: Nueva fuente de ácidos grasos de cadena media
-
Fabián Cingolani: Uso responsable de antibióticos y breve repaso por la paleta de aditivos que ofrece Cladan
-
Edgar Bottle: Impacto económico prrsv porcicultura
-
Stuart Wilkinson: Dietary Fatty Acids Affect the Growth and Performance of Gilt Progeny
-
Jorgelina Gimenez: Acidificantes en la alimentación del cerdo
-
Juan Gabriel Espino: Nueva fuente ácidos grasos
-
Mario García: Salud intestinal y ácido butírico en monogástricos
-
Carlos del Cuvillo: Momentos críticos en lechones, Uso de ácidos orgánicos
-
Paul W. Cardozo: Butiratos sódicos en nutrición animal: Importancia del uso
-
Jorge Labala: Puntos claves de la alimentación que afectan la rentabilidad en el Engorde
-
Pere Duran Montgé y Enric Esteve-Garcia: Efectos en el balance de ácidos grasos y el metabolismo lipídico en el cerdo
-
Sebastián Marini; Raul Franco; Brunori Jorge; dario panichelli; Lattanzi, M; Germán Cottura; Baldovino, M. INTA Argentina: Incorporación de semillas de lino (Linum Usitatissimum) en la alimentación del cerdo y valoración de la calidad nutracéutica de salames caseros.
-
Pochon, D.O.(†); Picot, J.A.; Navamuel, J.M.; Koslowski, H.A.; Sequeira, L.A.: Efecto de la suplementación energética con aceite de pescado en la concentración de ácidos grasos en carne de cerdo
-
Duran-Montgé, P.: Efecto de la grasa de la Dieta sobre la expresión de genes relacionados con el metabolismo Lipídico del cerdo
-
Samara Sánchez Piñeyro: Ácidos grasos insaturados cadena t42038