Inflamaciones en Aves de Corral: Guía Completa de Fisiopatología, Diagnóstico y Manejo Antiinflamatorio
El control de la inflamación en aves de corral es la gestión integral de la respuesta inmune innata ante desequilibrios patológicos o nutricionales. Su prevención y control se implementan mediante modulación entérica y fitogénicos, manteniendo umbrales de permeabilidad intestinal inferiores al 15%, lo que previene la disbiosis y optimiza la conversión alimenticia [1].
- Desafío Técnico y Causa Primaria: La inflamación en aves de corral es desencadenada por micotoxinas, patógenos entéricos y estrés nutricional alto en broilers y ponedoras.
- Impacto Cuantitativo: Mermas de hasta 100 g de peso vivo a los 35 días, caídas de conversión alimenticia del 8% al 12% y aumento de la mortalidad por translocación bacteriana del 2.5% al 5.0%.
- Protocolo de Intervención Verificado: Diagnóstico mediante proteína de fase aguda en 3 minutos, inclusión de curcumina al 0.05% y fitogénicos, ajustando agua de bebida a pH 5.5.
Fisiopatología de la Respuesta Inflamatoria en Avicultura
La respuesta inflamatoria en aves representa un gasto energético severo que desvía aminoácidos esenciales del desarrollo muscular hacia la síntesis de proteínas de fase aguda [1]. En la avicultura moderna, donde las líneas genéticas de broilers procesan nutrientes a velocidades metabólicas extremas, cualquier activación inmunitaria innecesaria desencadena un costo zootécnico directo sobre el rendimiento en canal [18]. La inflamación no debe entenderse únicamente como la respuesta clínica a un patógeno virulento, sino como una cascada fisiológica vascular y celular coordinada que altera la homeostasis del hospedador [13].
Mecanismos Moleculares de la Inmunidad Innata
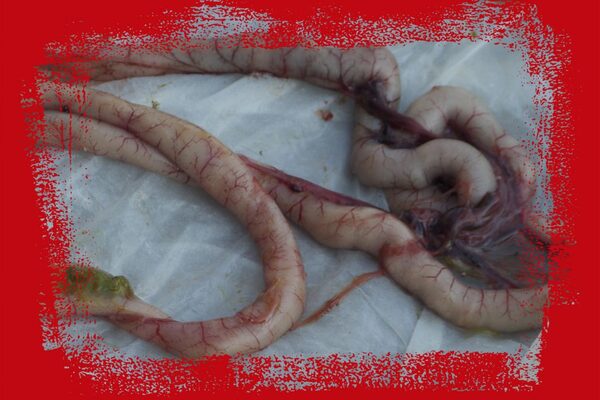
Los receptores tipo Toll (TLR) en heterófilos y macrófagos reconocen patrones moleculares asociados a patógenos (PAMPs), activando la cascada NF-kB [14]. Tras este reconocimiento, la proteína IκB se fosforila y degrada, liberando al factor nuclear Kappa B (NF-κB) para que se transloque al núcleo celular [22]. Este evento genómico induce la transcripción inmediata de genes que codifican enzimas proinflamatorias como la ciclooxigenasa-2 (COX-2) y la óxido nítrico sintasa inducible (iNOS) [22]. La consiguiente sobreproducción de prostaglandina E2 (PGE2) y especies reactivas del nitrógeno altera el tono vascular local, incrementando la permeabilidad endotelial y promoviendo la extravasación de heterófilos hacia el tejido afectado [1].
Cascada de Citoquinas y Proteínas de Fase Aguda
La secreción masiva de interleuquina-1 (IL-1), interleuquina-6 (IL-6) y TNF-alfa incrementa la temperatura corporal y acelera el catabolismo proteico en las aves [8]. Estas citoquinas proinflamatorias actúan sobre el hipotálamo del ave estimulando la fiebre y reduciendo la ingesta de alimento (anorexia inmunológica) [21]. Simultáneamente, a nivel hepático, IL-6 reprograma la síntesis proteica: se reduce la producción de albúmina (proteína de fase aguda negativa) y se dispara la producción de amiloide A sérico (SAA), alfa-1-antitripsina y proteína C reactiva (proteínas de fase aguda positivas) [9]. Este proceso consume lisina, treonina y metionina metabólicas a una tasa hasta tres veces superior a la requerida para el mantenimiento basal, sustrayendo bloques estructurales indispensables para la formación de tejido muscular [9].
"Toda vez que un ave produce una respuesta adaptativa humoral o celular desproporcionada, enfrenta un gasto de ATP superior al del músculo cardíaco en trabajo máximo, consumiendo lisina metabólica que debería convertirse en carne." — Dr. Luiz Felipe Caron, Universidad Federal de Paraná [9]
Inflamación Intestinal y Permeabilidad Entérica en Aves
La pérdida de la integridad de las uniones estrechas (tight junctions) por enteritis permite el paso de endotoxinas hacia la circulación portal [20]. El epitelio intestinal aviar está constituido por una sola capa de enterocitos interconectados por complejos proteicos constituidos por claudinas, ocludinas y proteínas zonula occludens (ZO-1) [20]. Cuando se presenta un choque inflamatorio entérico, la redistribución o fosforilación anómala de estas proteínas provoca la brecha funcional de la barrera intestinal, desencadenando el síndrome de "intestino permeable" (leaky gut) [6].
Dinámica de la Disbiosis y Translocación Bacteriana
El desequilibrio microbiano en el íleon y ciegos altera la producción de ácidos grasos de cadena corta, favoreciendo la proliferación de Clostridium perfringens [5]. En eubiosis, la microbiota comensal (principalmente Lactobacillus, Ruminococcus y Faecalibacterium prausnitzii) produce niveles elevados de butirato y acetato, los cuales sirven como fuente energética primaria para los enterocitos y mantienen un pH luminal ácido (5.5 a 6.2) [11]. Durante un evento de disbiosis, la caída en las poblaciones productoras de butirato incrementa el pH e impulsa la proliferación de bacterias patógenas oportunistas [11]. Estas bacterias rompen la capa de mucina 2, atraviesan la lámina propia y penetran en el torrente sanguíneo, migrando hacia el hígado y el bazo en un proceso conocido como translocación bacteriana sistémica [20].
Coccidiosis y Enteritis Necrótica como Inductores Inflamatorios
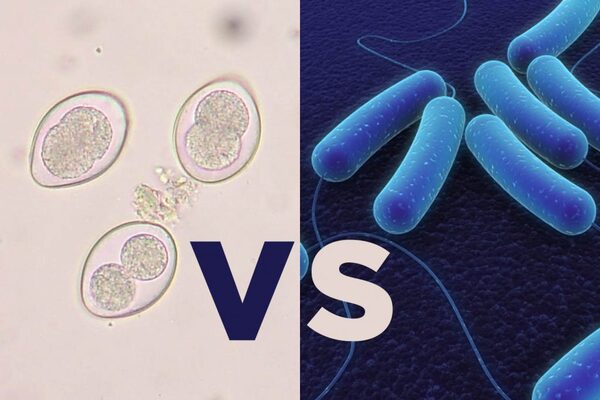
La destrucción celular ocasionada por Eimeria acervulina y Eimeria tenella desencadena una respuesta inflamatoria estéril y exudativa que nutre la toxina Alfa de Clostridium [2]. El ciclo de esporogonia y esquizogonia de Eimeria spp. causa la lisis mecánica de los enterocitos, exponiendo la matriz extracelular profunda [2]. La extravasación plasmática hacia la luz intestinal provee un sustrato rico en proteínas plasmáticas que actúa como factor de crecimiento exponencial para Clostridium perfringens tipo A y C [28]. La toxina Alfa y la toxina NetB producidas por Clostridium extienden la necrosis liquefactiva en la mucosa, consolidando cuadros de enteritis necrótica aguda con desprendimiento masivo de pseudomembranas fibrino-necróticas [5].
| Etapa Patológica | Desencadenante Bioquímico | Impacto Histológico / Morfológico | Merma Zootécnica Estimada | Referencia |
|---|---|---|---|---|
| Estrés Primario | Liberación masiva de Corticosterona | Acortamiento de vellosidades y atrofia de criptas | Incremento de 0.02 a 0.04 en ICA | [19] |
| Disbiosis Luminal | Reducción de Butirato / Elevación de pH | Degradación de la capa proteica de Mucina 2 | Pérdida de 20 g a 35 g de peso vivo | [11] |
| Ruptura Barrier Work | Fosforilación anómala de ZO-1 y Ocludina | Separación de enterocitos y permeabilidad endotelial | Aumento de humedad en cama del 15% al 30% | [20] |
| Enteritis Exudativa | Sobreexpresión tisular de COX-2 e iNOS | Infiltración masiva de heterófilos en lámina propia | Reducción en absorción de aminoácidos del 12% | [1] |
| Necrosis Tisular | Toxinas Alfa y NetB de Clostridium | Lisis de vellosidades y membranas fibrinoides | Elevación de mortalidad del 1.0% al 4.5% | [5] |
Aerosaculitis y Procesos Inflamatorios Respiratorios
La aerosaculitis es la inflamación de los sacos aéreos aviares causada por la colonización coordinada de Mycoplasma gallisepticum y Escherichia coli [4]. Las aves poseen un sistema respiratorio parabronquial rígido conectado a nueve sacos aéreos avasculares de paredes extremadamente delgadas [15]. Esta arquitectura anatómica, carente de macrófagos alveolares residentes en la cantidad observada en mamíferos, vuelve al aparato respiratorio aviar altamente susceptible a cuadros de inflamación supurativa y exudativa aguda [15].
Patogenia Infecciosa del Complejo Respiratorio Aviar
La ciliostasis inducida por bronquitis infecciosa permite la penetración profunda de bacterias Gram negativas en el tracto respiratorio inferior [15]. El virus de la Bronquitis Infecciosa Aviar (IBV) o el virus de la Enfermedad de Newcastle infectan las células epiteliales ciliadas de la tráquea y bronquios, destruyendo el aparato mucociliar en menos de 48 horas [15]. Sin el barrido constante de moco, microorganismos oportunistas como Mycoplasma gallisepticum (MG) adheridos mediante la adhesina p97 colonizan el epitelio y desencadenan una potente atracción quimiotáctica de heterófilos [4]. La posterior superinfección con cepas APEC (Avian Pathogenic Escherichia coli) culmina en una poliserositis caracterizada por aerosaculitis fibrinosa, pericarditis y perihepatitis, provocando decomisos masivos en la planta de faena [7].
Inmunomodulación Terapéutica con Macrólidos Avanzados
El uso de macrólidos de última generación como la tilvalosina reduce la acumulación de exudado fibrinoso mediante la supresión de la expresión de IL-1 β [4]. A diferencia de los antimicrobianos bactericidas convencionales que pueden incrementar el choque endotóxico por lisis bacteriana masiva, la tilvalosina ejerce una rápida acumulación intracelular dentro de los macrófagos y heterófilos aviares [4]. En estas células inmunológicas, modula la respuesta transcripcional, bloqueando la producción excesiva de interleuquinas proinflamatorias y acelerando la resolución del exudado en las cavidades celómicas sin inducir inmunosupresión secundaria [4].
Uso de Desinflamatorios y Fitogénicos en Aves de Corral
Los aditivos fitogénicos como la curcumina y el timol modulan la respuesta inmunitaria intestinal sin generar inmunosupresión ni residuos químicos [22]. Ante la restricción global en el uso de antibióticos promotores de crecimiento (APC) y la ausencia de antiinflamatorios no esteroideos (AINEs) sintéticos de uso masivo continuo en el agua de bebida para broilers, la nutrición avanzada ha recurrido a moléculas botánicas estandarizadas para controlar la inflamación estéril y patogénica [22].
Mecanismo de Acción de la Curcumina y Aceites Esenciales
La curcumina inhibe la expresión de la ciclooxigenasa-2 (COX-2) y disminuye el nivel circulante de óxido nítrico sintasa inducible [22]. Proveniente de la raíz de Curcuma longa, este polifenol bloquea la fosforilación de p65 en el complejo NF-κB, suprimiendo directamente la síntesis downstream de PGE2 y leucotrienos LTB4 [22]. Por su parte, aceites esenciales monoterpénicos como el carvacrol (extraído del orégano) y el timol alteran la permeabilidad de la membrana de patógenos mientras estimulan la secreción endógena de enzimas digestivas (amilasa, lipasa y tripsina), reduciendo la cantidad de sustrato no digerido que causa inflamación por fermentación alta en el ciego [10].
Ácidos Orgánicos y Butiratos Protegidos
La suplementación con butirato de sodio recubierto estimula la proliferación de enterocitos y la síntesis de mucina 2 en la mucosa intestinal [11]. El ácido butírico actúa como un inhibidor de la histona deacetilasa (HDAC), lo que promueve la hiperacetilación de las histonas en el ADN de las células inmunes, favoreciendo la diferenciación de linfocitos T reguladores (Treg) suppressor de citoquinas [11]. La inclusión de butirato microencapsulado con liberación diana en el íleon y ciego asegura que la molécula no se absorba prematuramente en el proventrículo, restituyendo la altura de las vellosidades intestinales y disminuyendo la profundidad de las criptas [11].
| PCC # | Etapa / Punto de Control | Factor de Riesgo Inflamatorio | Parámetro Operativo Crítico | Medida Correctiva Nutracéutica / Sanitaria | Referencia |
|---|---|---|---|---|---|
| 1 | Incubación y Nacimiento | Hipoxia y estrés térmico en hacedora | Temperatura de cáscara > 38.3 °C | Nutrición in ovo con aminoácidos y temperatura a 37.8 °C | [9] |
| 2 | Primeras 24h de Vida | Ayuno prolongado y deshidratación | Retraso de consumo > 12 horas | Alimento gel hidratado inmediato con complejo B y electrolitos | [9] |
| 3 | Recepción y Cama | Cama húmeda y liberación de Amonio | Concentración de NH3 > 20 ppm | Ventilación mínima de 0.05 m3/min/kg y acidificantes secos | [15] |
| 4 | Fase Iniciador (Días 1-10) | Proteína no digerida o antinutrientes | Inclusión de Harina de Soja con > 3 ppm de Inhibidor de Tripsina | Inclusión de proteasas exógenas y BUTIRATO recubierto | [3] |
| 5 | Calidad del Agua | Alta carga bacteriana o pH > 7.5 | Coliformes totales > 0 UFC/mL | Acidificación continua del agua a pH 5.5 a 6.0 con ácidos orgánicos | [11] |
| 6 | Control de Coccidiosis | Rotación deficiente de anticoccidianos | OPG en heces > 15,000 entre día 14 y 21 | Programa dual (vacuna + fitogénicos ricos en Curcumina) | [2] |
| 7 | Transición Alimenticia | Estrés por cambio de fase de alimento | Caída de consumo > 5% durante el cambio | Inclusión de extractos de orégano/timol al 0.05% en alimento | [10] |
| 8 | Control de Micotoxinas | Contaminación por DON / T-2 / Fumonisina | DON > 0.5 ppm o T-2 > 0.1 ppm en ración | Secuestrantes enzimáticos con bio-transformación activa | [9] |
| 9 | Ventilación / Flujo de Aire | Infección por MG / MS / IBV | Velocidad de aire no uniforme (< 1.5 m/s) | Tratamiento oportuno con Tilvalosina e inmunomoduladores | [4] |
| 10 | Pre-Faena y Ayuno | Estrés térmico y desprendimiento mucoso | Ayuno pre-faena > 12 horas | Administración de electrolitos y betaína anhidra en agua | [18] |
Estrés Oxidativo e Inmunosupresión Inflamatoria en Broilers y Ponedoras
El estrés oxidativo masivo neutraliza la capacidad antioxidante endógena de las aves, induciendo peroxidación lipídica en las membranas celulares [18]. La producción incontrolada de especies reactivas del oxígeno (ROS), como el anión superóxido (O2bullet-) y el radical hidroxilo (OHbullet), supera la actividad enzimática de la superóxido dismutasa (SOD), la catalasa (CAT) y la glutatión peroxidasa (GPx) [18]. La destrucción oxidativa de los lípidos insaturados en la membrana del enterocito amplifica la respuesta inflamatoria local, generando hidroperóxidos lipídicos y malondialdehído (MDA), indicadores biológicos de daño tisular severo [19].
Impacto de las Micotoxinas en la Activación Inmunitaria
Aflatoxinas y deoxynivalenol (DON) comprometen la fagocitosis de los heterófilos, generando un estado de inmunocompromiso metabólico [9]. Micotoxinas tricotecenas como el DON interfieren con el centro peptidil transferasa de los ribosomas eucariotas, desencadenando la respuesta al estrés ribotóxico [9]. Esta interrupción inhibe la síntesis de proteínas en células de rápida división, como los linfocitos T y B y las células de Paneth [9]. Paradójicamente, la exposición a dosis subclínicas de micotoxinas estimula un estado inflamatorio crónico de baja intensidad que reduce la ganancia diaria de peso, mientras disminuye drásticamente los títulos de anticuerpos vacunales contra la Enfermedad de Gumboro y Newcastle [9].
Metainflamación y Obesidad en Aves de Alto Rendimiento
El crecimiento ultra acelerado en broilers genera un estado de metainflamación sistémica debido al exceso de adiposidad visceral [8]. La selección genética hacia tasas de crecimiento veloces ha incrementado la deposición de tejido adiposo abdominal en aves maduras [8]. Este tejido adiposo no es inerte; hipertrofiado por la sobrealimentación, sufre hipoxia tisular localizada, reclutando macrófagos M1 que secretan leptina, TNF-alfa e IL-6 [8]. Esta metainflamación (inflamación metabólica crónica) deteriora la sensibilidad a la insulina y altera la remodelación del cartílago en la cabeza femoral, favoreciendo la aparición de cojeras y necrosis de la cabeza del fémur [33].
| Biomarcador Inflamatorio | Muestra Requerida | Método Diagnóstico Avanzado | Umbral Basal Fisiológico | Umbral Inflamatorio Crítico | Cita Técnica |
|---|---|---|---|---|---|
| Proteína C Reactiva (PCR) | Sangre entera / Suero | Triage Rápido por Biosensor (3 min) | Menos de 10.0 mug/mL | Más de 45.0 mug/mL | [9] |
| Amiloide A Sérico (SAA) | Plasma sanguíneo | ELISA cuantitativo | Menos de 2.5 mug/mL | Más de 20.0 mug/mL | [9] |
| Excreción de D-Lactato | Plasma / Contenido ileal | Cromatografía Líquida (HPLC) | Menos de 0.15 mmol/L | Más de 0.85 mmol/L | [20] |
| Malondialdehído (MDA) | Tejido hepático / Suero | Espectrofotometría TBARS | Menos de 1.2 nmol/mL | Más de 4.8 nmol/mL | [18] |
| Relación Heterófilo/Linfocito | Extendido sanguíneo | Microfrotis / Citometría | Ratio de 0.20 a 0.45 | Ratio mayor a 0.80 | [19] |
Tratamiento Nutricional de la Inflamación Entérica y Sistémica
Las estrategias de inmunonutrición ajustan los niveles de aminoácidos funcionales para sostener la barrera mucosa sin sacrificar masa muscular [9]. La inmunonutrición aviar no busca una hiperestimulación del sistema inmunitario, sino su vigilancia óptima (immunovigilance) y una resolución ultrarrápida del proceso inflamatorio para reorientar el flujo de nutrientes hacia la síntesis de miosina y actinina en el tejido pectoral [9].
Formulación Nutricional Antiinflamatoria
La relación treonina:lisina y metionina:lisina debe ser incrementada un 5% durante desafíos inflamatorios agudos para mantener la síntesis de inmunoglobulina A [9]. La treonina es el aminoácido mayoritario en la estructura de las glicoproteínas que conforman la mucina [9]. Bajo estrés inflamatorio entérico, la tasa de renovación (turnover) del moco se incrementa hasta un 40%, agotando las reservas corporales de treonina libre si la ración no ha sido ajustada [9]. Por su parte, los aminoácidos azufrados (metionina y cisteína) proveen los grupos sulfhidrilo necesarios para la síntesis de glutatión reducida (GSH), el antioxidante intracelular más potente contra las especies reactivas de oxígeno en los enterocitos [18].
Manejo Práctico de las Primeras 24 Horas de Vida
La provisión inmediata de alimento hidratado y nutracéuticos en la eclosión previene la atrofia de vellosidades y reduce las interleuquinas inflamatorias a los 14 días [9]. Durante el período de eclosión y transporte, un retraso en la ingesta exógena de alimento mayor a 12 horas obliga al pollito a reabsorber prematuramente la vesícula vitelina para obtener energía, privando a la mucosa intestinal de estímulo luminal [9]. Este ayuno inicial ralentiza la maduración folicular en la Bolsa de Fabricio y desencadena una sobreexpresión latente de IL-1β que persiste hasta las dos semanas de vida [9]. La administración de alimento gelatinizado enriquecido con nucleótidos y butirato en las cajas de nacimiento acorta la fase adaptativa del intestino, incrementando la superficie de absorción hasta en un 25% a los 7 días [9].
Preguntas Frecuentes (FAQ)
Q: ¿Qué desinflamatorio se puede usar en aves? A: El uso de fitogénicos estandarizados como la curcumina (0.05%) y el salicilato de sodio en agua de bebida reduce eficazmente la inflamación entérica y sistémica sin dejar residuos químicos en carne o huevo [22].
Q: ¿Por qué las aves se inflan? A: Las aves se inflan visualmente por la acumulación de gas o líquido fibrinoso en la cavidad celómica, subcutánea o sacos aéreos debido a enteritis bacteriana, aerosaculitis o colecciones de exudado por E. coli [7].
Q: ¿Cuáles son los síntomas de la psitacosis? A: La psitacosis (Chlamydia psittaci) causa descarga nasal e intraorbital mucosa, conjuntivitis purulenta, disnea severa, letargia, erizamiento de plumas y heces acuosas de color verde amarillento con alta letalidad [15].
Q: ¿Qué es la aerosaculitis en aves? A: La aerosaculitis es la inflamación exudativa o fibrino-purulenta de los sacos aéreos aviares, provocada por la interacción patógena entre Mycoplasma gallisepticum, virus respiratorios y superinfecciones por Escherichia coli [4].
Q: ¿Cómo diferenciar la coccidiosis de la enteritis necrótica en aves? A: La coccidiosis presenta petequias punctiformes o contenido hemorrágico según la especie de Eimeria, mientras que la enteritis necrótica exhibe una mucosa francamente engrosada cubierta por una pseudomembrana amarillenta "tipo terciopelo" o "corteza de árbol" [5].
Q: ¿Qué es la metainflamación y cómo afecta a los pollos de engorde? A: La metainflamación es un estado inflamatorio metabólico crónico de baja intensidad desencadenado por el exceso de tejido adiposo y alta tasa de ingesta, que deteriora la conversión alimenticia y promueve lesiones articulares [8].
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
Teresa M. Agulles Teixidó: Understanding Intestinal Inflammation in Poultry
-
Richard Ducatelle: Coccidiosis: Key Cause of Intestinal Inflammation
-
Richard Ducatelle: High feed intake: cause of inflammation?
-
Javier Uriarte: Tilvalosina y la Inmunomodulación Aviar
-
Plusvet: Diferenciación Coccidiosis vs. Enteritis Necrótica Aviar
-
Dr. Guillermo Tellez-Isaias: Gut Inflammation: Root of Poultry Diseases
-
Luis Alzamora: Cólera Aviar Crónico: Signos Atípicos en Aves
-
Dr. Guillermo Tellez-Isaias: Obesity and Inflammation in Broilers
-
Dr. Luiz Felipe Caron: Kit de diagnóstico rápido de inflamación aviar
-
Germano Eichner: Control de Inflamación Intestinal en Aves
-
Jaime Andrés Ángel Isaza: Monitoreo de Inflamación Intestinal en Aves
-
Roberto Santiago Gómez: Inflamación Intestinal y Productividad Avícola
-
Teresa M. Agulles Teixidó: Tipos de Inflamación Intestinal en Aves
-
Alonso Dávila Patiño, MVZ: Fenotipos de Inflamación Intestinal en Aves
-
Elías Hernando Osorio Naranjo: Diferenciación Inflamación Respiratoria Aviar
-
M.V. David Rueda LL. y Dr. Martín Oyanguren M.: Manejo de Fallas Terapéuticas en Aves
-
Phytobiotics: Metainflamación en Aves de Alto Rendimiento
-
Ricardo Sahagún: Inflamación Subclínica y Costos en Avicultura
-
Dra. Nina Neufeld: Inflamación Latente: Freno al Rendimiento en Pollos
-
Phytobiotics: Inflamación Crónica y Permeabilidad Intestinal Aviar
-
Alireza Khadem: Inflamación Crónica Reduce Crecimiento en Pollos
-
Dr. Edgar Santos Bocanegra: Cúrcuma: Mecanismo Antiinflamatorio en Aves
-
Melina Bonato y Liliana Borges: Respuesta proinflamatoria prolongada afecta desempeño avícola
-
Phytobiotics: Inflamación intestinal y productividad en gallinas de postura
-
Luis Abel Buitrago Manjarrés: Diagnóstico Inflamación Patas Gallinas Ponedoras
-
Rafael illana campos: Inflamación Interdigital en Ponedoras
-
Eduardo Castro: Inflamación Fisiológica y Eficiencia Aviar
-
Esteban Cornejo: Inflamación intestinal: Clave en control de Clostridium
-
Nathalia Maria Del Pilar Correa Valencia: Diagnóstico de Inflamación Intestinal Aviar
-
Julio Jose Insua Sarmiento: Diagnóstico de buche inflamado y heces verdosas en pollos
-
Adan Rodriguez: Ampicilina para dedos inflamados en gallinas
-
Javier Botto: Tratamiento Inflamación Patas Gallinas
-
valentino: Coyunturas inflamadas en pollos de engorde
-
Dr. Sergio Jaimes: Diagnóstico Diferencial SCH en Pollos
-
Fernando G. Corredor P.: Antibióticos para SCH en Pollos Parrilleros