Energía en la Dieta de Aves: Sistemas de Valoración, Requerimientos Nutricionales y Estrategias Eficientes
La energía metabolizable y neta en la dieta de aves es el sistema dinámico de cuantificación calórica disponible para mantenimiento y producción zootécnica. Se implementa ajustando densidades de 2.950 a 3.250 kcal/kg de EM y manteniendo una relación calórico-proteica de 135 a 175 kcal por cada 1% de proteína bruta, lo que previene el estrés térmico, optimiza el rendimiento de pechuga y maximiza la rentabilidad del lote comercial [1].
- Desafío Técnico y Causa Primaria: Guía de energía metabolizable y neta en aves: sistemas de valoración, balance calórico-proteico, modelación UFV, lisofosfolípidos y control en planta.
- Impacto Cuantitativo: Desviaciones energéticas de ±100 kcal/kg alteran la conversión alimenticia en ±3,4% (equivalente a 0,1% de lisina digestible) y provocan mermas de hasta 30 g de rendimiento de pechuga.
- Protocolo de Intervención Verificado: Muestreo mediante espectroscopía NIRS calibrada con 60 muestras, ajuste térmico del secado de maíz a ≤80 °C y dosificación de emulsificantes/lipasas para recuperar entre 50 y 120 kcal/kg en dietas densas.
Sistemas de Valoración Energética en Aves: Energía Metabolizable vs Energía Neta
Definición y Principios de Energía en Nutrición Animal y Cómo se Clasifica
La energía en nutrición animal es la capacidad calorífica liberada por la oxidación metabólica de los carbohidratos, lípidos y proteínas contenidos en las materias primas. No constituye un nutriente aislado, sino una propiedad fisicoquímica de la materia orgánica utilizada para mantenimiento basal y producción hística [1].
En avicultura, el flujo calórico se subdivide jerárquicamente a partir de la Energía Bruta (EB), obtenida por combustión completa en bomba calorimétrica. Al sustraer la energía no digerida expulsada en las deyecciones, se obtiene la Energía Digestible (ED). No obstante, debido a que las aves excretan conjuntamente las heces y la orina a través de la cloaca, la medición del valor digestible resulta metodológicamente compleja. Por esta razón, el sistema estándar global ha sido la Energía Metabolizable (EM), que descuenta la energía perdida en las excretas (fecales y urinarias) y gases entéricos [13].
Transición de la Energía Metabolizable (EMA/EMAn) a la Energía Neta (EN) y Productiva
La Energía Metabolizable Aparente (EMA) sobreestima el valor energético real de los insumos proteicos e indigeribles, ya que no contempla el incremento calórico (IC) derivado de los procesos de digestión y metabolismo activo [14]. Para corregir las variaciones por retención proteica en aves en crecimiento, se utiliza la Energía Metabolizable Aparente Corregida por Nitrógeno (EMAn), aplicando un factor de 8,22 kcal/g de nitrógeno retenido [14].
"El sistema de energía productiva mide directamente los componentes de mantenimiento y ganancia de peso, utilizando densitometría para composición corporal y calorimetría para el gasto de mantenimiento, ofreciendo una predicción más precisa del rendimiento." — Diego Martinez Patiño-Patroni, Universidad de Arkansas [10]
Sin embargo, el cambio de paradigma hacia la Energía Neta (EN) —o Energía Productiva— radica en que la EN sustrae el Incremento Calórico (IC) de la EM (EN = EM - IC). Mientras que en la nutrición porcina el sistema de EN está ampliamente extendido debido a la precisión al valorar carbohidratos y grasas frente a la fibra [4], en aves se ha desarrollado la visión de la Energía Productiva. Este modelo mide la retención hística efectiva mediante densitometría ósea/corporal (DEXA) combinada con respirometría en cámaras calorimétricas [7], [10].
Modelación Matemática y Métodos de Estimación Energética
Para cuantificar con exactitud la EM de las materias primas en la planta de alimentos balanceados, se emplean ecuaciones ajustadas basadas en la composición del análisis proximal [1], [32], [34]:
Fórmula: EM (kcal/kg) = 4,31 × PBd + 9,29 × EEd + 4,14 × ENNd
Donde PBd, EEd y ENNd representan la Proteína Bruta digestible, el Extracto Etéreo digestible y el Extracto No Nitrogenado digestible expresados en g/kg [1].
                      +-----------------------------+
                      |      Energía Bruta (EB)     |
                      +-----------------------------+
                                     |
                          Pérdidas en Excretas
                                     v
                      +-----------------------------+
                      |  Energía Metabolizable (EM) |
                      +-----------------------------+
                                     |
                            Incremento Calórico
                                     v
                      +-----------------------------+
                      |      Energía Neta (EN)      |
                      +-----------------------------+
                               /             \
                              /               \
                             v                 v
               +-------------------+ +-------------------+
               |  EN Mantenimiento | |   EN Producción   |
               |      (ENm)        | |  (Ganancia / ENp) |
               +-------------------+ +-------------------+
El impacto del secado industrial del grano sobre la matriz calórica es crítico. Temperaturas de secado del maíz superiores a 80 °C provocan la cristalización del almidón en estructuras resistentes y reducen sensiblemente la digestibilidad de la lisina por la reacción de Maillard [6].

A continuación se presenta la matriz de Puntos Críticos de Control (PCC) para la valoración energética y calibración de dietas en la fábrica de piensos:
| PCC ID | Etapa de Procesamiento | Parámetro de Control | Umbral Crítico | Impacto Productivo / Zootécnico | Frecuencia de Muestreo | Corrección Matriz |
|---|---|---|---|---|---|---|
| PCC-01 | Recepción de Maíz | Humedad del grano | Máximo 14,0% | Previene proliferación fúngica y degradación energética | 100% de camiones | Descuento calórico de 12,28 kcal/kg por % de daño [1] |
| PCC-02 | Secado Térmico de Granos | Temperatura de secador | Máximo 80 °C | Mantiene almidón digerible y evita la reacción de Maillard | Continuo | Caída de 3.364 a 3.250 kcal/kg si T > 120 °C [1] |
| PCC-03 | Molienda de Cereales | Tamaño de partícula (GMD) | 900 a 1.000 µm | Optimiza desarrollo de molleja y retención de N | Por lote de molienda | Ajustar apertura de molino de martillos [25] |
| PCC-04 | Control de Granos Dañados | % Granos gorgojados/rotos | Máximo 3,0% | Evita pérdidas en densidad por consumo de lípidos | Cada 500 toneladas | Restar 10 kcal/kg por cada 1% de gorgojo [1] |
| PCC-05 | Inactivación de Soja | Actividad Ureásica (ΔpH) | 0,03 a 0,10 | Elimina inhibidores de tripsina sin desnaturalizar lisina | Por lote procesado | Reducción del 23% en lisina digestible si T > 165 °C [1] |
| PCC-06 | Espectroscopía NIRS | Calibración de curvas | Mínimo 60 muestras | Garantiza precisión en estimación de PB, EE y EM | Ajuste mensual | Recalibrar ecuación NIRS contra química húmeda [1] |
| PCC-07 | Dosificación de Aceites | Peróxidos y Acidez Libre | < 5 mEq/kg peróxidos | Evita estrés oxidativo e inapetencia | Cada cisterna de grasa | Reducir valor de EM en 150 kcal/kg en grasas rancias [15] |
| PCC-08 | Mezclado de Aditivos | Coeficiente de Variación | CV < 5% | Distribución homogénea de enzimas y emulsificantes | Trimestral | Inspección mecánica de paletas del mezclador [19] |
| PCC-09 | Condicionado / Pellet | Temp. y Tiempo Acondicionado | 80-85 °C / 20 seg | Gelatinización parcial de almidón sin lisar aminoácidos | Continuo | Optimizar PDI (Pellet Durability Index) > 90% [28] |
| PCC-10 | Análisis de Alimento Final | Contenido de Cenizas Totales | Máximo 6,5% | Controla contaminación por arena o dilución inorgánica | Lote terminado | Ajustar formulación si la ceniza supera el límite [19] |
Requerimientos de Energía en Dietas para Pollos de Engorde y Gallinas de Postura
Dinámica Energética en Pollos de Engorde por Fase Nutricional
Los requerimientos energéticos en pollos de engorde evolucionan según la madurez fisiológica del sistema digestivo y la tasa de deposición proteica/lipídica. Durante la primera semana de vida, el pollito posee una capacidad limitada de emulsificación biliar y secreción de lipasa pancreática, lo que restringe el uso eficiente de grasas saturadas [15].
Un error en la formulación de ±100 kcal/kg de EM impacta directamente la conversión alimenticia (CA) en un ±3,4% (lo que equivale a una variación de 0,1% de lisina digestible) [1].
Las recomendaciones matriciales estándar para líneas de alto rendimiento comercial se desglosan en el siguiente cuadro técnico:
| Fase de Crecimiento | Edad (Días) | EM Recomendada (kcal/kg) | Lisina Digestible (%) | Relación EM/Proteína (kcal/%PB) | Consumo Diario Est. (g/ave) | Conversión Fase |
|---|---|---|---|---|---|---|
| Pre-iniciador | 1 a 10 | 2.950 - 3.000 | 1,35 - 1,38 | 134 - 138 | 35,8 | 0,98 - 1,05 [20] |
| Iniciador | 11 a 21 | 3.000 - 3.075 | 1,18 - 1,22 | 145 - 150 | 95,2 | 1,25 - 1,32 [20] |
| Crecimiento | 22 a 35 | 3.100 - 3.175 | 1,05 - 1,08 | 160 - 165 | 165,4 | 1,55 - 1,62 [26] |
| Finalizador | 36 a 42+ | 3.175 - 3.250 | 0,95 - 0,98 | 172 - 178 | 219,0 | 1,82 - 1,90 [26] |
Estimación y Modelación Energética en Gallinas de Postura
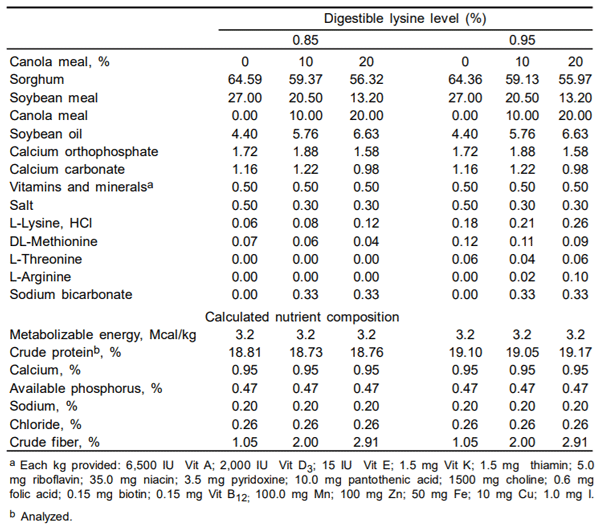
En las gallinas ponedoras, el consumo diario de energía metabolizable está determinado por la masa corporal (mantenimiento), la tasa de ganancia de peso y la producción de masa de huevo. La ecuación de modelación de la Universidad Federal de Viçosa (UFV) permite cuantificar el requerimiento diario (EMreq) [18]:
Fórmula: EMreq (kcal/ave/día) = W0,75 × (113 - 0,81 × T) + 5,5 × Δ W + 2,1 × EMH
Donde W es el peso vivo (kg), T es la temperatura ambiente (°C), Delta W es la ganancia diaria de peso (g) y EMH es la masa de huevo producida diariamente (g/día) [18].
Estrategias de Densidad Energética para Mitigar el Estrés Térmico en Avicultura
Qué Tipo de Energía Aportan los Alimentos y Cómo Responde el Ave al Calor
Los alimentos aportan energía química concentrada en enlaces moleculares de carbohidratos, lípidos y proteínas, los cuales son transformados metabólicamente en adenosín trifosfato (ATP) y energía térmica (calor) [1].
Durante episodios de estrés térmico (temperaturas ambientales superiores a la zona de termoneutralidad de 18-24 °C), las aves activan mecanismos de disipación como el jadeo (hiperventilación evaporativa). Este fenómeno induce alkalosis respiratoria y reduce el consumo voluntario de alimento para mitigar el Incremento Calórico (IC) de la digestión [16].
Estrés Térmico (T > 28 °C) ---> Jadeo / Polipnea ---> Pérdida de CO<sub>2</sub> Sanguíneo
                                                            |
                                                            v
Caída en Consumo (-1,5%/°C) <--- Alkalosis Respiratoria <--- Reducción de Bicarbonato (HCO3-)
Estrategias de Formulación y Densificación Lipídica
Para mantener el consumo diario de energía calórica durante épocas calurosas sin sobrecargar el IC metabólico, se deben aplicar las siguientes modificaciones formulativas:
- Sustitución de Carbohidratos por Lípidos: La grasa posee un Incremento Calórico significativamente menor (10-15%) comparado con los carbohidratos (15-20%) y las proteínas (25-30%) [16].
- Uso de Proteína Ideal y Aminoácidos Sintéticos: Minimizar los excesos de proteína bruta reduce el costo energético del ciclo de la urea/ácido úrico, donde el ave gasta 5 moles de ATP por cada mol de nitrógeno excretado [1].
- Ajuste Dinámico por Temperatura: Incrementar la densidad de la EM proporcionalmente a la caída del consumo voluntario (estimada en un 1,5% por cada incremento de 1 °C por encima de los 24 °C) [16].
Uso de Gluconeogénicos y Lipasas para Optimizar el Aprovechamiento Energético
Mecanismos de Acción de Precursores Gluconeogénicos
En fases metabólicas críticas o baja ingesta calórica, las aves dependen de la vía gluconeogénica hepática para sintetizar glucosa a partir de precursores no glucosídicos como el glicerol, propionato y lactato. La adición de precursores gluconeogénicos exógenos (como el 1,2-propanodiol o sales propiónicas) proporciona carbono directo al ciclo de Krebs sin el costo energético metabólico de la desaminación de aminoácidos [33].
Suplementación con Lipasas Exógenas y Enzimas NSP
Las lipasas exógenas incrementan la hidrólisis de los triglicéridos de cadena larga en la luz intestinal, liberando monoacilglicéridos y ácidos grasos libres para su posterior solubilización micelar [5].
Al combinarse con enzimas hidrolizantes de Polisacáridos No Almidonados (NSPasas: xilanasas y glucanasas), se reduce la viscosidad de la digesta y se elimina el efecto "jaula" de las paredes celulares vegetales, liberando almidones y lípidos ocluidos [5].
Lisofosfolípidos y Emulsificantes en la Digestibilidad de Grasas y Lípidos Avícolas
Fisiología de la Digestión de Lípidos en Aves Jóvenes
La capacidad emulsificante natural del pollito es deficiente durante los primeros 14 días de vida debido a una secreción inmadura de sales biliares conjugadas [15]. Los lípidos insaturados (aceite de soya) se incorporan con relativa facilidad en micelas mixtas, pero los ácidos grasos saturados (palma, sebo bovino) requieren una fase de emulsificación física muy intensa [15].
Modulación del Balance Hidrofílico-Lipofílico (HLB) con Lisofosfolípidos
Los lisofosfolípidos (LPL), obtenidos por la hidrólisis enzimática de la lecitina mediante la enzima fosfolipasa A2 (PLA2), poseen un elevado índice HLB (Balance Hidrofílico-Lipofílico). Esta estructura molecular con un solo ácido graso les confiere mayor afinidad en ambientes acuosos intestinales, reduciendo el tamaño de las gotas de emulsión de 10-50 µm a micelas de 0,1-1 µm [15].
Triglicéridos + Sal Biliar + Lisofosfolípido (HLB Elevado)
                         |
                         v
   Gotas Emulsionadas Reducidas (0,1 a 1,0 µm)
                         |
                         v
  Mayor Superficie de Ataque para Lipasa Pancreática
                         |
                         v
Absorción Pasiva Incrementada en el Borde en Cepillo Intestinal
La adición de lisofosfolípidos en dietas con matrices reducidas permite liberar entre 75 y 120 kcal/kg de EM, mejorando la conversión alimenticia global de 3 a 5 puntos [15].
Efecto de Dietas de Baja Densidad Energética Suplementadas con Butirato de Sodio
Mantenimiento de la Integridad Intestinal y Superficie de Absorción
El butirato de sodio (especialmente en sus formas protegidas o microencapsuladas) actúa como la fuente energética primaria para los colonocitos y enterocitos maduros [10]. Al ser un ácido graso de cadena corta (AGCC), estimula la proliferación celular en las criptas intestinales, incrementando la altura de las vellosidades y la relación vellosidad/cripta en el yeyuno e íleon [10].
Matriz Nutricional y Ahorro Calórico del Butirato Protegido
Cuando se emplean dietas con densidades reducidas en 50-80 kcal/kg de EM por ahorro de costos en grasas añadidas, la inclusión de butirato de sodio microencapsulado compensa esta brecha mediante tres mecanismos clave:
- Estimulación de la Secreción Enzimática Exógena: Incrementa la producción endógena de tripsina, amilasa y lipasa pancreática.
- Reducción del Costo de Mantenimiento Intestinal: Minimiza la inflamación subclínica y la recarga de recambio proteico (turnover) enterocítico [10].
- Sinergia con AGCC Endógenos: Modula la microbiota benéfica (aumento de Lactobacillus spp. y Bifidobacterium spp.), la cual produce energía calórica de fermentación absorbible a nivel cecal.
Preguntas Frecuentes (FAQ)
Q: ¿Qué es energía en nutrición animal? A: Es la capacidad calórica disponible en los enlaces químicos de carbohidratos, lípidos y proteínas de los alimentos, requerida por el animal para sus procesos metabólicos vitales de mantenimiento, crecimiento, reproducción y síntesis hística [1].
Q: ¿Qué diferencia existe entre la Energía Metabolizable (EM) y la Energía Neta (EN) en aves? A: La energía metabolizable descuenta las pérdidas energéticas en heces y orina, mientras que la energía neta descuenta adicionalmente el incremento calórico (calor producido durante la digestión y metabolismo), evitando sobreestimar insumos ricos en fibra o proteína.
Q: ¿Cuál es el beneficio de los lisofosfolípidos frente a los emulsificantes tradicionales? A: Al poseer un índice HLB superior gracias a la acción de la fosfolipasa A2, los lisofosfolípidos reducen el tamaño de las gotas de emulsión a micelas submicrónicas (0,1 a 1,0 µm), facilitando el ataque de la lipasa y mejorando la absorción de grasas saturadas en pollitos jóvenes.
Q: ¿Cómo afecta la temperatura de secado del maíz a su valor calórico? A: Secar el grano a temperaturas superiores a 80 °C cristaliza el almidón haciéndolo resistente a la digestión enzimática y desencadena reacciones de Maillard que bloquean la lisina, provocando pérdidas de hasta 100 a 114 kcal/kg de energía metabolizable.
Q: ¿Por qué la energía neta es más precisa que la energía metabolizable en aves? A: La energía neta descuenta el incremento calórico derivado de la digestión y metabolismo de los insumos, previniendo la sobreestimación calórica de ingredientes con alta proteína o fibra [10], [11].
Q: ¿Cómo influye el tamaño de partícula del maíz en el aprovechamiento energético? A: Un tamaño de partícula de 900 a 1.000 µm estimula el desarrollo de la molleja, ralentiza el tránsito digestivo y mejora la digestibilidad del almidón y la retención de nitrógeno [25].
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
Horácio Santiago Rostagno: Cálculo de Energía Metabolizable en Maíz para Aves
-
Mingan Choct: Feed Composition: Key to Poultry Net Energy Utilization
-
Prof. Horacio Santiago Rostagno: Energia Metabolizável em Rações Vegetais para Aves
-
Jorge Labala: Energía neta: optimización en dietas porcinas
-
Mingan Choct: Feed Enzymes & Net Energy: Advances in Poultry Nutrition
-
Douglas Zaviezo: Secado rápido de maíz reduce 100 kcal/kg en aves
-
Diego Martinez Patiño-Patroni: Body Composition Enhances Net Energy Model Accuracy
-
José Henrique Stringhini: Ensayos in vivo para harina de soja
-
Diego Martinez Patiño-Patroni: Evaluación de Energía Metabolizable en Pollos de Engorde
-
Diego Martinez Patiño-Patroni: Energía Productiva: Nuevo Paradigma en Nutrición de Pollos
-
Marcio Ceccantini: Eficiencia de Energía Neta en Aves
-
Sandro Cerrate: Net Energy: Key to Poultry Feed Conversion
-
Mari Mosquera, Sandra Portilla, Fredy Lopez: Fórmula de Energía Metabolizable en Pollos
-
Barbara Rodriguez Sanchez: Diferencia entre EMA y EMAn en aves en crecimiento
-
Dave Albin: Edad del Pollo y Utilización de Energía de Grasas
-
Gabriel Mallo: Temperatura y Energía en Ponedoras
-
Sergio Gómez Rosales: Energía metabolizable y peso de canal en pollos
-
Luiz Fernando Teixeira Albino, Valdir Ribeiro Junior, Sandra Carolina Salguero Cruz y Horácio Santiago Rostagno: Ecuación de Energía Metabolizable para Ponedoras (UFV 2011)
-
Dr. Jorge D’Alessandro: Avances Nutricionales en Pollos
-
Hector Navarro: Valores de EMA en dietas de pollos
-
Polyana Andrade, SS Vieira, CS Aguiar MSV Santos: Energía metabolizable y desempeño en pollos Campero Francés Barrado
-
Gonzalo G Mateos, Lourdes Cámara, Guillermo Fondevila Y R. P. Lázaro: Discrepancias en Tablas de Energía para Aves
-
Justina Caldas: Determinación de EM de mantenimiento en pollos
-
Dave Albin: Grasa Dietaria y Energía Metabolizable en Pollos de Engorde
-
Antônio Mário Penz Junior: Tamaño de partícula y digestibilidad en pollos
-
FG Perazzo Costa et al.: Energía Metabolizable Óptima para Pollos de Engorde
-
Joaquin A. Paulino: Soya Integral + DDGS: Combinación Nutricional en Aves y Cerdos
-
Gustavo Wassermann: Maíz y pelletizado: clave en nutrición avícola
-
Gilberto Antonio Martins Bade: Milho na Ração de Aves: Energia e Pigmentação
-
Joaquin A. Paulino: Métodos Rápidos para Evaluar AA Digestibles en Aves
-
Federico A. Gomez: Fósforo Disponible vs. Fósforo No Fítico en Aves
-
Patricia Reina Mejía: Cálculo de EM en Aves desde DIVMS
-
Enrique Diaz: Proteína y energía en dietas avícolas
-
Fernando Patiño: Predicción de EM en Aves por Análisis Proximal
-
Akbar Yaghobfar: NE Superior to AMEn/TMEn for Poultry Feeds


Brasil


Nueva Zelanda