Pigmentación en Pollos de Engorde: Guía Zootécnica de Xantofilas, Salud Intestinal y Manejo
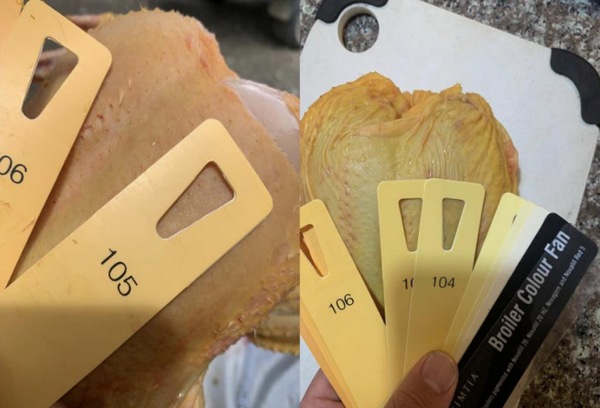
La pigmentación en pollos de engorde es la deposición metabólica de carotenoides oxyoxigenados en la piel y grasa subcutánea. Su optimización se implementa mediante la suplementación balanceada de xantofilas, manteniendo umbrales de 50 ppm a 74 ppm en la dieta y temperaturas de escaldado inferiores a 54 °C, lo que previene la palidez cutánea y optimiza la calificación colorimétrica de la canal [11].
- Desafío Técnico y Causa Primaria: La falta de pigmentación en pollos de engorde surge por malabsorción intestinal lipídica, producida por Eimeria, micotoxinas y deficiencia biliar.
- Impacto Cuantitativo: Pérdida de hasta 4.5 unidades en la escala colorimétrica b*, caídas del 35% en la concentración plasmática de carotenoides y rechazo comercial total de la canal.
- Protocolo de Intervención Verificado: Suplementación de 74 ppm de xantofilas naturales de Tagetes erecta con 6 ppm de cantaxantina, adición de 80 mg/kg de ácidos biliares exógenos y escaldado controlado a 52 °C.
Xantofilas y Carotenoides en Dietas para Broilers
La adición de 50 ppm a 74 ppm de xantofilas totales en la dieta finalizadora incrementa la pigmentación cutánea en un 40% en comparación con dietas basales no suplementadas [22].
Bioquímica y Clasificación de Carotenoides Aves
Las xantofilas son carotenoides oxigenados polares que representan más del 90% de los pigmentos depositados en los adipocitos cutáneos de los broilers [11]. A diferencia de los carotenos hidrocarbonados puros como el beta-caroteno (que poseen función provitamínica A y se escinden enzimáticamente en la mucosa entérica), las xantofilas contienen grupos hidroxilo, cetónicos o epoxi en sus anillos terminales ionona [6]. Esta estructura molecular oxigenada disminuye la actividad provitamínica pero aumenta su polaridad, permitiendo su almacenamiento directo en la piel, epidermis, tarsos y tejido adiposo subcutáneo [20].
Los pigmentos amarillos primarios utilizados en avicultura son la luteína y la zeaxantina, hidrocarburos dihídricos cuya estructura les permite absorber luz en la longitud de onda de 440 nm a 460 nm [21]. Por su parte, la cantaxantina y la capsantina representan xantofilas rojas dicetónicas que absorben longitudes de onda superiores a 470 nm, generando la tonalidad anaranjada-dorada requerida por los mercados consumidores [2][20].
Fuentes Naturales y Sintéticas de Xantofilas
El extracto saponificado de Tagetes erecta provee concentraciones de luteína libre superiores al 85%, garantizando una alta biodisponibilidad digestiva en el yeyuno [19]. Las fuentes naturales primarias derivan del extracto de flor de Cempasúchil (Tagetes erecta), el cual contiene ésteres de luteína que deben someterse a un proceso industrial de saponificación alcalina para liberar la luteína en su forma no esterificada [22]. Las xantofilas libres se absorben con una eficiencia 2.5 veces mayor en el intestino delgado del pollo en comparación con las formas esterificadas [14].
Las alternativas sintetizadas, como la apo-8'-éster etílico del ácido carotenoico (apocarotenoide amarillo) y la cantaxantina (pigmento rojo sintético), exhiben una estabilidad térmica superior a 90 °C durante los procesos de acondicionamiento y peletizado del alimento balanceado [11]. La inclusión de harina de hojas de Moringa oleifera o aceite de palma rojo representa una estrategia complementaria de origen vegetal para reforzar el perfil de carotenoides naturales en raciones de inicio y acabado [1][28].
| Fuente Pigmentante | Tipo de Carotenoide | Concentración Promedio | Biodisponibilidad Lipídica | Referencia |
|---|---|---|---|---|
| Extracto de Tagetes erecta Saponificado | Luteína / Zeaxantina (Amarillo) | 12.000 mg/kg a 20.000 mg/kg | Alta (85% a 92%) | [22] |
| Harina de Maíz Amarillo (Zea mays) | Zeaxantina / Luteína (Amarillo) | 15 mg/kg a 25 mg/kg | Media (60% a 70%) | [32] |
| Apocarotenoéster (Sintético) | Éster etílico Apo-8' (Amarillo) | 100.000 mg/kg | Muy Alta (>95%) | [11] |
| Cantaxantina (Sintética) | Cantaxantina (Rojo) | 100.000 mg/kg | Muy Alta (>95%) | [2] |
| Extracto de Pimentón (Capsicum annuum) | Capsantina / Capsorrubina (Rojo) | 5.000 mg/kg a 10.000 mg/kg | Media-Alta (75% a 80%) | [20] |
| Harina de Hoja de Moringa oleifera | Luteína / Beta-caroteno | 250 mg/kg a 350 mg/kg | Media (65% a 72%) | [1] |
"El uso estratégico de combinaciones de carotenoides rojos y amarillos permite saturar los receptores epidérmicos eficientemente, logrando la tonalidad deseada con un menor costo total de inclusión por tonelada de alimento." — Dr. Sergio Fernández, DSM Nutritional Products [11]
Absorción de Pigmentos y Salud del Eje Hígado-Páncreas-Intestino
La eficiencia de fijación de xantofilas en la grasa subcutánea depende en un 95% de la integridad de la mucosa intestinal y de la presencia de micelas lipídicas estables [15].
Proceso de Emulsificación y Transporte Micelar
Las sales biliares endógenas reducen la tensión superficial de los lípidos dietéticos, permitiendo la formación de micelas mixtas de 4 a 8 nanómetros de diámetro [15]. Debido a su naturaleza hidrofóbica, los carotenoides no pueden atravesar la capa de agua no agitada que recubre el epitelio intestinal de manera libre. Requieren incorporarse de forma obligatoria al núcleo apolar de las micelas compuestas por ácidos grasos libres, monoglicéridos, lisofosfolípidos y sales biliares [13].
Una vez que la micela entra en contacto con el borde en cepillo del enterocito yeyunal, la absorción del pigmento se realiza por difusión pasiva facilitada por transportadores de membrana específicos, tales como la proteína receptora Scavenger Receptor Class B Member 1 (SR-B1) y la proteína Niemann-Pick C1-Like 1 (NPC1L1) [15]. Dentro del enterocito, las xantofilas se reensamblan junto con triacilgliceroles y apolipoproteínas B-48 para formar portomicrones, los cuales son secretados al sistema venoso porta avícola y dirigidos al hígado [13].
Factores Lipídicos y Oxidación de las Xantofilas
Un índice de peróxidos superior a 10 mEq/kg en las grasas dietéticas reduce la estabilidad de las xantofilas en un 30% antes de su absorción enterocítica [16]. La adición de aceites rancio o grasas sobrecalentadas genera radicales libres que atacan los dobles enlaces conjugados de la cadena poliénica de las xantofilas, oxidándolas e inactivando de manera irreversible su capacidad de absorción cromática [16].
Para garantizar la máxima biodisponibilidad de los carotenoides, la formulación nutricional debe mantener una inclusión de grasa añadida de alta calidad (2% a 4%) con un perfil de ácidos grasos insaturados adecuado y respaldada por antioxidantes etoxiquina o BHT en concentraciones no inferiores a 125 ppm [13]. La molienda del grano de maíz con un tamaño de partícula de 0.8 mm a 1.1 mm favorece el desarrollo muscular de la molleja y estimula la secreción ácida y pancreática, optimizando el tránsito digestivo para la digestión lipídica [5].

| Etapa Fisiológica | Órgano / Tejido | Mecanismo Bioquímico | Factor Crítico de Eficiencia | Referencia |
|---|---|---|---|---|
| Saponificación / Liberación | Lumen Intestinal | Hidrólisis de ésteres por lipasa pancreática | pH duodenal de 5.8 a 6.4 y presencia de colipasa | [15] |
| Emulsificación Micelar | Yeyuno Superior | Solubilización por ácidos biliares exógenos y endógenos | Relación ácidos grasos:sales biliares > 1:0.5 | [15] |
| Captación Enterocítica | Borde en Cepillo Yeyunal | Transporte mediado por receptores SR-B1 y CD36 | Integridad estructural de vellosidades intestinales | [26] |
| Ensamblaje Portomicrónico | Retículo Endoplásmico | Empaquetamiento lipídico con Apo-B48 | Disponibilidad de aminoácidos estructurales y energía | [13] |
| Transporte Sistémico | Vena Porta / Torrente Sanguíneo | Complejo portomicrónico dirigido a hepatocitos | Ausencia de lesión endotelial y viremia sistémica | [13] |
| Secreción Lipoproteica | Hígado | Formación de VLDL lipoproteínas de muy baja densidad | Función metabólica hepática no comprometida | [15] |
| Depósito Subcutáneo | Piel y Tejido Adiposo | Lipólisis por lipoproteinlipasa y captación por adipocitos | Tiempo de consumo continuado > 21 días | [24] |
Impacto de la Coccidiosis por Eimeria en la Pigmentación de la Piel
La infección por Eimeria acervulina y Eimeria maxima reduce los niveles plasmáticos de carotenoides hasta en un 65% dentro de los 7 días posteriores al desafío [10].
Fisiopatología Lesional Duodenal y Yeyunal
La destrucción del epitelio apical por esquizontes de Eimeria inhibe la expresión del transportador lipídico Scavenger Receptor Class B Member 1 en los enterocitos [26]. Eimeria acervulina coloniza la mucosa del duodeno y yeyuno superior, mientras que Eimeria maxima ataca el yeyuno medio e íleon. Estas dos zonas constituyen el sitio exclusivo de solubilización micelar y absorción de xantofilas en las aves [10][26]. La invasión de los esporozoítos desgarra la membrana plasmática enterocítica, provocando el acortamiento y la fusión de las vellosidades, hiperplasia de las criptas y pérdida acelerada del borde en cepillo [10].
El proceso inflamatorio induce una fuga masiva de proteínas plasmáticas hacia la luz intestinal y altera el gradiente electroquímico necesario para el transporte activo de nutrientes [17]. La consiguiente hipersecreción de moco reduce el contacto de las micelas con la superficie epitelial. Adicionalmente, el daño en la mucosa inhibe la secreción de colecistocinina (CCK), disminuyendo la contracción de la vesícula biliar y la secreción de enzimas pancreáticas, lo que paraliza la emulsificación de lípidos y provoca la expulsión directa de las xantofilas en las excretas [15][35].
"Eimeria maxima es un parásito altamente inmunogénico que causa un severo daño tisular en el intestino; la pérdida de pigmentación en el ave infectada es directamente proporcional al incremento en la dosis de ooquistes infectivos." — M. en C. Benjamin Fuente Martinez, UNAM [10]
Protocolos de Recuperación del Color Post-Infección
El incremento de 20 ppm adicionales de xantofilas en la dieta durante los 7 días posteriores a la coccidiosis recupera el valor colorimétrico b* en la piel [10]. Dado que Eimeria maxima induce una respuesta inmune homóloga de desarrollo rápido pero deja secuelas morfológicas en la mucosa, las aves logran eliminar el parásito mediante inmunidad celular adaptativa en un período de 7 a 10 días post-infección [10].
Para acelerar el restablecimiento de la tasa de pigmentación requerida por las plantas procesadoras, se debe implementar una estrategia nutricional compensatoria:
- Ajuste de Pigmentación: Aumentar la concentración de xantofilas amarillas saponificadas en un 25% a 30% en el alimento finalizador durante la fase de recuperación (días 28 a 42 de vida) [10].
- Soporte Hepático y Biliar: Administrar ácidos biliares exógenos (80 mg/kg) junto con betaina natural (1.000 mg/kg) para remobilizar el transporte de pigmentos circulantes y restaurar la integridad hepatocelular [8][15].
- Control Coccidiano: Integrar ionóforos o anticoccidianos químicos alternados con programas de vacunación e inclusión de fitogénicos antioxidantes para mitigar el estrés oxidativo tisular [7][17].
Efecto de Micotoxinas y Disfunción Hepática en la Coloración
Niveles de aflatoxina B1 superiores a 20 ppb provocan una caída del 45% en el depósito de pigmentante subcutáneo debido a estasis biliar y degeneración hepática [12].
Mecanismos Hepatotóxicos de Aflatoxinas y Toxina T-2
Las micotoxinas interfieren con la síntesis de apolipoproteínas hepáticas VLDL, bloqueando el transporte del pigmento desde el hígado hacia la circulación periférica [13]. Las aflatoxinas (AFB1) son metabolizadas en el hígado por las enzimas del citocromo P450 para formar el epóxido AFBO, un compuesto reactivo que se une covalentemente al ADN y ARN celular. Esto bloquea la síntesis de proteínas, inhibiendo la producción de apolipoproteínas transportadoras de lípidos (VLDL y portomicrones) y generando un cuadro de esteatosis hepática (hígado graso) con degeneración vacuolar [12][15].
Por su parte, los tricotecenos como la toxina T-2 y el diacetoxiscirpenol (DAS) causan necrosis por contacto en el epitelio oral y en la mucosa intestinal, reduciendo la absorción efectiva de grasa [16]. Además, provocan hiperplasia de los conductos biliares e impiden la síntesis adecuada de sales biliares. Sin una concentración fisiológica de sales biliares en el lumen yeyunal, la micelización de los carotenoides decae marcadamente, derivando en un síndrome de despigmentación rápida o "pollo pálido" [12][17].
"La incorporación de biotransformadores de micotoxinas como FINTOX, basados en aluminosilicatos activados térmicamente y con ácidos, restablece la sanidad intestinal y hepática, permitiendo la plena asimilación de carotenoides." — MVZ Lorenzo Tlacomulco Oliva, IQ de México [12]
Estrategias de Adsorción y Biotransformación
La adición de aluminosiliconatos activados con ácidos reduce la biodisponibilidad de micotoxinas en el lumen intestinal, restaurando la pigmentación en un 90% [12]. El uso exclusivo de secuestrantes organofilicos simples resulta insuficiente ante desafíos mixtos que involucran micotoxinas zootécnicamente relevantes pero no polares, como zearalenona o fumonisinas [12].
Las formulaciones avanzadas de adsorbentes combinan bentonitas activadas, paredes celulares de levadura (Beta-glucanos y Manano-oligosacáridos) y enzimas biotransformadoras. Estas enzimas escinden los anillos lactónicos o grupos epoxi tóxicos de las micotoxinas, transformándolas en metabolitos no nocivos incapaces de lesionar la pared vascular intestinal o el parénquima hepático [12][17].
Uso de Ácidos Biliares y Aditivos Pigmentantes en el Alimento
La suplementación con 80 mg/kg de ácidos biliares exógenos incrementa la tasa de absorción de luteína en un 18.5% mediante la activación de la lipasa pancreática [15].
Sinergia Entre Ácidos Biliares y Phytobióticos
La combinación de fitobotánicos ricos en cinamaldehído y carotenoides naturales incrementa el rendimiento de canal pigmentada y reduce el índice de conversión en 4 puntos [6]. En las fases de crecimiento y finalización de broilers, la tasa de síntesis de ácidos biliares endógenos suele ser insuficiente para procesar dietas con elevadas inclusiones energéticas lipídicas. La adición de ácidos biliares exógenos en la formulación cumple tres funciones zootécnicas clave:
- Emulsificación Avanzada: Disminuyen el tamaño de la gota lipídica en el duodeno, multiplicando la superficie de contacto para las lipasas [15].
- Activación Enzimática: Alteran la conformación molecular de la lipasa pancreática, incrementando su actividad catalítica sobre los triglicéridos [15].
- Optimización Micelar: Actúan como transportadores de xantofilas hidrofóbicas a través de la capa de agua no agitada hacia la membrana del enterocito [15].
Por otra parte, la suplementación con moléculas fitogénicas antioxidantes como el cinamaldehído, carvacrol y timol estimula la secreción endógena de enzimas digestivas, reduce el recuento bacteriano inflamatorio (Clostridium perfringens) y previene la autodestrucción oxidativa de los carotenoides en la luz del tracto gastrointestinal [6][7].
Cuidados en la Faena y Preservación del Color del Pollo
El control de la temperatura de escaldado a un máximo de 53 °C previene la remoción de la capa epidérmica rica en pigmentos liposolubles [23].
Parámetros Térmicos de Escaldado y Desplume
Un incremento de la temperatura de escaldado por encima de 54 °C destruye el stratum corneum epidérmico, reduciendo la reflectancia b* en más de 3.5 unidades [23]. La pigmentación amarilla del pollo se localiza principalmente en la epidermis superior y la grasa subcutánea. Durante el procesamiento en la planta de faenamiento, la etapa de escaldado representa el punto crítico de mayor impacto sobre la retención final del color [23][34].
Si se aplica un escaldado duro (temperaturas entre 56 °C y 60 °C), la queratina epidérmica se desnaturaliza por completo y la piel exterior se desprende junto con las plumas durante el desplume mecánico. Esto deja expuesta la dermis, que carece de pigmentación, dando como resultado una canal pálida, moteada y de aspecto "escaldado" o blanco [17][23].
Por el contrario, el escaldado suave (temperaturas fijadas de 52 °C a 53.5 °C con un tiempo de inmersión de 120 a 150 segundos) preserva la epidermis intacta. Esto asegura que los carotenoides acumulados en los adipocitos y querocitos epidérmicos permanezcan en la superficie de la canal, garantizando el tono amarillo brillante exigido por los consumidores [23][34].
[Suplementación Dietética] -> [Absorción e Intestino Sano] -> [Depósito en Epidermis]
                                                                      |
                                                                      v
[Canal Pálida y Despellejada] <--- (Temp > 55 °C) <--- [Tanque de Escaldado] ---> (Temp 52-53.5 °C) ---> [Piel Intacta y Color Óptimo]
Oxidación Lipídica y Preservación Post-Faena
El mantenimiento de niveles suplementarios de Vitamina E (80 a 120 UI/kg) y selenio orgánico previene el enranciamiento de la grasa cutánea durante la refrigeración [7][9]. La degradación del color no se detiene tras el sacrificio del ave. Durante el enfriamiento en el chiller (0 °C a 2 °C) y la posterior distribución refrigerada, los ácidos grasos poliinsaturados subcutáneos sufren peroxidación fotoquímica y enzimática [7].
La utilización de antioxidantes hidrosolubles y liposolubles adicionados al agua de bebida o alimento durante los últimos 5 días de engorde protege la red de carotenoides depositada en la canal, evitando que la piel adquiera tonos grisáceos o verdosos producto del estrés oxidativo tisular [7][9].
Matriz de Puntos Críticos de Control en la Pigmentación Avícola
La implementación de una matriz de 10 Puntos Críticos de Control asegura la uniformidad del color cutáneo y minimiza el riesgo de decomiso comercial en la planta de beneficio [17].
| Punto Crítico (PCC) | Etapa Zootécnica | Parámetro Operativo | Límite Crítico / Meta | Medida Correctiva | Referencia |
|---|---|---|---|---|---|
| PCC 1: Control de Materias Primas | Recepción de Grano | Humedad del maíz y peróxidos en grasa | Humedad < 13.5% / Peróxidos < 5 mEq/kg | Rechazar lotes fuera de norma y dosificar antioxidantes | [16], [32] |
| PCC 2: Tasa de Saponificación | Fábrica de Alimentos | Porcentaje de xantofilas libres en premix | Saponificación mínima del 98% | Ajustar proveedor de pigmento Tagetes | [14], [22] |
| PCC 3: Tamaño de Partícula | Molienda | Granulometría DGM del maíz | 0.8 mm a 1.1 mm | Ajustar mallas y martillos del molino | [5] |
| PCC 4: Control de Micotoxinas | Mezclado | Aflatoxina B1 y Toxin T-2 totales | Aflatoxina B1 < 10 ppb / T-2 < 50 ppb | Adicionar adsorbente de aluminosilicato activado (FINTOX) | [12] |
| PCC 5: Salud Intestinal (Coccidiosis) | Crianza (Días 14-28) | Ooquistes por gramo (OPG) de Eimeria | OPG < 5.000 / Lesión entérica < 1 | Aplicar anticoccidiano en agua o pulso terapéutico | [10], [26] |
| PCC 6: Emulsificación Biliar | Crianza (Crecimiento) | Concentración de lipasa y sales biliares | Adición de 80 mg/kg de ácidos biliares | Suplementar emulsificantes exógenos en la dieta | [15] |
| PCC 7: Duración del Pigmentado | Finalización (Días 21-42) | Tiempo continuo de alimento pigmentado | Mínimo 21 días de consumo ininterrumpido | Reprogramar logística de despacho de alimento | [23], [24] |
| PCC 8: Ayuno Pre-Faena | Pre-Sacrificio | Tiempo de retiro de alimento en granja | 8 a 10 horas totales pre-sacrificio | Ajustar horarios de captura para evitar consumo de cama | [17] |
| PCC 9: Temperatura de Escaldado | Planta de Beneficio | Temperatura del agua del tanque | 52.0 °C a 53.5 °C máximo | Calibrar termostatos y flujo de agua continua | [23], [34] |
| PCC 10: Preservación en Chiller | Post-Sacrificio | Temperatura y tiempo en tanque de agua/hielo | Temperatura de salida de canal < 4 °C | Ajustar dosificación de hielo y flujo en chiller | [7], [23] |
Preguntas Frecuentes (FAQ)
Q: ¿Qué causa la falta de pigmentación en los pollos de engorde? A: La palidez cutánea es causada por el daño mucoso provocado por Eimeria acervulina y Eimeria maxima, niveles de aflatoxinas superiores a 20 ppb, deficiente emulsificación biliar de grasas o temperaturas de escaldado excesivas superiores a 54 °C en planta [10][12][23].
Q: ¿Qué tipo de xantofilas se utilizan para pigmentar la piel del pollo? A: Se utilizan xantofilas amarillas saponificadas procedentes de Tagetes erecta (luteína y zeaxantina) combinadas con carotenoides rojos como la cantaxantina o extractos de Capsicum annuum en dosis de 50 ppm a 74 ppm de alimento [2][19][22].
Q: ¿Cómo afecta la coccidiosis a la absorción de pigmentos en avicultura? A: Eimeria destruye el epitelio yeyunal y duodenal, reduciendo la superficie celular, inhibiendo los transportadores lipídicos SR-B1 y paralizando la formación de micelas, lo que disminuye las xantofilas plasmáticas hasta en un 65% [10][26].
Q: ¿Qué función cumplen los ácidos biliares en la pigmentación del pollo? A: Los ácidos biliares exógenos solubilizan las xantofilas hidrofóbicas, forman micelas mixtas de 4 nm a 8 nm y activan la lipasa pancreática, incrementando la absorción intestinal de la luteína en un 18.5% [15].
Q: ¿Cuál es la temperatura máxima de escaldado para preservar la pigmentación del pollo? A: La temperatura del agua de escaldado no debe superar los 53.5 °C para mantener la capa epidérmica rica en pigmentos liposolubles y evitar el despellejamiento durante el proceso mecánico de desplume [23][34].
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
Mariana Ramirez: Moringa oleifera mejora pigmentación en pollos sin afectar producción
-
Lucio Araujo: Cantaxantina y D3 mejoran ganancia de peso y conversión en pollos
-
Francisco Pallini: Dosis de Excecolor 11 para color de yema óptimo
-
José Henrique Stringhini: Nutrición inicial y pechuga de madera en pollos
-
Douglas Zaviezo: Molienda gruesa mejora digestión y camas en pollos de engorde
-
John Furness: Phytonutrients: Broiler Growth & Digestibility
-
Juan Mateo Lees: PhytoShield: Antioxidantes para Calidad de Carne en Aves
-
Pedro Deluchi: Betaína mejora peso y conversión en pollos
-
Alexandre da Silva Sechinato: Microminerales CAF reducen estrés oxidativo en pollos de engorda
-
Benjamin Fuente Martinez: Eimeria máxima y pigmentación en pollos de engorde
-
Dr. Sergio Fernández: Color y Calidad: Impacto de la Pigmentación en Productos Avícolas
-
MVZ Lorenzo Tlacomulco Oliva: FINTOX: Mejora Pigmentación en Pollos de Engorda
-
Andres Rocca (Seagro): Nutrición y Salud en Pigmentación Avícola
-
Juan Sebastián Zambrano Mora y Diego Fernando Rodríguez Saldaña: Eficacia de Xantofilas Líquidas en Pigmentación Avícola
-
Cristo Yang y Roy Zhang: Factores clave en la pigmentación de pollos de engorde
-
Roberto Q. López Martínez: Factores que afectan pigmentación en pollos
-
Hans Mann; Ricardo Galindo; y Rebeca García: Fallas de pigmentación en pollos: Causas y manejo
-
Gerardo Villalobos Saume: Métodos de Evaluación de Pigmentación en Pollos
-
Morales, LR., Fernando Cisneros, Dr. Sergio Fernández. DSM Nutritional Products.: Dosis de Xantofilas Amarillas en Pollos de Engorda
-
Dr. Sergio Fernández: Carotenoides y color de piel en pollos de engorda
-
Eric Lee, Lachance: Dosis de Luteína en Pollos de Engorde
-
Xóchitl Hernández Velasco: Niveles de xantofilas naturales en dieta de pollos
-
Moisés Mendoza Alvarez: Precauciones para Pigmentación Eficaz en Broiler
-
María de los Ángeles Tepox Pérez: Tiempo de consumo de xantofilas y pigmentación avícola
-
Cristo Yang, Andrés Zhao: Factores clave para la pigmentación amarilla en pollos
-
Xóchitl Hernández Velasco: Dosis de Eimeria acervulina vs. pigmentación en pollos
-
Catherine Hamelin, Jose María Hernández, Ricardo Martínez-Alesón: Cantaxantina mejora color en pollos estresados
-
Rodolfo Ruiz Posada, Julio César Rodríguez Galvis, Luis O. Hernández: Fruto de Palma y Pigmentación en Pollos
-
Antônio Mário Penz Júnior: Color y grasa del pollo: efecto de dieta y edad, no hormonas
-
Tuffi Bichara: Color de Luz: Impacto en Comportamiento y Conversión Avícola
-
Andres Pedro Collahuazo Culcay: Factores del color de la cáscara de huevo
-
Gilberto Antonio Martins Bade: Milho na Ração de Aves: Energia e Pigmentação
-
Andres Rocca Asencios: Factores Despigmentantes en Pollos de Engorde
-
Adrián Gandini: Carotenoides para Color Amarillo en Pollo
-
Vicente Trujillo Figueroa: Factores de pigmentación en pollos de engorde