Nutrición y Eficiencia Reproductiva en Bovinos: Estrategias de Suplementación Pre y Postparto
La nutrición y eficiencia reproductiva en bovinos es la integración estratégica de aportes energéticos, proteicos y microminerales durante la transición gestacional y posparto. Su optimización se implementa mediante suplementación de precisión y monitoreo metabólico, manteniendo umbrales de condición corporal mayores a 2,75 e ingesta de materia seca adecuada, lo que previene el anestro posparto y optimiza la tasa de preñez al primer servicio [17].
- Desafío Técnico y Causa Primaria: La falla en la nutrición y eficiencia reproductiva en bovinos surge por el balance energético negativo posparto y déficit micromineral.
- Impacto Cuantitativo: Retraso del reinicio de la ciclicidad de 45 a 90 días, caída del 30% en la tasa de concepción y mermas del 15% en el peso al destete.
- Protocolo de Intervención Verificado: Monitoreo de β-hidroxibutirato en sangre (<1,2 mmol/L), suplementación con urea feed grade al 1% de la ración y 60 g/día de minerales quelados.
Balance Energético Negativo y Anestro Posparto en Vacas
El balance energético negativo posparto reduce la concentración plasmática de insulina e IGF-1 por debajo de 0,5 ng/mL, inhibiendo la frecuencia de pulsos de hormona luteinizante y extendiendo el anestro anovulatorio más de 60 días.
Durante el periodo de transición (tres semanas previas al parto y tres semanas posteriores), la demanda energética para el mantenimiento y la síntesis de colostro o leche supera ampliamente la capacidad de ingesta de materia seca (IMS) de la vaca [26]. Esta brecha fisiológica obliga al rumiante a movilizar sus reservas corporales en forma de ácidos grasos no esterificados (NEFA) desde el tejido adiposo. Cuando la tasa de movilización lipídica sobrepasa la capacidad de β-oxidación del hígado, los NEFA se reconvierten parcialmente en cuerpos cetónicos, principalmente β-hidroxibutirato (BHBA). Un nivel sanguíneo de BHBA superior a 1,2 mmol/L diagnostica cetosis subclínica, alterando la viabilidad oocitaria y suprimiendo la expresión de receptores hormonales a nivel ovárico [30].
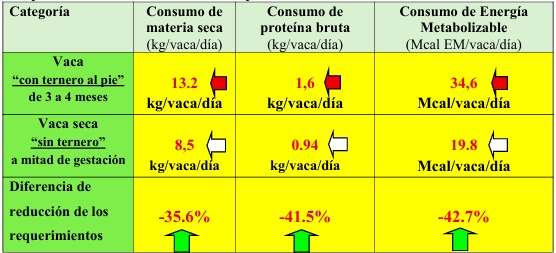
La secreción pulsátil de la hormona liberadora de gonadotropinas (GnRH) por el hipotálamo se ve gravemente suprimida bajo estados de hipoglucemia e hipoinsulinemia. La señalización metabólica involucra a neuropeptidos como la grelina, cuya concentración plasmática se eleva en situaciones de déficit calórico crónico, actuando como un inhibidor central de la secreción de hormona luteinizante (LH) [16]. Sin una frecuencia alta de pulsos de LH (al menos un pulso cada 1 a 2 horas), el folículo dominante en desarrollo no logra culminar su maduración ni alcanzar el diámetro mínimo ovulatorio (10 a 12 mm en razas cebuinas, 12 a 15 mm en razas taurinas), derivando en atresia folicular recurrente o anestro profundo [31], [32].
"La duración y magnitud del balance energético negativo están directamente relacionadas con el tiempo necesario para la reanudación de los ciclos ováricos regulares posparto, condicionando la tasa de preñez acumulada en el rodeo." — Juan Carlos Dominguez Tejerina, Especialista en Reproducción Bovino [26]
| Parámetro Fisiometabólico | Estado de Eubalance Energético | Balance Energético Negativo Severo | Impacto en la Función Ovárica | Referencia |
|---|---|---|---|---|
| Condición Corporal (Escala 1-5) | 2,75 a 3,25 | Menor a 2,25 | Supresión de la onda folicular y menor LH | [17] |
| Insulina Plasmática | 1,2 a 2,5 µUI/mL | Menor a 0,5 µUI/mL | Cese de maduración folicular | [18] |
| IGF-1 Sérico | 120 a 200 ng/mL | Menor a 50 ng/mL | Disminución de la sensibilidad folicular a FSH | [26] |
| NEFA Sanguíneo | Menor a 0,3 mEq/L | Mayor a 0,7 mEq/L | Citotoxicidad directa en el oocito | [30] |
| BHBA Sanguíneo | Menor a 0,9 mmol/L | Mayor a 1,2 mmol/L | Inhibición de la tasa de concepción | [30] |
| Diámetro Folicular Máximo | 12,0 a 16,0 mm | 6,0 a 9,0 mm | Falla ovulatoria y anestro | [32] |
| Pulsatilidad de LH | 1 pulso / 60-90 min | 1 pulso / 4-6 horas | Incapacidad de desencadenar el pico ovulatorio | [16] |
| Pérdida de Peso Vivo Posparto | Menor al 5% | Mayor al 10% | Prolongación del intervalo parto-primer servicio | [33] |
| Tasa de Concepción al 1° Servicio | 55% a 65% | Menor al 30% | Incremento de vacas vacías al cierre de servicio | [7] |
| Intervalo Parto-Concepción | 80 a 95 días | Mayor a 130 días | Pérdida de la eficiencia de un ternero/año | [34] |
Para contrarrestar el balance energético negativo, el monitoreo constante de la condición corporal al parto (manteniendo valores no inferiores a 2,75 en escala 1-5) es la herramienta predictiva más costo-efectiva [17]. La gestión nutricional debe orientarse a maximizar la densidad energética de la ración mediante forrajes de alta digestibilidad de la pared celular y suplementación concentrada balanceada.
Suplementación con Urea Protegida de Liberación Lenta y Nitrógeno Ruminal
La adición de nitrógeno no proteico mediante urea protegida estabiliza la concentración de amoniaco ruminal entre 10 y 25 mg/dL, optimizando la síntesis de proteína microbiana sin elevar el nitrógeno ureico en sangre por encima de 18 mg/dL.
La ecología microbiana del rumen requiere una fuente constante de amoniaco (N-NH3) para la síntesis de aminoácidos y biomasa proteica, la cual abastece hasta el 80% de los requerimientos de proteína metabolizable de la vaca. La urea agrícola tradicional posee una tasa de solubilidad hiperaguda, hidrolizándose completamente en el rumen en menos de 60 minutos por acción de la enzima ureasa bacteriana. Esta liberación desincronizada genera picos tóxicos de amoniaco que sobrepasan la capacidad de captura microbiana y la función desintoxicante hepática, incrementando el nitrógeno ureico en sangre (BUN) y en leche (MUN). Altos niveles de BUN (>18-20 mg/dL) alteran el pH uterino, volviéndolo tóxico para el embrión antes de su implantación [2].
La utilización de urea de grado alimenticio (feed grade) o protegida con polímeros de liberación lenta permite desintegrar el grano gradualmente durante un periodo de 8 a 12 horas. Esto asegura una sincronía exacta entre la disponibilidad de nitrógeno y la degradación de la fibra o almidones ruminales. Además, el uso de ureas feed grade garantiza estándares estrictos de inocuidad internacional bajo normativas ISO GMP+ y FAMI-QS, eliminando contaminantes o segregaciones granulométricas asociadas a la urea agrícola industrial [2].
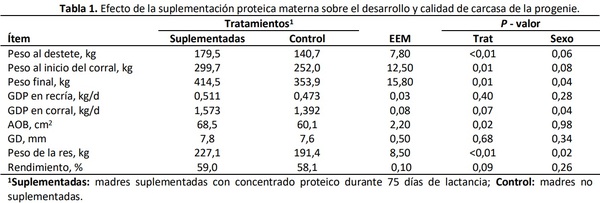
Las investigaciones demuestran que la suplementación proteica materna no solo estabiliza el estado metabólico de la hembra durante la lactancia, sino que ejerce un efecto directo sobre el desarrollo de la progenie. Dietas ajustadas con concentrados proteicos (ej. 30% de proteína bruta) durante los primeros 75-90 días de lactancia incrementan sustancialmente la ganancia diaria de peso del ternero al destete y mejoran el rendimiento en canal en la etapa de terminación [5].
Impacto de los Microminerales (Cobre, Zinc y Selenio) en la Fertilidad Bovina
La deficiencia de microminerales como cobre, zinc y selenio reduce la tasa de preñez hasta en un 30% al alterar la capacidad antioxidante folicular y comprometer la supervivencia embrionaria temprana.
Los oligoelementos desempeñan un rol estructural y catalítico indispensable en el sistema enzimático antioxidante del tracto reproductor. El selenio, como componente central de la enzima glutatión peroxidasa (GSH-Px), y el cobre y zinc, constitutivos de la superóxido dismutasa (SOD Cu/Zn), protegen las membranas del ovocito y del tejido luteal frente al estrés oxidativo generado por las especies reactivas del oxígeno (ROS) [27]. En vacas de cría e indivuduos lecheros de alta producción, la deficiencia de selenio se asocia directamente con retención de placenta, endometritis subclínica y reabsorción embrionaria precoz.
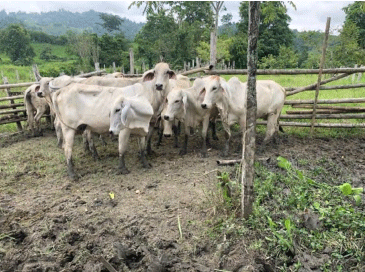
En el caso del cobre, la dinámica metabólica varía sustancialmente según el estado fisiológico de la vaca. Durante el último tercio de gestación, ocurre una intensa transferencia placentaria activa de cobre desde el hígado materno hacia el feto para construir las reservas hepáticas neonatales. Estudios en vacas Brahman demuestran que los niveles de cobre sérico sufren una disminución progresiva en hembras gestantes en comparación con vacas vacías alimentadas con la misma dieta base [9]. Si no se ajusta la oferta mineral mediante la inclusión de quelatos o sales inyectables, la madre cae en hipocupremia severa (<0,6 ppm de Cu sérico), interrumpiendo el desarrollo folicular y disminuyendo la manifestación del estro.
"El monitoreo sistemático de los niveles de cobre y selenio permite prevenir fallas ovulatorias y mejorar radicalmente la tasa de supervivencia del embrión antes de la implantación uterina." — Dr. Guillermo Mattioli, Especialista en Minerales en Nutrición Animal [27]
La suplementación mineral estratégica debe considerar la biodisponibilidad de la fuente. Las fuentes orgánicas (minerales quelados con aminoácidos o hidrolizados de proteína) evitan los antagonismos a nivel ruminal provocados por el molibdeno, azufre e hierro, garantizando tasas de absorción intestinal hasta dos veces superiores respecto a las sales sulfatadas o de óxido [8], [27].
Uso de Ácidos Grasos Omega-3 para Mejorar la Calidad Oocitaria y Gestación
La inclusión de ácidos grasos insaturados de sobrepaso ruminal en un 1% a 2% de la materia seca incrementa el diámetro del folículo dominante en 2,3 mm y acorta la reanudación de la ciclicidad ovárica a menos de 40 días posparto.
Los lípidos de sobrepaso o grasas inertes a nivel ruminal (principalmente sales de calcio de ácidos grasos de cadena larga) constituyen un recurso denso en energía (alrededor de 6,5 Mcal de ENL/kg MS) que permite aumentar la densidad calórica de la ración sin alterar la fermentación fribrolítica ruminal [10]. Más allá de su aporte puramente calórico, la composición de los ácidos grasos suplementados ejerce un efecto modulador directo sobre el perfil endocrino y prostaglandínico del sistema reproductivo [13].
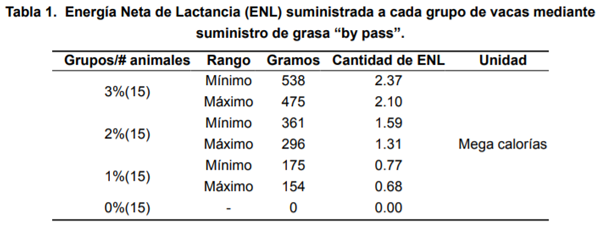
Los ácidos grasos poliinsaturados (PUFA) de la familia Omega-3 (como el ácido eicosapentaenoico [EPA] y docosahexaenoico [DHA]) actúan suprimiendo la expresión de la enzima ciclooxigenasa-2 (COX-2) en el endometrio uterino. Esta supresión disminuye la síntesis de Prostaglandina F2α (PGF2α), el agente luteolítico natural. Al inhibir los picos de PGF2α alrededor del día 15 a 17 del ciclo estral, se previene la regresión prematura del cuerpo lúteo, otorgando una ventana temporal crítica para que el embrión secrete interferón tau (IFN-t) y concrete el reconocimiento materno de la gestación [13]. Asimismo, la adición de colesterol preformado mediante la digestión lipídica intestinal aporta el sustrato esteroideo primario para que las células de la teca y granulosa sinteticen mayores concentraciones de progesterona, hormona clave en la preparación del histotrofo y la nutrición embrionaria inicial [10].
Estrategias de Suplementación Preparto y Flushing Nutricional en IATF
El flushing nutricional incrementa la tasa de ovulación en un 12% a 18% cuando se suministran dietas hiperenergéticas durante los 21 días previos a los protocolos de Inseminación Artificial a Tiempo Fijo.
La implementación del flushing (aumento transitorio del plano nutricional energético-proteico) tiene como objetivo generar un pico metabólico de glucosa, insulina e IGF-1 en el torrente sanguíneo. Esta elevación hormonal estimula la foliculogénesis ovárica, incrementando el reclutamiento de folículos y acelerando su tasa de crecimiento. En programas de IATF, el flushing aplicado durante tres semanas consecutivas antes de la colocación del dispositivo intravaginal de progesterona eleva el diámetro del folículo ovulatorio y la subsiguiente área funcional del cuerpo lúteo, mejorando la respuesta a la sincronización estral [29].
Adicionalmente, la nutrición materna durante la gestación media y tardía determina el fenómeno de la "programación fetal". Las intervenciones nutricionales en esta fase impactan la miogénesis y la adipogénesis embrionaria, procesos que ocurren de manera irreversible durante la vida intrauterina [14], [19]. Una restricción proteico-energética en la vaca gestante reduce la formación de fibras musculares secundarias y de precursores de adipocitos marmoleados en el feto. Por el contrario, una adecuada suplementación preparto garantiza terneros con mayor peso al nacimiento, mejor vigor neonatal y una ganancia diaria de peso superior en la recría y engorde [23], [25].
| Punto Crítico de Control (PCC) | Etapa Nutricional / Fisiológica | Parámetro Metodológico Objetivo | Riesgo Zootécnico por Incumplimiento | Protocolo de Corrección Nutricional | Referencia |
|---|---|---|---|---|---|
| PCC 1: Evaluación de Condición Corporal | Preparto (Día -60) | CC entre 2,75 y 3,25 (Escala 1-5) | Anestro prolongado y falla en IATF | Asignación de forrajes de alta calidad e incremento de energía | [17] |
| PCC 2: Balance Aniónico Preparto | Transición Preparto (Día -21) | pH urinario entre 6,0 y 6,5 | Hipocalcemia subclínica y distocias | Inclusión de sales aniónicas (DCAD de -10 a -15 mEq/100g MS) | [20] |
| PCC 3: Sincronía Nitrógeno-Energía | Lactancia Temprana | N-NH3 ruminal entre 10 y 25 mg/dL | Hiperamonemia y citotoxicidad uterina | Uso de urea protegida feed grade al 1% de la MS total | [2] |
| PCC 4: Control de Cuerpos Cetónicos | Posparto Temprano (Día +14) | BHBA sanguíneo menor a 1,2 mmol/L | Cetosis subclínica y atresia folicular | Suplementación con propilenglicol o precursores gluconeogénicos | [30] |
| PCC 5: Suplementación con PUFA | Preservicio (Día -21 al Día 0) | Inclusion de 1,5% a 2,0% de grasa inerte | Regresión luteal precoz por PGF2α | Adición de sales de calcio de ácidos grasos Omega-3 | [10] |
| PCC 6: Suministro de Microminerales | Gestación Tardía | Cobre sérico mayor a 0,7 ppm | Hipocupremia fetal y menor tasa de preñez | Aplicación de microminerales quelados solubles (Cu, Zn, Se) | [9] |
| PCC 7: Programación Fetal Proteica | Segundo Tercio de Gestación | Aporte de PB mínimo del 10% en la dieta | Menor densidad de fibras musculares en terneros | Suplementación proteica estratégica con bloques o concentrados | [15] |
| PCC 8: Mitigación de Micotoxinas | Manejo de Silajes / Forrajes | Aflatoxinas menores a 20 ppb | Inmunosupresión y pérdida embrionaria | Adición de secuestrantes organominerales o paredes de levadura | [1] |
| PCC 9: Mitigación de Toxicosis | Pastoreo de Festucas | Ergovalina menor a 200 ppb | Vasoconstricción e hipertermia por estro | Intercalación con leguminosas y desmoche de la pradera | [3] |
| PCC 10: Ingesta de Materia Seca | Posparto (Día 0 al Día +45) | IMS mayor al 3% del Peso Vivo | Aumento exponencial del balance energético negativo | Ajuste de palatabilidad y restricción de fibra indigestible | [12] |
Efecto de la Toxicosis por Festuca y Factores Nutricionales en el Desarrollo Folicular
El consumo de festuca infectada con endófitos ergovalínicos deprime el diámetro del folículo dominante en 1,8 mm y reduce la tasa de concepción en un 25% debido a la vasoconstricción periférica e hipertermia.
La toxicosis por festuca (Festuca arundinacea infectada por el hongo endófito Epichloë coenophiala) representa una de las limitantes nutricionales y reproductivas más severas en rodeos de cría e invernada. Los alcaloides ergotamínicos, principalmente la ergovalina, ejercen una acción agonista sobre los receptores dopaminérgicos y serotoninérgicos, provocando una severa vasoconstricción periférica. Este fenómeno compromete la termorregulación del animal, conduciendo a estrés térmico crónico e hipertermia corporal (>39,5 °C) incluso bajo temperaturas ambiente moderadas [3].
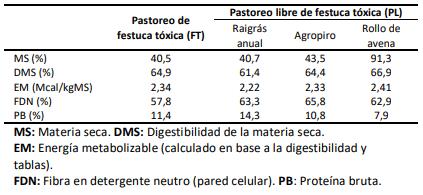
Las investigaciones en vaquillonas Angus expuestas a festucas tóxicas revelan una clara correlación entre la retención del pelo invernal (falta de pelecha primaveral) y la pérdida de funcionalidad ovárica. La hipertermia resultante disminuye el flujo sanguíneo hacia el útero y los ovarios, reduciendo la disponibilidad de oxígeno y glucosa en las células de la granulosa. Como consecuencia, se observa una reducción cuantitativa en el diámetro del folículo dominante, una menor manifestación del celo (anestro comportamental) y una contracción en el área del cuerpo lúteo resultante, con la consiguiente baja en los niveles circulantes de progesterona [3], [35].
El impacto negativo de la toxicosis por festuca puede ser modulado mediante el manejo nutricional y la recría previa de las terneras. Un desarrollo prepuberal adecuado, alcanzando el 60-65% del peso adulto antes del primer servicio, otorga una mayor resiliencia metabólica frente a alcaloides tóxicos [22], [24].
| Estrategia de Suplementación | Mecanismo Nutricional / Fisiológico | Impacto en la Eficiencia Reproductiva | Indicador Zootécnico Clave | Referencia |
|---|---|---|---|---|
| Grasa de Sobrepaso (PUFA O-3) | Supresión de COX-2 e inhibición de PGF2α uterina | Incremento de la supervivencia embrionaria temprana | Aumento del 15% en la tasa de preñez al 1° servicio | [10] |
| Urea Protegida de Liberación Lenta | Sincronización de N-NH3 con carbohidratos ruminales | Reducción del BUN (<18 mg/dL) y preservación del pH uterino | Disminución de la mortalidad embrionaria previa | [2] |
| Microminerales Quelados (Cu, Zn, Se) | Estabilización del sistema antioxidante (SOD, GSH-Px) | Optimización de la calidad del oocito y retención placentaria | Caída del 20% en casos de metritis posparto | [27] |
| Flushing Energético Pre-IATF | Elevación de pulsos de LH via pico de glucosa e insulina | Aumento del diámetro del folículo ovulatorio (>12 mm) | Tasa de ovulación incrementada en un 14% | [29] |
| Dilución de Festuca con Leguminosas | Reducción de la ingesta total de ergovalina (<200 ppb) | Restauración de la termorregulación y del flujo vascular ovárico | Mudanza del pelo invernal y mayor celo visible | [3] |
Preguntas Frecuentes (FAQ)
Q: ¿Cuál es la combinación alimenticia más eficiente para optimizar la ganancia de peso y la eficiencia reproductiva en ganado bovino? A: La combinación óptima integra forrajes de alta digestibilidad con un 1% a 2% de materia seca de grasa de sobrepaso y suplementación proteica al 30% PB, optimizando la condición corporal y la tasa de concepción.
Q: ¿Cuáles son las tres categorías nutricionales clave que determinan el reinicio ovárico en bovinos? A: Las tres categorías son la energía neta de lactancia/ganancia, la proteína degradable en rumen y los microminerales biodisponibles (cobre, zinc y selenio), cuya deficiencia alarga el anestro posparto.
Q: ¿Dónde se encuentran accesibles las guías y tablas estandarizadas de requerimientos nutricionales para rodeos bovinos? A: Se encuentran publicadas en la biblioteca técnica de Engormix y los manuales del NRC, integrando tablas cuantitativas sobre ingesta de materia seca, energía metabolizable y minerales por etapa productiva.
Q: ¿Cuáles son los cuatro procesos digestivo-metabólicos fundamentales de la nutrición en rumiantes que impactan la fertilidad? A: Son la fermentación ruminal de carbohidratos, la proteólisis y síntesis microbiana, la absorción intestinal de lípidos de sobrepaso y la gluconeogénesis hepática a partir de propionato.
Q: ¿Cómo se diferencia la urea feed grade de la urea agrícola en la suplementación bovina? A: La urea feed grade cuenta con certificación ISO GMP+/FAMI-QS, granulometría perlada homogénea para evitar segregación en la mezcla y ausencia de contaminantes tóxicos presentes en fertilizantes agrícolas.
Q: ¿Cuál es el impacto de la deficiencia de cobre en vacas gestantes sobre la progenie? A: La deficiencia provoca movilización hepática materna acelerada hacia el feto, derivando en hipocupremia neonatal, menor inmunidad pasiva y menor tasa de crecimiento pre y post-destete.
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
Antonio Garcia Estefan: Paredes de levadura protegen lechonas de fumonisina B1
-
Federico A. Gomez: Urea Feed Grade vs. Agrícola en Bovinos: Calidad y Regulación
-
Acuña Y. et al.: Festuca Tóxica y Pelo Invernal en Ovulación de Vaquillonas Angus
-
Sosa E. et al.: Causas no infecciosas de pérdidas reproductivas en bovinos
-
Maresca S., Lacentre E., Rodríguez A.M., Sterlich C. y López Valiente S.: Suplementación Proteica Materna: Impacto en Peso y Calidad de Res
-
Dr. Guillermo Berra, Lic. Ana Mate, INTA. Ing. Guillermina Osacar: Temperatura Óptima Terneros: 10-22°C
-
Pedro Meléndez, Julián Bartolomé: Cálculo e Interpretación de la Tasa de Preñez en Lechería
-
Ing. Mg.Sc. José Almeyda Matías: Suplemento Mineral Mejora Producción Lechera Brown Swiss en Altura
-
Ricardo Andrés Moreno Ruiz: Cobre sérico en vacas Brahman gestantes vs. vacías
-
Andrés Moscoso-Piedra, Bolívar Cabrera-Córdova, Manuel Maldonado-Cornejo, Rocío Herrera-Herrera: Grasa de sobrepaso mejora ciclicidad ovárica en lechería
-
Cristo Yang: Funciones del Ácido Biliar en Aves
-
Luis Enrique Carreño Salazar: Dosis de concentrado para Holstein en pastoreo
-
Leandro Royo: Grasa dietética y reproducción en vacas lecheras
-
Dario Colombatto: Restricción nutricional preparto y efectos en terneros
-
Dario Colombatto: Nutrición prenatal y calidad de carne bovina
-
Alejandro Relling: Grelina: Hormona clave en el balance energético y reproducción bovina
-
Marcos Saint Martin: Nutrición y condición corporal en la preñez bovina
-
Ana Meikle: Impacto nutricional en la reproducción de rumiantes
-
Dario Colombatto: Programación fetal y calidad de carne
-
Emanuel Frana: Nutrición Preparto: Inversión Estratégica para Lechería
-
Alejandro Relling: Rentabilidad y programación fetal en la cría bovina
-
Alvez A, Meikle A, Sequeira M, Guillen S, Viñoles C.: Nutrición Prepuberal y Fertilidad Bovina
-
Aníbal Fernández Mayer: Nutrición materna y desarrollo productivo del ternero
-
Vittone1, J.S., Munilla1, M.E., Lado1, M., Ramos2, M., Von Bilderling2, C.: Alimentación y pubertad en terneras de destete precoz
-
Ferrer, J.; Munilla, M.E.; Biolatto, A.; Teira, G.; Vittone, J.S.: Suplementación preparto y recría: impacto en novillitos
-
Juan Carlos Dominguez Tejerina: Balance energético negativo y su efecto en la reproducción bovina
-
Guillermo Mattioli: Cobre y Selenio: Claves para la reproducción bovina
-
Dr. Jim Rhoades: Nutrición y Genética: Claves para la Reproducción Bovina
-
Juan Pérsico: Nutrición y éxito reproductivo preservicio
-
Luis Balarezo Urresta: Impacto del metabolismo en la reproducción de vacas lecheras
-
Graciela Quintans: Estado Corporal y Recuperación Reproductiva Bovina
-
Dr. Rodrigo A. Arias Inostroza: Nutrición y Reproducción Bovina: Clave para la Eficiencia
-
Harold Ospina Patino: Balance energético y reproducción en vacas
-
J. Acosta Albiol, Yanlay Alcala Febles y E. Cordoves: Deficiencia energética: clave en problemas reproductivos bovinos
-
Butler, H.M., Alberio, R.H., Butler, A., Etcheverry, E.: Estrés Térmico y Nutrición en Fertilidad Bovina