Ácidos Grasos en Nutrición de Cerdos: Impacto en Salud Intestinal, Inmunidad y Calidad de Carne
- Desafío Técnico y Causa Primaria: La baja digestibilidad de las fuentes lipídicas, el estrés oxidativo por lipoperóxidos y la disrupción epitelial por inmadurez enzimática en lechones de recría y cerdas reproductoras comprometen la eficiencia energética y la barrera inmunitaria en la especie porcina [6], [7], [8].
- Impacto Cuantitativo: Pérdidas del 1% en la respuesta productiva global por consumo de grasas oxidadas, reducción drástica de hasta 14 días en la recuperación de la arquitectura villosa e incrementos drásticos en costos alimenticios por la volatilidad del aceite de soya que alcanzó picos de MXN $40/kg [6], [7], [8].
- Protocolo de Intervención Verificado: Inclusión de aditivos mejoradores de la digestibilidad como Enfit Plus (1 kg/t en sustitución de aceite de soya) permitiendo un ahorro de MXN $0.50/kg de carne producida y un beneficio neto adicional de MXN $60/cerdo [6], sumado a la suplementación focalizada de ácidos grasos de cadena media (C8-C12) e hidrolizados esterificados [8].
Digestión y digestibilidad de grasas y aceites en cerdos
¿Cómo se procesan los lípidos en el tracto digestivo porcino?
La digestión de grasas en cerdos requiere la emulsificación biliar y la hidrólisis mediante lipasa pancreática. La digestibilidad depende de la edad del animal, la longitud de la cadena de carbonos y la relación entre ácidos grasos insaturados y saturados (u/s) [6], [15].
La utilización metabólica de los lípidos en la nutrición porcina constituye un proceso fisiológico dinámico condicionado por la madurez funcional del aparato digestivo [6], [18]. En el lechón lactante y recién destetado, la secreción de sales biliares (ácido cólico y chenodesoxicólico) y la actividad lipolítica pancreática son cuantitativamente insuficientes [8]. Esto limita la capacidad de formación de micelas mixtas necesarias para la absorción de ácidos grasos de cadena larga saturados [15]. A medida que el cerdo avanza hacia las etapas de crecimiento y engorde, la capacidad de emulsificación y la síntesis de lipasa pancreática aumentan drásticamente, incrementando la digestibilidad de grasas más saturadas como el cebo animal o la manteca de cerdo desde un 65% en lechones hasta superar el 82-85% en cerdos adultos [6].
El parámetro físico-químico preponderante en la digestibilidad lipídica es la relación entre ácidos grasos insaturados y saturados (relación u/s) [15]. Los ácidos grasos insaturados (como el oleico C18:1 y el linoleico C18:2) poseen una configuración espacial que favorece su incorporación en las micelas solubles de la luz intestinal [18]. Por el contrario, los ácidos grasos saturados de cadena larga (como el palmítico C16:0 y el esteárico C18:0) tienen un elevado punto de fusión y requieren de la presencia de ácidos grasos insaturados y monoacilglicéridos para ser empaquetados e ingeridos por los enterocitos [15]. Se ha demostrado que una relación u/s mínima de 2.25 a 2.50 es imperativa en dietas para lechones juveniles, mientras que en cerdos en etapa de acabado una relación de 2.00 a 2.25 resulta suficiente para maximizar la energía metabolizable digestible [15].
Otro factor crítico en el control de calidad lipídica en granja es el estado de oxidación y la presencia de ácidos grasos libres (AGL) [6], [7]. La utilización de fuentes lipídicas económicas o mal almacenadas expone a los animales a hidroperóxidos, aldehídos y cetonas que desencadenan estrés oxidativo severo [7]. El valor de peróxidos (PV) es un indicador volátil que alcanza un pico temprano y decae progresivamente durante la degradación lipídica, por lo que resulta insuficiente como parámetro único; debe complementarse con la medición del índice de p-Anisidina y los AGL [7]. Fuentes con un contenido de AGL superior al 50% (frecuente en acidulados de fraccionamiento) reducen drásticamente el valor de energía neta debido a la menor formación de monoglicéridos en el lumen intestinal [6].
"La inclusión de grasas peroxidadas no solo reduce el consumo de alimento en un 1%, sino que disminuye la respuesta productiva global debido al estrés oxidativo sistémico e inflamatorio que provocan en el animal." — Julieta Sierra Díaz, Especialista en Nutrición Porcina [7]
| Fuente Lipídica | Relación u/s | Digestibilidad Lechones (%) | Digestibilidad Cerdos Adultos (%) | Contenido Energético (kcal EM/kg) | Cita |
|---|---|---|---|---|---|
| Aceite de Soya Crudo | ~5.60 | 89.5% | 94.2% | 8,400 kcal/kg | [6], [18] |
| Aceite de Maíz | ~4.80 | 87.0% | 92.5% | 8,350 kcal/kg | [6], [18] |
| Aceite de Palma | ~1.10 | 68.0% | 79.5% | 7,600 kcal/kg | [6], [18] |
| Cebo Animal (Tallow) | ~0.80 | 62.0% | 81.0% | 7,200 kcal/kg | [6], [18] |
| Acidulados de Soya (50% AGL) | ~3.50 | 74.0% | 84.0% | 7,550 kcal/kg | [6] |
Ácidos grasos de cadena corta y media en lechones destetados
¿Qué papel cumplen los ácidos grasos de cadena corta y media en el destete?
Los ácidos grasos de cadena corta (AGCC) y media (AGCM, C8-C12) aportan energía inmediata a los enterocitos sin requerir transportadores lipídicos, reduciendo la profundidad de cripta, modulando la microbiota y disminuyendo las diarreas posdestete [8], [26].
El destete precoz representa la transición fisiológica más estresante en la vida del cerdo [8]. La separación abrupta de la madre, la reorganización social y el cambio de un sustrato lácteo altamente digestible y líquido a un alimento sólido rico en carbohidratos complejos inducen una fase severa de ayuno voluntario [8]. Más del 50% de los lechones destetados no ingieren alimento significativo durante las primeras 24 horas, y hasta un 10% retrasa su consumo más de 48 horas [8]. Esta deprivación de nutrientes provoca una atrofia vellosa acelerada en el yeyuno e íleon, acortando la altura de las vellosidades y causando una hiperplasia compensatoria de las criptas [8], [20].
La alteración estructural de la mucosa intestinal altera el equilibrio microbiano, rompiendo la eubiosis caracterizada por el predominio de las filogenias Firmicutes y Bacteroidetes [8]. Al elevarse el pH intestinal por la falta de ácido clorhídrico estomacal y disminuir la población endógena de Lactobacillus y Bifidobacterium, los nichos ecológicos del epitelio son colonizados por enteropatógenos oportunistas como Escherichia coli enterotoxigénica (ETEC K88 o F18), Salmonella enterica y Clostridium perfringens [8], [28].
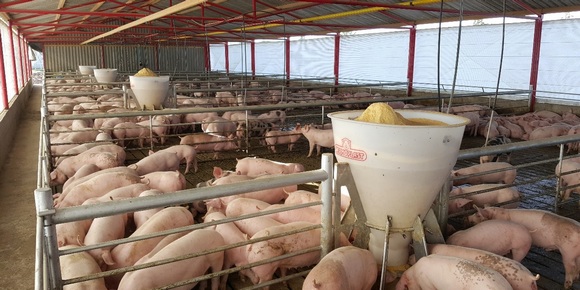
En este contexto, la suplementación estratégica con ácidos grasos de cadena corta (AGCC: acetato, propionato y butirato) y ácidos grasos de cadena media (AGCM: caprílico C8, cáprico C10 y láurico C12) ofrece una vía metabólica directa para la restauración tisular [8], [26]. A diferencia de los ácidos grasos de cadena larga que requieren reesterificación y transporte linfático vía quilomicrones, los AGCM son hidrofílicos, se absorben pasivamente a través del epitelio intestinal y se transportan directamente por la vena porta hacia el hígado [8]. Además, entran a las mitocondrias de las células epiteliales de forma independiente de la carnitina palmitoiltransferasa-1 (CPT-1), proporcionando ATP inmediato para la mitosis y acelerando la regeneración de las vellosidades [8], [26].
"Los ácidos grasos de cadena media de 8, 10 y 12 carbonos derivados de materias primas como el aceite de coco o nuez de palma penetran la barrera intestinal, regulando el microbioma y ofreciendo una respuesta antibacteriana equivalente a antibióticos promotores." — Dra. Johana Andrea Ciro, Investigadora en Salud Intestinal [8]
Efecto de la monolaurina y butirato de sodio en la salud intestinal
¿Cómo actúan la monolaurina y el butirato de sodio en la mucosa digestiva?
La monolaurina desintegra la envoltura lipídica de bacterias y virus, mientras el butirato de sodio estimula la síntesis de proteínas de unión estrecha (tight junctions), incrementando la altura de las vellosidades y atenuando la cascada proinflamatoria [1], [2], [26].

El mantenimiento de la integridad funcional de la barrera intestinal se fundamenta en el complejo macromolecular de las uniones estrechas (tight junctions), compuestas por ocludinas, claudinas y proteínas de anclaje citosólico Zonula Occludens (ZO-1, ZO-2) [8]. Cuando el pH intestinal se incrementa y la capa mucosa de mucina es degradada por infecciones o toxinas dietarias, se produce la desorganización celular mediada por la deplesión de calcio intraepitelial [8]. Este fenómeno eleva la permeabilidad paracelular, permitiendo la translocación de lipopolisacáridos (LPS) de bacterias Gram-negativas hacia la lámina propia [8]. Los LPS son reconocidos por los receptores Toll-like tipo 4 (TLR4), desencadenando la activación intracelular del factor nuclear NF-?B y la consiguiente sobreproducción de citoquinas proinflamatorias como TNF-a, IL-1ß e IL-6, las cuales inducen hipertermia, anorexia y diarreas secretoras masivas [8], [20].
La monolaurina (monoéster de glicerol y ácido láurico C12) actúa como un potente agente virucida y bactericida selectivo [8], [26]. Debido a su estructura anfipática, la monolaurina se solubiliza directamente en la membrana celular lipídica de bacterias Gram-positivas y virus envueltos, alterando la permeabilidad de la membrana de los patógenos, bloqueando los sistemas de transducción de señales de virulencia y provocando la lisis celular sin inducir resistencia genómica [8], [26].
Por su parte, el butirato de sodio (particularmente en sus formas protegidas o encapsuladas para liberación entérica tardía) actúa como el principal sustrato energético de los colonocitos e ileocitos [1], [26]. Al inhibir la enzima histona desacetilasa (HDAC), el butirato promueve la transcripción génica de mucina-2 (MUC2) y de las proteínas ZO-1 y ocludinas, sellando el espacio intercelular [8]. Además, la adición de combinaciones sinérgicas de butirato de sodio con ácidos orgánicos (ácido fórmico, benzoico, láctico) y compuestos fitogénicos (timol, carvacrol, eugenol) acidifica la luz gastrointestinal hasta niveles de pH 3.8 - 4.2 en el estómago, optimizando la transformación del pepsinógeno en pepsina y destruyendo la carga bacteriana flotante en el bolo alimenticio [1], [2].
| Aditivo Nutricional | Dosis Recomendada (kg/t) | Altura Vellosidad (µm) | Profundidad Cripta (µm) | Reducción E. coli (%) | Cita |
|---|---|---|---|---|---|
| Monolaurina (C12 Estereficado) | 1.0 - 2.0 kg/t | 485 µm | 190 µm | -82.4% | [8], [26] |
| Butirato de Sodio Recubierto | 1.5 - 3.0 kg/t | 512 µm | 175 µm | -68.0% | [1], [26] |
| Ácido Benzoico + Orgánicos | 3.0 - 5.0 kg/t | 460 µm | 210 µm | -74.5% | [2], [33] |
| Aceites Esenciales (Timol/Carvacrol) | 0.2 - 0.5 kg/t | 470 µm | 200 µm | -61.2% | [1], [8] |
| Enfit Plus (Mejorador Digestivo) | 1.0 kg/t | 498 µm | 182 µm | -58.0% | [6] |
Ácidos grasos insaturados de cadena larga en cerdas reproductoras
¿Qué impacto tienen los ácidos grasos n-3 y n-6 en cerdas y sus camadas?
La suplementación de ácidos grasos poliinsaturados de cadena larga (AGPI-CL) n-3 (EPA/DHA) en cerdas gestantes y lactantes optimiza el desarrollo placentario, eleva la calidad del calostro y modula la respuesta inmune de la camada posdestete [5], [10], [16].
La nutrición lípida de la cerda moderna en sistemas intensivos condiciona la viabilidad folicular, la implantación embrionaria y la inmunidad pasiva transferida a la descendencia [10], [17]. Tradicionalmente, las dietas basadas en maíz y harina de soya contienen una relación desequilibrada entre ácidos grasos de la familia omega-6 (n-6, representados por el ácido linoleico C18:2) y omega-3 (n-3, ácido alfa-linolénico C18:3), alcanzando proporciones superiores a 15:1 o 20:1 [5], [16]. El exceso de ácidos grasos n-6 promueve la vía metabólica de la cascada del ácido araquidónico vía enzimas ciclooxigenasas (COX) y lipooxigenasas (LOX), incrementando eicosanoides proinflamatorios de la serie 2 (prostaglandina PGE2, tromboxano TXA2) y leucotrienos de la serie 4 [5], [16]. En lechones al destete, esta condición exacerba la severidad de las respuestas febriles y el estrés oxidativo tisular [16], [30].
Por el contrario, la modulación de la relación n-6:n-3 mediante la adición de fuentes ricas en omega-3 (como el aceite de pescado rico en eicosapentaenoico EPA C20:5 y docosahexaenoico DHA C22:6, o la semilla de lino rica en C18:3) hacia una relación objetivo inferior a 5:1 o 3:1 altera significativamente la fisiología materna y filial [10], [17]. La incorporación de DHA y EPA en las membranas celulares fosfolipídicas desplaza al ácido araquidónico, resultando en la formación de eicosanoides menos inflamatorios de la serie 3 (PGE3) y resolvinas o protectinas de acción antiinflamatoria resolutiva [5], [20].
En el marco de investigaciones clínicas de respuesta inmune filial, E. Llauradó-Calero et al. demostraron que el impacto de la suplementación materna con n-3 AGPI-CL depende del peso del lechón al nacimiento [20]. En lechones de Bajo Peso al Nacer (BPN), la dieta con n-3 reduce la sobreexpresión de la citoquina proinflamatoria TNF-a y modula los receptores TLR2 y TLR4, atenuando el daño oxidativo entérico y preservando la absorción de inmunoglobulinas (IgG e IgA) provenientes del calostro [20]. En lechones de Peso Normal al Nacer (PNN), la adición de n-3 estimula una vigilancia inmunológica más coordinada frente a patógenos de campo [20].
"Equilibrar la relación n-6:n-3 por debajo de 5:1 en dietas de cerdas gestantes y lactantes no solo modula el estrés inflamatorio, sino que mejora la transferencia inmunitaria pasiva a través del colostro." — Javier Polo, Experto en Nutrición Porcina [5]
Modulación de la calidad de la carne y grasa mediante perfil lipídico
¿Cómo altera la grasa dietaria la firmeza de la canal y el perfil nutricional del magro?
La dieta altera directamente la firmeza de la grasa de la canal. Inclusiones elevadas de ácidos grasos poliinsaturados (como en los DDGS) incrementan el Índice de Yodo (>75 g/100g), ablandando el tocino y favoreciendo la enranciamiento por oxidación [13], [27].
El cerdo, como animal monogástrico, deposita los ácidos grasos de la dieta directamente en las reservas lipídicas de la canal (grasa subcutánea, intermuscular e intramuscular) con modificaciones metabólicas limitadas cuando se encuentra en un balance energético positivo [14], [18]. Únicamente cuando la dieta es extremadamente baja en lípidos (<1.5% de extracto etéreo), el tejido adiposo recurre a la lipogénesis de novo, sintetizando fundamentalmente ácidos grasos saturados y monoinsaturados (palmítico, esteárico y oleico) mediante las enzimas acetil-CoA carboxilasa (ACACA) y la ácido graso sintasa (FASN) [14], [24].
La inclusión extensiva de ingredientes alternativos ricos en grasas insaturadas, como los granos secos de destilería con solubles (DDGS de maíz) o aceites vegetales crudos, altera drásticamente las propiedades físico-químicas de la panceta y el tocino [27], [29]. Los DDGS contienen concentraciones elevadas de extracto etéreo con más del 55% de ácido linoleico (C18:2 n-6) [27]. Nivelar dietas con inclusiones de DDGS superiores al 20-30% eleva el Índice de Yodo (IY) de la grasa subcutánea por encima del límite industrial tolerable de 73-75 g/100g [27], [29]. Esto disminuye el punto de fusión de la grasa, generando el síndrome de "tocino blando" o flácido (soft pork), el cual dificulta el rebanado industrial, separa la panceta del tejido muscular subyacente y acelera la peroxidación durante el almacenamiento [13], [27].
Para mitigar este problema y responder a las exigencias del mercado sobre carne funcional rica en omega-3, la investigación se ha centrado en la adición de semillas de lino o aceite de pescado balanceados con antioxidantes como alfatocoferol (Vitamina E en dosis de 150-200 UI/kg) [11], [23]. Marini et al. demostraron que el uso de semillas de lino incrementa el contenido tisular de ácido alfa-linolénico (C18:3) y ácido linoleico conjugado (CLA) en el lomo, reduciendo la proporción global de ácidos grasos saturados aterogénicos sin mermar la aceptabilidad organoléptica del consumidor ni la textura en cocción [23].
Adicionalmente, técnicas de manejo de la canal como la inmunocastración (uso de análogos de GnRF) modifican el perfil lipídico [22], [34]. Los machos inmunocastrados presentan un repunte en el consumo voluntario y en la síntesis de novo tras la segunda dosis, depositando una grasa con mayor saturación y mayor consistencia, similar a la de los castrados quirúrgicamente pero con un rendimiento magro superior [22], [34].
En el plano de la eficiencia de formulación y los costos de producción, David Chan Díaz y Jesús Rodríguez evaluaron la sustitución total de fuentes lipídicas costosas mediante el uso de mejoradores de la digestibilidad (Enfit Plus) en dietas de iniciación y desarrollo (cerdos Topics de 16 a 80 kg PV durante 70 días) [6]. Los resultados confirmaron que la remoción completa del aceite de soya y la adición en top-feed de 1 kg/t de Enfit Plus mantuvieron idéntica ganancia diaria de peso (ADG) y conversión alimenticia (FCR) frente al control positivo con aceite [6]. Desde la perspectiva económica, la eliminación del aceite redujo el costo de la dieta en MXN $0.50/kg de carne producida, generando un margen de beneficio neto adicional de MXN $60.00 por cerdo finalizado [6].
| Fuente Lipídica Dietaria | Punto de Fusión (°C) | Índice de Yodo (g/100g) | Firmeza de Tocino | Tasa de Oxidación (TBARS) | Cita |
|---|---|---|---|---|---|
| Cebo Animal (Saturado) | 42.0 - 45.0 °C | 42 - 48 g/100g | Muy Rígido / Excelente | Muy Baja (<0.2 mg MDA/kg) | [13], [18] |
| Aceite de Lino (Rico n-3) | 18.0 - 22.0 °C | 170 - 190 g/100g | Muy Blando / Propenso | Elevada (>0.8 mg MDA/kg) | [11], [23] |
| DDGS Maíz (>20% Inclusión) | 28.0 - 31.0 °C | 78 - 85 g/100g | Flácido / Problemático | Moderada-Alta | [27], [29] |
| Aceite de Soya Crudo | 24.0 - 26.0 °C | 120 - 135 g/100g | Intermedio | Moderada | [6], [14] |
| Dieta Enfit Plus (Sin Aceite) | 38.0 - 41.0 °C | 58 - 62 g/100g | Firme / Óptimo | Muy Baja (<0.3 mg MDA/kg) | [6] |
Preguntas Frecuentes (FAQ)
Q: ¿Cuáles son los 3 tipos de ácidos grasos? A: Se clasifican según la presencia de dobles enlaces en su cadena hidrocarbonada: ácidos grasos saturados (AGS, sin dobles enlaces), monoinsaturados (AGMI, un doble enlace) y poliinsaturados (AGPI, dos o más dobles enlaces) [18]. Estructuralmente varían por la longitud de su cadena de carbonos [8].
Q: ¿Qué significa la regla 3-3-3 para los cerdos? A: Es la regla nemotécnica que representa la duración fisiológica promedio de la gestación en la cerda reproductora: 3 meses, 3 semanas y 3 días (aproximadamente 114 días), período clave para la programación nutricional lípida [10].
Q: ¿Qué alimentos son ácidos grasos? A: Los lípidos son aportados por ingredientes grasos concentrados como aceites vegetales (soya, maíz, palma, lino), grasas animales (cebo, manteca, aceite de pescado) y subproductos agroindustriales como los destilados de fermentación (DDGS) y harinas oleaginosas [18], [27].
Q: ¿Qué beneficio aporta la monolaurina y el butirato de sodio en lechones destetados? A: La monolaurina destruye la envoltura lipídica de bacterias patógenas, mientras el butirato de sodio provee energía celular para regenerar las vellosidades intestinales, restaurar las uniones estrechas y reducir la diarrea [1], [8].
Q: ¿Cómo afecta el uso de DDGS a la firmeza del tocino en cerdos de engorde? A: Niveles de inclusión de DDGS superiores al 20-30% elevan la concentración de ácido linoleico en la grasa subcutánea, incrementando el Índice de Yodo por encima de 75 g/100g y ablandando la panceta [27], [29].
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
Jorge Labala: Aditivos clave para la salud intestinal porcina
-
Oscar Morales: Acidificantes: Herramienta clave en la dieta porcina
-
Oscar Morales: Factores clave en la salud intestinal porcina
-
Oscar Morales: Factores tradicionales en la disrupción intestinal porcina
-
Javier Polo: Omega 3 vs. Omega 6: efectos en inflamación porcina
-
David Chan Diaz: Calidad del aceite y digestibilidad en cerdos: Factores clave
-
Julieta Sierra Díaz: Importancia de grasas y aceites en nutrición porcina
-
Dra. Johana Andrea Ciro: Ácidos Grasos de Cadena Media: Mejora Digestiva y Salud Intestinal
-
Julieta Sierra Díaz: Ácidos grasos y calidad de tocino porcino
-
Samara Sánchez Piñeyro: Ácidos grasos insaturados: Impacto en cerdas y camadas
-
Samara Sánchez Piñeyro: AGI y calidad de carne de cerdo: impacto en oxidación y retención de agua
-
Valeska Tamara Passarelo: Ácidos Graxos: Melhoram Desenvolvimento e Imunidade de Leitões
-
Samara Sánchez Piñeyro: AGI y calidad de carne de cerdo
-
Pere Duran Montgé y Enric Esteve-Garcia: Dieta y composición de ácidos grasos en cerdos
-
Rocky Gao, Lachance: Relación u/s y Digestibilidad de Grasas en Cerdos
-
Stuart Wilkinson: Fatty acids, immunity and mortality in pigs
-
Samara Sánchez Piñeyro: Impacto de Ácidos Grasos Insaturados en Cerdas y Camadas
-
Dr. Gerardo Mariscal Landín: Fuentes de lípidos para cerdos: vegetales y animales
-
Dave Albin: Grasas y Digestibilidad de Aminoácidos en Cerdos
-
E. Llauradó-Calero: n-3 fatty acids and their impact on intestinal immunity in piglets
-
Doussat Y.: Nutrición y salud intestinal en cerdos: una relación clave
-
Maria Font i Furnols, José Antonio García-Regueiro, Isabel Díaz, Maria Hortós, Dr. Antonio Velarde Calvo, Ma. Angels Oliver Pratsevall y Marina Gispert Martinell: Efecto de la Inmunocastración en Ácidos Grasos de la Grasa de Cerdo


Digestión de las grasas
Estreptococias en porcino

Nueva fuente de ácidos grasos de cadena media

Comportamiento productivo de cerdos en iniciación – finalización sustituyendo el 100% de aceite vegetal por lipofeed en la racion

Estudio sobre los factores que afectan la digestibilidad de las grasas en la dieta

Estimbióticos: Las ventajas de usar aditivos para hacer un mejor uso de la fibra dietética en los alimentos


Momentos críticos en lechones, Uso de ácidos orgánicos

Monolaurina en dietas: Antimicrobiano e Inmunomodulador


Inmunomoduladores para prevenir o tratar virus o bacterias
Salud intestinal y ácido butírico en monogástricos