Uso de Enzimas en Nutrición Porcina: Fitasas, Proteasas y Carbohidrasas para Optimizar Costos y Digestibilidad
El uso de enzimas en la nutrición de cerdos es la suplementación de biocatalizadores exógenos para hidrolizar complejos antinutricionales e ingredientes indigestibles. Se implementa mediante la inclusión de fitasas, proteasas y carbohidrasas en la ración, manteniendo umbrales de 500 a 2.000 FTU/kg de fitasa y 9.600 BXU/kg de xilanasa, lo que previene enteropatías fermentativas y optimiza la conversión alimenticia [6].
- Desafío Técnico y Causa Primaria: El uso de enzimas en la nutrición de cerdos resuelve la indigestibilidad de fitatos y polisacáridos no amiláceos en las dietas porcinas.
- Impacto Cuantitativo: Disminución del 15% de alimento no digerido excretado, reducción de hasta $20 USD/tonelada en costos de formulación y mejora de 1 a 10 puntos en la conversión alimenticia.
- Protocolo de Intervención Verificado: Ajuste de matriz nutricional en formulación de costo mínimo, dosificación de fitasa a 500-2.500 FTU/kg y adición de xilanasa (9.600 BXU/kg) y proteasa según perfil NIRS de insumos.
Tipos de Enzimas Exógenas en Porcicultura: Fitasas, Proteasas y Carbohidrasas
La suplementación con enzimas exógenas en la nutrición porcina incrementa la digestibilidad ileal de la materia seca y la energía metabolizable hasta en un 8% [6]. El tracto gastrointestinal del cerdo moderno enfrenta severas limitaciones fisiológicas para degradar componentes vegetales complejos, requiriendo catalizadores proteicos específicos que aceleren las reacciones de hidrólisis sin consumirse en el proceso [6], [16].
En el ámbito de la nutrición monogástrica, la clasificación zootécnica agrupa las enzimas comerciales en tres familias fundamentales: fitasas, proteasas y carbohidrasas [13]. Cada categoría actúa sobre sustratos macromoleculares definidos para liberar nutrientes atascados e inactivar factores antinutricionales (FAN) [16].
Clasificación Biocatalítica y las 7 Enzimas Principales
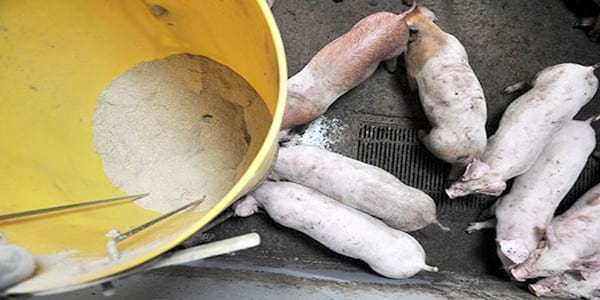
Las raciones porcinas basadas en maíz, soya y subproductos agroindustriales contienen enlaces covalentes e insolubles que las enzimas endógenas del cerdo no pueden romper [15]. Para superar estas barreras, la industria biotecnológica ha estandarizado el uso de siete enzimas exógenas primarias [13], [20]:
- Fitasas (6-fitasa / 3-fitasa): Hidrolizan el anillo de miositol hexakisfosfato (IP6), liberando ortofosfato inorgánico y minerales quelados [2].
- Endo-1,4-β-xilanasas: Degradan los arabinoxilanos (pentosanas) del pericarpio de cereales como trigo, maíz y cebada [14].
- Endo-1,3-1,4-β-glucanasas: Rompen las cadenas de β-glucanos presentes en la cebada, avena y subproductos del refinado de granos [14].
- Proteasas (Endopeptidasas serínicas y ácidas): Hidrolizan enlaces peptídicos internos en proteínas vegetales complejas (glicinina y β-conglacinina) e inactivan inhibidores de tripsina [16].
- α-Amilasas exógenas: Complementan la secreción pancreática inmadura en lechones, fragmentando el almidón en maltosa y dextrinas [11].
- β-Mananasas: Catalizan la degradación de los β-mananos (galactomananos) de la harina de soya y palmiste, suprimiendo la respuesta inmune innata inducida por patrones moleculares asociados a patógenos [17].
- α-Galactosidasas: Descomponen oligosacáridos de la familia de la rafinosa (rafinosa, estaquiosa y verbascosa), previniendo la distensión abdominal y la diarrea osmótica en cerdos jóvenes [6].
"Las enzimas exógenas descomponen moléculas complejas e indigestibles en fragmentos absorbibles por el epitelio intestinal. La flexibilidad de combinar monocomponentes permite al nutricionista adaptar la ración según la variabilidad del sustrato de la materia prima." — Ing. Joaquín Armando Paulino Paniagua, Especialista en Nutrición Porcina [6]
Estrategia de Monocomponentes frente a Complejos Multienzimáticos
El mercado ofrece preparaciones monocomponentes purificadas y complejos multienzimáticos (blends) [6]. Mientras que los complejos multienzimáticos proveen un espectro amplio adecuado para dietas multisustrato con alta inclusión de subproductos (DDGS, salvado de trigo, afrecho de arroz) [15], [20], las enzimas monocomponentes permiten ajustar de forma precisa la relación enzima-sustrato mediante herramientas de espectroscopía de infrarrojo cercano (NIRS) en tiempo real [6], [7].
Funciones de la Fitasa y Superdosificación de Fósforo y Calcio en Cerdos
La fitasa exógena hidroliza los enlaces éster-fosfato del ácido fítico, incrementando la disponibilidad ileal de fósforo del 20% a más del 65% en dietas vegetales [2]. El ácido fítico (IP6) actúa como un potente factor antinutricional que quela cationes bivalentes (Ca2+, Mg2+, Zn2+, Fe2+) y forma complejos insolubles con las proteínas dietéticas en el ambiente ácido del estómago [2], [8].
La aplicación convencional de fitasa (500 FTU/kg) libera aproximadamente entre 0,10% y 0,12% de fósforo disponible, lo que permite retirar hasta 6 kg de fosfato bicálcico por tonelada de alimento terminado [33]. Sin embargo, la estrategia de superdosificación ("superdosing"), consistente en añadir de 1.500 a 2.500 FTU/kg, destruye de forma casi total el IP6 y sus ésteres inferiores (IP5, IP4, IP3) [25].
| Etapa / Fase | Proceso / Reacción Bioquímica | Impacto Zootécnico y Nutricional | Referencia |
|---|---|---|---|
| Estómago (pH 2,0 - 3,5) | Hidrólisis rápida de IP6 a ésteres inferiores (IP3-IP1) por fitasa termostable. | Prevención de la precipitación de pepsina y eliminación del efecto antinutricional del fitato. | [2] |
| Duodeno (pH 5,5 - 6,5) | Descomposición de oligosacáridos solubles y solubilización de amido-almidón por carbohidrasas. | Reducción de la viscosidad de la digesta y mayor velocidad de difusión enzimática endógena. | [18] |
| Yeyuno (pH 6,5 - 7,2) | Escisión de enlaces peptídicos de la proteína vegetal por proteasas alcalinas exógenas. | Liberación de aminoácidos esenciales y reducción de nitrógeno indigestible hacia el íleon. | [16] |
| Íleon distal (pH 7,2 - 7,5) | Hidrólisis completa de arabinoxilanos insolubles y β-glucanos por xilanasas y glucanasas. | Generación de oligosacáridos de cadena corta (XOS/MOS) con efecto prebiótico. | [14] |
| Ciego / Colon | Fermentación de XOS/MOS por la microbiota comensal (Lactobacillus, Bifidobacterium). | Producción de Ácidos Grasos de Cadena Corta (AGCC: acetato, propionato, butirato) y caída del pH luminal. | [8] |
Mecanismo Bioquímico de la Superdosificación y Liberación de Inositol
Al degradar aceleradamente el molécula de IP6, la superdosificación de fitasa libera inositol libre en la luz intestinal [2]. El inositol absorbiéndose actúa como un mediador metabólico periférico que estimula la síntesis de proteína muscular e imita los efectos fisiológicos de la insulina, incrementando la ganancia diaria de peso (GDP) en lechones de destete de 350 g/día a más de 410 g/día [3].
Asimismo, la superdosificación minimiza las pérdidas endógenas de sodio y aminoácidos causadas por la irritación de la mucosa provocada por el ácido fítico libre [8]. Esto optimiza la estabilidad del gradiente electroquímico de los enterocitos, mejorando el transporte activo secundario de glucosa y aminoácidos [16].
Interacción con la Salud Ósea y el Metabolito 25-OH-D3
La liberación de fósforo y calcio a través de fitasas previene osteopatías metabólicas como la raquitis en lechones y la osteomalacia en cerdas reproductoras [6]. La sinergia entre fitasas a dosis elevadas y el metabolito activo de la vitamina D3 (25-hidroxicolecalciferol / 25-OH-D3) optimiza la resorción y mineralización en la matriz trabecular ósea [6]. Esto reduce las tasas de descarte prematuro por problemas locomotores en cerdas hiperprolíficas de un 13,2% a niveles inferiores al 5% [6].
Uso de Proteasas para Mejorar la Digestibilidad Proteica y Reducir Costos
La adición de proteasas exógenas en dietas para cerdos eleva la digestibilidad ileal aparente de los aminoácidos clave en un promedio del 3,5% al 6,0% [16]. En la fase de iniciación y engorde, las fuentes proteicas principales como la harina de soya contienen factores antinutricionales termolábiles y termoestables, entre los que destacan los inhibidores de tripsina (Kunitz y Bowman-Birk) y lectinas [6].
"El uso de proteasas e hidrolasas específicas neutraliza los inhibidores de tripsina y desnaturaliza las globulinas alergénicas de la soya, permitiendo formular dietas con menor nivel de proteína bruta sin comprometer la ganancia magra." — MVZ, MC Jorge Eduardo Pérez Casillas, Especialista en Nutrición Porcina [16]
Degradación de Factores Antinutricionales de la Soya y Proteínas Alternativas
Las proteasas ácidas y neutras complementan la pepsina gástrica y la tripsina pancreática [11]. Al degradar la glicinina y la β-conglicinina, estas enzimas reducen la inflamación inmunológica en la lámina propia de las vellosidades intestinales en lechones recién destetados [27]. Esta acción proteolítica posibilita la sustitución parcial de proteína láctea y plasma porcino por fuentes vegetales de menor costo, como la harina de soya extrusada o harina de colza, reduciendo el costo de la tonelada de alimento sin alterar la morfometría intestinal [19], [27].
Optimización del Perfil de Proteína Ideal y Reducción del Nitrógeno Excretado
El uso de proteasas permite formular raciones con una reducción de entre 1,5 y 2,0 puntos porcentuales en la proteína bruta (PB) total de la dieta, apoyándose en la suplementación de aminoácidos sintéticos bajo el concepto del Perfil de Proteína Ideal [6]. La relación fija de aminoácidos digestibles respecto a la lisina asegura el máximo aprovechamiento metabólico [6]:
- Lisina digestible: 100% (Base de referencia).
- Treonina digestible: 62% - 65%.
- Metionina + Cisteína digestible: 55% - 58%.
- Triptófano digestible: 18% - 20%.
- Valina digestible: 68% - 70%.
- Isoleucina digestible: 58% - 60%.
Al reducir el flujo de nitrógeno no digerido hacia el intestino grueso, las proteasas disminuyen la proliferación de bacterias proteolíticas de la especie Clostridium perfringens y Escherichia coli enterotoxigénica (ETEC) [5], [8]. Además, cada punto porcentual de PB reducido en la dieta disminuye las emisiones amoniacales (NH3) en los galpones y la excreción de nitrógeno en los purines entre un 8% y un 10%, mitigando el impacto ambiental y los costos de tratamiento de efluentes [23].
Efecto de las Enzimas Nutricionales en la Salud Intestinal y Degradación de Fibra
Las carbohidrasas exógenas fragmentan la matriz de polisacáridos no amiláceos (PNA) insolubles y solubles que componen las paredes celulares de los granos vegetales [14]. En el cerdo, la alta viscosidad del quimo provocada por los arabinoxilanos y β-glucanos solubles atrapa las enzimas pancreáticas endógenas, ralentiza la velocidad de difusión de sustratos e incrementa el recambio hídrico en la luz intestinal, predisponiendo al animal a episodios de diarrea [14], [18].
Eliminación del Efecto "Jaula" y Liberación de Oligosacáridos Prebióticos
Las endo-1,4-β-xilanasas perforan la pared celular vegetal, anulando el denominado "efecto jaula" que encapsula almidón, lípidos y aminoácidos potentes dentro del citoplasma de las células del endospermo [14], [15]. La destrucción de estas estructuras reticulares libera hasta 120 kcal/kg de energía neta previamente no disponible [17], [25].
Además, la escisión hidrolítica de los PNA de alta masa molecular genera arabinoxilo-oligosacáridos (AXOS) y manano-oligosacáridos (MOS) de cadena corta [8], [18]. Estos compuestos actúan como sustratos prebióticos selectivos en el ciego y colon, estimulando el crecimiento de bacterias sacarolíticas productoras de acetato, propionato y butirato [8]. El butirato luminal sirve como fuente energética primaria para los colonocitos, fortaleciendo las uniones estrechas ("tight junctions": ocludina, claudina-1 y ZO-1) y reforzando la función de barrera intestinal [1], [8].
Sinergia con Acidificantes, Aceites Esenciales y Probióticos
El mantenimiento de la eubiosis intestinal exige una estrategia integradora donde las enzimas actúan en sinergia con otros aditivos nutricionales [5], [22]. La combinación de carbohidrasas y proteasas con ácidos orgánicos (ácido fórmico, benzoico y propiónico) desciende el pH gástrico, optimizando la actividad catalítica de las pepsinas endógenas y limitando la supervivencia de enteropatógenos [5], [23].
"La suplementación con complejos enzima-aditivo retira el sustrato indigestible del cual dependen las bacterias patógenas en la porción distal del intestino, protegiendo la integridad de las vellosidades y reduciendo la dependencia de antibióticos promotores de crecimiento." — Dr. Carlos Julio Cuello Ocampo, Especialista en Nutrición Porcina [8]
Por otra parte, la inclusión conjunta de enzimas con aceites esenciales (timol, carvacrol, cinamaldehído) y cepas esporuladas de Bacillus subtilis o Bacillus licheniformis estabiliza la microbiota intestinal frente al estrés del destete, favoreciendo un rendimiento constante en el lote [5], [23].
Valoración de Matriz Nutricional y Ahorro Económico en la Fabricación de Alimento Porcino
La incorporación rentable de enzimas en fábricas de alimento balanceado requiere la asignación cuantitativa de valores matriciales en los softwares de formulación de costo mínimo (Linear and Non-Linear Formulation Programs) [6], [25]. Existen dos metodologías operativas principales para la integración de enzimas:
- Estrategia de Reformulación (Asignación de Matriz Nutricional): Consiste en acreditar a la enzima valores específicos de energía neta (50 - 120 kcal/kg), fósforo digestible (0,10% - 0,18%), calcio disponible (0,08% - 0,12%) y aminoácidos digestibles ileales (2% - 4%) [17], [25]. El software de formulación ajusta a la baja la inclusión de fuentes costosas como fosfato bicálcico, aceite vegetal, L-lisina HCl y harina de soya, reduciendo el costo directo de la tonelada entre 10 y 20 USD [25], [28].
- Estrategia "On-Top" (Adición Directa): Consiste en agregar el complejo enzimático sobre la dieta estándar sin modificar las especificaciones de la ración [6]. Aunque el costo inicial por tonelada se incrementa levemente por el valor del aditivo, el aumento en la digestibilidad total se traduce en una mejora directa del índice de conversión alimenticia (ICA) de 3 a 8 puntos, generando un Retorno sobre la Inversión (ROI) superior a 4:1 [6], [34].
| Punto Crítico de Control (PCC) | Variable de Proceso / Parámetro Operativo | Limite Crítico Aceptable | Frecuencia de Monitoreo | Acción Correctiva Inmediata | Cita Técnica |
|---|---|---|---|---|---|
| 1. Control de Sustrato en Materias Primas | Nivel de P-Fítico / PNA por NIRS en maíz y soya. | P-fítico > 0,22%; PNA solubles < 3,5%. | Por cada lote entrante. | Ajustar dosis de fitasa/xilanasa en el software. | [6] |
| 2. Dosificación y Premezclado | Precisión de la micro-dosificadora de enzimas. | Desviación Estándar < 1,5% de la meta. | Diario (Calibración semanal). | Parada de línea y recalibración de micro-balanza. | [31] |
| 3. Coeficiente de Variación de Mezclado | CV% de trazador micro-ingrediente en mezcladora. | CV < 5,0% a los 180 segundos. | Mensual por línea de producción. | Incrementar tiempo de mezclado seco o ajustar paletas. | [31] |
| 4. Termoestabilidad en Acondicionado | Temperatura de vapor y tiempo de residencia. | T° máxima = 85 °C; Tiempo = 30 seg. | En tiempo real (Sensores SCADA). | Reducir presión de vapor o aplicar enzimas líquidas post-pellet. | [25] |
| 5. Proceso de Peletizado y Extrusión | Temperatura del dado en la prensa de peletizado. | T° dado < 88 °C para enzimas recubiertas. | Continuo en proceso. | Ajustar abertura de dado o tasa de alimentación. | [25] |
| 6. Enfriamiento de Pellets | Humedad residual y temperatura de salida. | Humedad < 12,0%; T° salida < Amb + 5 °C. | Cada lote procesado. | Regular flujo de aire en enfriador contra-corriente. | [31] |
| 7. Aplicación Post-Peletizado (PPA) | Presión de aspersión de enzimas líquidas. | Cobertura de líquido = 98% a 102%. | Continuo (Sensores de flujo). | Limpieza de boquillas o purga de líneas líquidas. | [6] |
| 8. Almacenamiento de Alimento en Silos | Temperatura ambiental y humedad relativa interna. | T° silo < 30 °C; Sin condensación. | Monitoreo diario. | Activar aireación forzada o acelerar despacho. | [31] |
| 9. Evaluación de Actividad Enzimática | FTU/kg o BXU/kg en alimento terminado por ELISA. | > 90% de la actividad garantizada. | Un análisis por lote de fabricación. | Ajustar sobredosis de seguridad por peletización. | [25] |
| 10. Verificación de Respuesta Zootécnica | Cálculo de Índice de Conversión Alimenticia (ICA). | Variación ICA < 0,02 respecto al objetivo. | Semanal por lote de engorde. | Auditoría de consumo, desperdicio y salud intestinal. | [6] |
Impacto Cuantitativo de la Conversión Alimenticia en el Margen Económico
En sistemas de producción porcina intensiva, una variación de apenas 0,01 puntos (un gramo) en el índice de conversión alimenticia acumulado equivale a un consumo o ahorro de 1,0 kg de alimento balanceado por cada cerdo llevado a 100 kg de peso vivo [6]. En una granja con una población anual de 10.000 cerdos terminados, una mejora de 0,05 puntos en el ICA generada por la inclusión de un complejo de fitasa superdosificada y carbohidrasas se traduce en el ahorro directo de 50.000 kg de alimento [6].
| Nutriente / Mineral | Matriz Fitasa Conven. (500 FTU/kg) | Matriz Superdosis Fitasa (2.000 FTU/kg) | Matriz Xilanasa (9.600 BXU/kg) | Matriz Proteasa Exógena | Ahorro Económico Estimado ($/Ton) |
|---|---|---|---|---|---|
| Fósforo Disponible (%) | + 0,11% | + 0,18% | No aplica | No aplica | 4,50 -7,00 USD |
| Calcio Total (%) | + 0,10% | + 0,16% | No aplica | No aplica | 0,80 -1,20 USD |
| Energía Neta (kcal/kg) | + 25 kcal/kg | + 45 kcal/kg | + 75 kcal/kg | + 30 kcal/kg | 3,50 -6,50 USD |
| Lisina Digestible (%) | + 0,015% | + 0,030% | No aplica | + 0,040% | 2,00 -3,80 USD |
| Reducción Costo Final | 5,50 -8,00 USD | 9,00 -13,50 USD | 3,50 -5,50 USD | 2,50 -4,20 USD | Total: 10,50 -20,00 USD |
Preguntas Frecuentes (FAQ)
Q: ¿Qué son las enzimas nutricionales y cómo actúan en la nutrición porcina? A: Son proteínas biocatalizadoras que aceleran la hidrólisis de componentes indigestibles y factores antinutricionales en el quimo porcino [6]. Su inclusión incrementa la liberación de nutrientes y previene enteropatías fermentativas, optimizando la digestibilidad total de la ración [13].
Q: ¿Cuáles son las 3 clases principales de enzimas exógenas utilizadas en cerdos? A: Las tres clases principales son fitasas, carbohidrasas y proteasas [13]. Las fitasas liberan fósforo fitato, las carbohidrasas reducen la viscosidad intestinal degradando fibra, y las proteasas mejoran la digestibilidad de los aminoácidos vegetales [16].
Q: ¿Cuáles son las 3 funciones principales de las enzimas en la ración porcina? A: Sus tres funciones clave son hidrolizar factores antinutricionales (fitatos, PNA y lectinas), liberar energía y minerales atrapados en la matriz vegetal, y proteger la integridad de la mucosa intestinal reduciendo la carga bacteriana patógena [8], [16].
Q: ¿Cuáles son las 7 enzimas principales aplicadas en la formulación para porcinos? A: Las siete enzimas principales son 6-fitasa, endo-1,4-β-xilanasa, β-glucanasa, proteasa neutra/ácida, α-amilasa, β-mananasa y α-galactosidasa [13], [20]. Esta combinación degradante maximiza la eficiencia energética y la retención nitrogenada [17].
Q: ¿Cómo reduce la superdosificación de fitasa los costos de formulación y la contaminación? A: La superdosificación (1.500 - 2.500 FTU/kg) destruye completamente el IP6, liberando hasta un 0,18% de fósforo disponible y generando inositol libre [2]. Esto elimina el fosfato inorgánico de la dieta y reduce la excreción ambiental de fósforo en un 50% [23].
Q: ¿Cuál es el impacto de las proteasas exógenas en la salud intestinal del lechón destetado? A: Las proteasas degradan globulinas alergénicas e inhibidores de tripsina de la soya, previniendo la inflamación de las vellosidades [16], [27]. Al reducir la proteína no digerida en el íleon, se suprime la proliferación de E. coli y Clostridium perfringens [5].
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
David Fernandes Gavioli: Enzimas para Salud Intestinal en Cerdos
-
Sergio Alberto Drab: Fitasas: Liberación de fósforo fítico para absorción en cerdos
-
Sergio Alberto Drab: Fitasas: Mejoran digestión de fósforo y rentabilidad en lechones
-
Francisco Pallini: Natuzyme: Multienzimático para Aves y Cerdos
-
Jorge Labala: Aditivos clave para la salud intestinal porcina
-
Joaquin Armando Paulino Paniagua: Enzimas Exógenas en Cerdos: Mejorando la Digestibilidad y Rentabilidad
-
Carlos Julio Cuello Ocampo: Dosis variable de enzimas: optimización según sustrato
-
Carlos Julio Cuello Ocampo: Enzimas: clave para la salud intestinal y absorción de nutrientes
-
María Alejandra Pérez Alvarado: Fitasas y carbohidrasas son clave en dietas porcinas
-
Jorge Cervantes López: Fitasas y carbohidrasas: mejor digestión y menos contaminación
-
Cristina Rodriguez: Enzimas exógenas: clave en dietas de lechones destetados
-
María Alejandra Pérez Alvarado: Enzimas exógenas: clave para la eficiencia en cerdos
-
Ing. Joaquín A. Paulino: Tipos de enzimas en cerdos: Fitasas, Carbohidrasas, Proteasas
-
MV Marcelo Pooli: Enzimas exógenas: mejorando la digestibilidad en cerdos
-
Dr Gary Partridge: Necesidad de enzimas en dietas porcinas con subproductos
-
MVZ, MC Jorge Eduardo Pérez Casillas: Enzimas: Clave para la eficiencia y sostenibilidad en porcicultura
-
María Alejandra Pérez Alvarado: Enzimas mejoran eficiencia alimenticia en cerdos
-
Elijah Kiarie y Martin Nyachoti: Función de las enzimas en la digestión porcina
-
Adriana Berti Toscan: Enzimas mejoran digestión de PNAs en porcinos
-
Charly J Farfán-López: Composición de complejos enzimáticos en nutrición porcina
-
Fabián Cingolani: Enzimas: Digestión y Rendimiento en Cerdos Destetados
-
Ing. Joaquín A. Paulino: Enzimas exógenas: mejorando la digestión y absorción en cerdos
-
Enrique Castañeda: Nutrición para reducir impacto ambiental en porcinos
-
Gwendolyn Jones: Enzimas: optimizando la digestión y uniformidad post-destete
-
Alexandre Barbosa de Brito: Enzimas exógenas: clave para la rentabilidad en cerdos
-
Ing. Augusto Torero F.: Enzimas exógenas para lechones destetados precozmente
-
Rafael Durán Gimenez-Rico: Enzimas exógenas: clave en nutrición de lechones destetados
-
Alexandre Barbosa de Brito: Reducción del costo de alimento por animal con enzimas en cerdos
-
María Alejandra Pérez Alvarado: Enzimas exógenas mejoran digestión en lechones destetados
-
Danisco Animal Nutrition, Departamento Técnico.: Enzimas: Reducción de Costos y Mejora de Rendimiento Animal
-
Alberto Casarin: Optimización de dietas en cerdos de engorda: costos y ambiente
-
German Borbolla Sosa: Formulación y fases de dietas para engorde porcino
-
Joaquin A. Paulino: Fitasa: Ahorro de Fósforo y Reducción de Costos en Porcicultura
-
Joaquin A. Paulino: Ahorro de $4-6/ton en alimento avícola con enzimas
-
Dr. Ivan Cintora: Enzimas en nutrición porcina: mejora de la digestibilidad


Brasil

Vietnam


Perú