Ácidos Grasos en Nutrición Avícola: Funciones Lípidas, Salud Intestinal y Eficiencia Productiva
Los ácidos grasos en nutrición avícola son fuentes concentradas de energía y moduladores celulares clave en broilers y ponedoras. Se implementan balanceando lípidos saturados e insaturados, manteniendo una relación U/S superior a 3.0 y digestibilidad ileal > 88 %, lo que previene la esteatosis hepática y eleva la ganancia diaria de peso hasta un 7 %.
- Desafío Técnico: La baja digestibilidad lipídica en pollos y ponedoras, causada por la inmadurez secretora biliar y el desbalance entre ácidos grasos saturados e insaturados.
- Impacto Cuantitativo: Mermas de hasta un 8% en la energía metabolizable aparente (EMA), caída del 3.5% en la tasa de postura y un incremento de 4 a 6 puntos en el índice de conversión alimenticia (FCR) debido al uso de grasas saturadas o ricas en peróxidos con libre acidez superior al 3.0%.
- Protocolo de Intervención Verificado: Limitar la grasa añadida saturada al 2% en dietas de inicio, mantener la acidez libre (FFA) por debajo del 3%, y suplementar con un complejo bioactivo de emulsificantes (lisofosfolípidos a 250 g/t), ácidos biliares (100-200 g/t) y monolaurina con butirato de sodio (0.1-0.3%).
Funciones de la Grasa y Lípidos en la Dieta de las Aves
Los lípidos y ácidos grasos en la nutrición de aves proveen una concentración energética superior a las 8.800 kcal/kg, componen la biocapa lipídica de las membranas celulares, posibilitan la síntesis de hormonas esteroideas y actúan como vehículo indispensable para el transporte y absorción de las vitaminas liposolubles A, D3, E y K [4], [13], [25].
Aporte energético y transporte de vitaminas liposolubles
El aporte energético de las grasas rinde más de dos veces la energía de los carbohidratos o proteínas, siendo el nutriente más denso para formular dietas de alta concentración calórica [20], [25]. Adicionalmente, el proceso de micelación mixta desencadenado por la digestión lipídica permite la solubilización del retinol (Vitamina A), colecalciferol (Vitamina D3), alfa-tocferol (Vitamina E) y menadiona (Vitamina K) [4], [25]. Un déficit en la absorción de lípidos reduce inmediatamente la tasa de liposolubilidad, manifestando síndromes carenciales, fragilidad ósea y caída del sistema inmunitario en pollos de engorde y ponedoras comercializadas [13], [25].
"En aves jóvenes, durante los primeros días de vida, es fundamental no incluir elevadas proporciones de grasa añadida, situándolas alrededor del 2%, lo que representa un 3-4% de grasa total en el alimento balanceado, debido a la baja capacidad de solubilización micelar." — Dra. Ana C. Barroeta, Universidad Autónoma de Barcelona [6]
Ácidos grasos esenciales (Linoleico y Alfa-Linolénico) y perfil tisular
Las aves carecen de las enzimas desaturasas Δ-12 y Δ-15, impidiéndoles sintetizar de novo el ácido linoleico (C18:2 n-6) y el ácido alfa-linolénico (C18:3 n-3) [4], [13]. Estos ácidos grasos esenciales (AGE) son indispensables para mantener la permeabilidad de las barreras tisulares y regular la ruta del ácido araquidónico. La suplementación con aceites vegetales enriquecidos o aceites acidulados modifica directamente la composición lipídica de la carne de pollo y el huevo, incrementando la densidad de ácidos grasos poliinsaturados (PUFA) y disminuyendo el ratio n-6/n-3 para cumplir con los estándares de producción funcional [17], [32].

Criterios de calidad, estabilidad oxidativa y peróxidos
El valor nutricional de una fuente grasa está condicionado por su estado de conservación biológica. El proceso de peroxidación lipídica genera aldehídos, cetonas y radicales libres que destruyen la integridad epitelial intestinal, destruyendo las microvellosidades del yeyuno [1], [6].
Las mediciones de oxidación primaria (índice de peróxidos) y secundaria (ensayo de reactividad al ácido tiobarbitúrico - TBARS) deben realizarse conjuntamente con pruebas de estabilidad acelerada tipo Rancimat [6]. La inclusión de grasas ricas en ácidos grasos libres (FFA > 3.0%) o sometidas a rancidez compromete la flora digestiva, destruye la liposolubilidad vitamínica y actúa como predisponente primario para brotes epidémicos de enteritis necrótica [1], [33], [34].
| Parámetro Lipídico | Valor Óptimo (Deseable) | Límite Crítico / Tolerancia | Impacto en Fisiología Avícola |
|---|---|---|---|
| Índice de Peróxidos (IP) | < 5.0 mEq O2/kg | > 10.0 mEq O2/kg | Estrés oxidativo intestinal, destrucción de vitaminas A y E [6] |
| Ácidos Grasos Libres (FFA) | < 2.0 % | > 5.0 % | Caída de la solubilidad micelar y reducción del consumo [19], [33] |
| Relación UFA/SFA | > 2.5 | < 1.3 | Pérdida de digestibilidad en aves jóvenes por falta de emulsión [14], [24] |
| Humedad e Impurezas (MIU) | < 1.0 % | > 2.0 % | Proliferación fúngica, rancidez hidrolítica acelerada [33] |
Ácidos Grasos de Cadena Corta y Media en Avicultura
Los ácidos grasos de cadena corta (AGCC, C2-C5) y de cadena media (AGCM, C6-C12) actúan como potentes bactericidas, reducen el pH del lumen intestinal y se absorben por vía portal directa sin necesidad de ser emulsificados por micelas [5], [10], [12].
Mecanismos de absorción portal directa y disponibilidad energética rápida
A diferencia de los ácidos grasos de cadena larga (AGCL, C16-C22) que requieren ser reesterificados a triglicéridos dentro del enterocito e incorporados en portomicrones para ingresar al sistema linfático/circulatorio, los AGCM (C6 ácido caproico, C8 ácido caprílico, C10 ácido cáprico y C12 ácido láurico) poseen una alta polaridad y tamaño molecular reducido [5]. Esta característica estructural les permite ingresar a los enterocitos por difusión pasiva y viajar directamente al hígado mediante la vena porta, proveyendo ATP de disponibilidad inmediata en las mitocondrias sin depender de la carnitina palmitoiltransferasa para su transporte transmembrana [5], [10].
"Los ácidos grasos de cadena media poseen de 6 a 12 átomos de carbono. Su metabolismo y absorción es drásticamente más rápida que en los ácidos de cadena larga, constituyendo una fuente de energía altamente disponible con un comprobado efecto antibacteriano y modulador de la integridad intestinal." — Ing. Viviana San Martin, CM Perú [5]
Acción bactericida y virucida de los AGCM (C6-C12)
La capacidad antimicrobiana de los AGCM depende del pKa de las moléculas (generalmente cercano a 4.8) [12]. En el ambiente ligeramente ácido del buche, proventrículo y molleja, los AGCM permanecen en su forma no disociada (lipofílica), lo que les permite atravesar libremente la pared celular y la membrana citoplasmática de las bacterias [5], [12]. Una vez dentro del citoplasma bacteriano neutro, el ácido se disocia liberando protones (H+), lo que obliga a la bacteria a consumir sus reservas energéticas de ATP para expulsar el exceso de protones mediante la bomba ATPase [5]. Este fenómeno colapsa el potencial de membrana, acidifica el medio interno y desencadena la lisis bacteriana [5], [12].
| Clase de Ácido Graso | Ejemplos Principales | Mecanismo de Absorción | Efecto Biológico Principal |
|---|---|---|---|
| Cadena Corta (AGCC) | Acetato (C2), Propionato (C3), Butirato (C4) | Difusión pasiva y cotransporte de sodio | Nutrición de enterocitos, estimulación de uniones estrechas [12] |
| Cadena Media (AGCM) | Caprílico (C8), Cáprico (C10), Láurico (C12) | Transportador portal directo al hígado | Lisis de membranas Gram-positivas, energía mitocondrial rápida [5], [10] |
| Cadena Larga (AGCL) | Palmítico (C16), Esteárico (C18), Oleico (C18:1) | Micelación biliar obligatoria y portomicrones | Densidad calórica de la dieta, aporte de AGE [14], [24] |
Butirato de Sodio y Salud Intestinal en Pollos de Engorde
El butirato de sodio alimenta de forma directa a los colonocitos e ileocitos, estimula la síntesis de proteínas estructurales en el epitelio y previene el sobrecrecimiento de Clostridium perfringens mediante la reducción sostenida de la carga patógena en el tracto intestinal [12].
Protección epidérmica e integridad de las uniones estrechas (Tight Junctions)
El ácido butírico es el sustrato metabólico preferente para la β-oxidación del epitelio digestivo, generando hasta el 70% del consumo de energía celular requerida por las microvellosidades intestinales [12]. Su presencia en el lumen activa la trascripción del factor PPAR-γ y promueve la expresión genómica de las proteínas de unión estrecha (Occludin, Claudin-1 y Zonula Occludens-1 - ZO-1), fortaleciendo la barrera intestinal [12]. Esta impermeabilización evita la translocación bacteriana de endotoxinas hacia el torrente sanguíneo, protegiendo al ave de reacciones inflamatorias sistémicas desmedidas [12], [29].
Control de Enteritis Necrótica y modulación del pH digestivo
En la producción avícola moderna sin promotores de crecimiento antibióticos (AGP), la enteritis necrótica representa una amenaza constante. Las presentaciones protegidas de butirato de sodio (microencapsuladas con matrices lipídicas o sales amortiguadas) garantizan que el principio activo no se desintegre en la parte superior del estómago, liberándose gradualmente a lo largo del yeyuno e íleon [12]. La presencia controlada del monocarboxilato altera la transcripción génica de Clostridium perfringens, suprimiendo la síntesis de la toxina Alfa y la toxina NetB, disminuyendo las lesiones de la mucosa y estabilizando el índice de conversión alimenticia (FCR) [3], [12].
Efecto Inmunomodulador de la Monolaurina en Aves
La monolaurina desintegra las envolturas lipídicas de los virus patógenos y disuelve la membrana plasmática de bacterias Gram-positivas, actuando como un regulador directo del sistema inmune celular de las aves [5], [10].
Disruptor de membrana lipídica bacteriana y envolventes virales
La monolaurina es un monoéster formado por la unión del ácido láurico (C12) a una molécula de glicerol [5]. Su anfipatía le otorga una afinidad estructural por las capas lipídicas de patógenos con cubierta membranosa. En agentes virales envueltos (como el virus de la Enfermedad de Newcastle, la Bronquitis Infecciosa y la Influenza Aviar), la monolaurina se solubiliza dentro del recubrimiento lipídico, bloqueando los procesos de fijación celular, fusión y entrada viral [5]. En bacterias como Staphylococcus aureus, Streptococcus suis y Clostridium perfringens, la monolaurina altera la fluidez celular, inhibiendo la transducción de señales y provocando la autolisis del patógeno sin generar resistencia bacteriana [5], [10].
"Trabajando con derivados del ácido láurico enriquecidos en monobutirina y monolaurina, como Laurin Ultra, observamos mejoras sostenidas en la respuesta inmunológica de la mucosa digestiva y en los índices productivos generales." — Ing. Viviana San Martin, CM Perú [5]
Regulación de la respuesta inflamatoria y estimulación inmune sistémica
Además de su acción lítica directa, la monolaurina actúa sobre los receptores Toll-like (TLR-2 y TLR-4) presente en las células dendríticas e inmunocitos del epitelio digestivo [5]. Esto atenúa la cascada de transcripción del factor nuclear NF-κB, disminuyendo la expresión aberrante de interleucinas proinflamatorias como IL-1β, IL-6 y TNF-α [5]. La atenuación del proceso inflamatorio desvía la energía metabólica que se perdería en la respuesta inmune hacia el depósito tisular de proteína y la producción de masa de huevo, estimulando al mismo tiempo la síntesis e inmunosecreción local de la Inmunoglobulina A (IgA) [5], [10].
Emulsificantes y Digestibilidad de Grasas Bajo Estrés Térmico
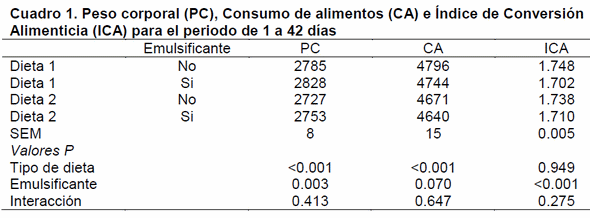
La inclusión de emulsificantes exógenos como lisofosfolípidos, lisolecitinas y ácidos biliares suple la insuficiente síntesis biliar exógena en etapas juveniles o en periodos de estrés calórico, incrementando la solubilidad lipídica [7], [16], [23], [29].
Rol fisiológico de los ácidos biliares y activación de la lipasa pancreática
Durante olas de calor extremo (temperaturas ambiente > 32 °C), las aves sufren hiperventilación, alcalosis respiratoria y reducción severa en la irrigación sanguínea visceral [29]. La secreción de ácidos biliares endógenos por el hígado se reduce sensiblemente, imposibilitando la emulsiificación de las grasas ingeridas [7], [8], [31]. La inclusión dietética de aditivos con ácidos biliares purificados (como Rennion) suplementa la concentración de taurocolato y glicocolato sódico en el lumen duodenal, reduciendo la tensión superficial de las gotas grasas de gran tamaño y permitiendo la rápida acoplación y activación de la enzima lipasa pancreática [7], [9], [31].
Uso de lisofosfolípidos y biosurfactantes en dietas con alta acidez (FFA)
Los lisofosfolípidos (LFL) son biosurfactantes obtenidos mediante la hidrólisis enzimática (fosfolipasa A2) de los fosfolípidos de lecitina cruda [16], [23]. Poseen una sola cadena de ácido graso y un grupo polar hidrofílico grande, otorgándoles un elevado valor de Balance Hidrofílico-Lipofílico (HLB) [16]. Los LFL aceleran la formación de micelas mixtas en presencia de elevados niveles de ácidos grasos libres (FFA) o saturados, incrementando la permeabilidad de la membrana plasmática del microvilli y optimizando el aprovechamiento calórico hasta en 100–120 kcal EMA/kg de alimento balanceado [16], [26], [30].
"La adición de ácidos biliares en la dieta avícola previene activamente la acumulación de triglicéridos en el tejido hepático (síndrome del hígado graso), incrementando la digestibilidad de la fracción grasa sobrante y sustituyendo funcionalmente a los emulsionantes sintéticos convencionales." — Dr. Julio Roberto Ponce Palao, Lachance [7]
| Aditivo Nutricional | Dosis Recomendada (g/t) | Target Fisiológico | Parámetro Productivo Optimizado |
|---|---|---|---|
| Ácidos Biliares (Rennion) | 100 – 200 g/t | Emulsificación en duodeno, protección del hepatocito | Reducción del FCR (2-3 ptos), prevención del hígado graso [7], [9] |
| Lisofosfolípidos (LFL) | 250 – 500 g/t | Formación de micelas mixtas de alta permeabilidad | Aumento de +110 kcal EMA/kg, ahorro de aceite en dieta [16], [30] |
| Monolaurina (Laurin Ultra) | 500 – 1500 g/t | Disruptor membranal virucida y bactericida | Descenso de mortandad por disbiosis, mayor título IgA [5] |
| Butirato de Sodio Encapsulado | 500 – 1000 g/t | Alimento de enterocitos y expresión de Tight Junctions | Recuperación de vellocidades, control de C. perfringens [12] |
Preguntas Frecuentes (FAQ)
Q: ¿Cuáles son los 3 tipos de ácidos grasos? A: Los 3 tipos principales de ácidos grasos en nutrición avícola son los saturados (sin dobles enlaces), monoinsaturados (un doble enlace) y poliinsaturados (múltiples dobles enlaces), clasificados también por la longitud de su cadena de carbonos [4], [5], [13].
Q: ¿Cuáles son los ácidos grasos de uso veterinario? A: En medicina y nutrición avícola se emplean ácidos grasos de cadena corta (butírico, propiónico), de cadena media (caprílico, cáprico, láurico, monolaurina) y ácidos grasos esenciales omega-3 y omega-6 (linoleico y alfa-linolénico) [5], [12], [13].
Q: ¿Qué son los ácidos grasos y para qué sirven? A: Son biomoléculas lipídicas constituidas por cadenas hidrocarbonadas con un grupo carboxilo terminal. Sirven como la reserva energética más concentrada, componentes estructurales celualres, precursores hormonales y moduladores de la microbiota e inmunidad intestinal de las aves [4], [25].
Q: ¿Qué alimentos son ácidos grasos? A: En las formulaciones avícolas, las fuentes principales incluyen aceites vegetales (soja, maíz, palma, coco), grasas de origen animal (sebo, manteca, aceite de ave), oleínas/aceites acidulados y subproductos del proceso de rendering [6], [17], [22], [35].
Q: ¿Cuál es la recomendación para la inclusión de grasas en la dieta de aves jóvenes? A: Se debe limitar la grasa añadida a un máximo del 2% en dietas starter, priorizando aceites insaturados de alta calidad, debido a que el desarrollo digestivo enzimático e hidrólisis biliar del pollito es inmaduro [6], [18], [28].
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
Francisco Pallini: Grasas de mala calidad y enteritis necrótica en aves
-
Benjamin Fuente Martinez: Sustitución de Aceite en Ponedoras con Gluconeogénicos
-
Dr Juha Apajalahti: TOFA and resin acids: impact on chickens
-
Marcela Liliana Drago: Rol de ácidos grasos en la nutrición avícola
-
Viviana San Martin: Ácidos Grasos de Cadena Media: Definición y Fuentes Avícolas
-
Ana C. Barroeta: Grasas en dietas de aves jóvenes: Recomendaciones
-
Julio Roberto Ponce Palao: Función Digestiva de Ácidos Biliares en Aves
-
Javier Gonzalez Foretic: Ácidos biliares y digestión de grasas en aves
-
Bruno Guimarães Amorim: Aditivos Biliares: Digestión de Grasa y Energía en Aves
-
Abdelhacib Kihal: AGCM: Optimización Intestinal desde el Inicio en Aves
-
Lachance: Ácidos biliares: clave en digestión de grasas avícolas
-
Dr. John L. Welsh: Ácidos Grasos para Controlar Enteritis Necrótica
-
Cristo Yang: Lípidos y ácidos grasos esenciales en aves
-
Hector Navarro: Factores de digestibilidad de grasa en pollos
-
Roy Zhang: Claves para mejorar utilización de grasas en aves
-
Szabolcs Toth, Mauro Di Benedetto y Matias Jansen: Lisofosfolípidos: Mejora de digestión de grasas en Pollos
-
Jennifer Pérez Martínez: AAS modifican perfil de ácidos grasos en huevo de ponedoras
-
Gonzalo Alfredo Alegría Lerzundi: Edad del Pollo y Digestión de Grasas
-
María Palomar 1, María Dolores Soler 1, Eugeni Roura 2, Roser Sala 3, Olga Piquer 1 and Carlos Garcés-Narro 1.: Fat Saturation & FFA Impact on Laying Hen Feed Preference
-
Dave Albin: Contenido de grasa en dietas avícolas
-
Alberto Viñado, Lorena Castillejos y Ana C. Barroeta: Digestibilidad de AG en pollos jóvenes y adultos
-
Dr. Jeffre D Firman: Ventajas de grasas recicladas en alimentación avícola
-
Adiveter: Lisolecitinas: Potenciador de digestión de grasas en aves
-
P.V. CHRYSTAL: Lipid Saturation & Hydrolysis Impact on Broiler AME
-
CINCAP - Centro de Información de la Carne de Pollo: Funciones Esenciales de las Grasas: Membranas, Hormonas y Vitaminas
-
Daniel Diaz García: Mejora de digestión de grasa en aves jóvenes
-
Dave Albin: Edad del Pollo y Utilización de Energía de Grasas
-
Edgardo Seijas: Lípidos Digestibles: Clave en nutrición de pollitos
-
Pablo Lencioni: Salud hepática e intestinal con fitogénicos ante el estrés calórico
-
Adriana Barri MVZ M.C. Ph.D.: LFL: Mejora de Absorción de Grasas y Conversión Alimenticia en Pollos
-
Andrés Zhao y Steven He: Ácidos Biliares y Digestión de Grasas
-
Dr. Marcelino Araníbar, Universidad Nacional del Altiplano. Puno-Perú y G.G. Mateos, Universidad Politécnica de Madrid-España: Grasas Insaturadas en Dieta Broiler
-
Carlos H Aladino Triviño: Estándar FFA en Grasa de Ave para Balanceados
-
Carlos Aladino: Tiempo de procesamiento y acidez en aceite de aves
-
Alvaro Castro Larenas: Ácidos Grasos: Animal vs. Vegetal en Aves y Cerdos



Vacunación de los pollos para luchar contra la hepatitis