Antioxidantes en Aves: Estrategias Nutricionales para Combatir el Estrés Oxidativo y Potenciar el Rendimiento Avícola
- Desafío Técnico y Causa Primaria: El estrés oxidativo y uso de antioxidantes en avicultura es el factor metabólico crítico desencadenado por radicales libres que atacan los lípidos.
- Impacto Cuantitativo: Provoca pérdidas de hasta un 15% en el índice de conversión alimenticia, caídas del 8% al 12% en la postura, elevación de la mortalidad embrionaria y un incremento marcado en los niveles plasmáticos de malondialdehído (MDA) .
- Protocolo de Intervención Verificado: Implementar la sustitución parcial de vitamina E sintética mediante polifenoles botánicos y selenio orgánico (como Selsaf®3000 o microminerales CAF), complementado con soluciones electrolítico-antioxidantes como PhytoShield en el agua de bebida durante picos de estrés térmico o desafíos sanitarios .
Fisiopatología del estrés oxidativo en aves de corral
El estrés oxidativo en aves de corral es un desequilibrio fisiológico provocado por la acumulación excesiva de especies reactivas de oxígeno (ROS) sobre las defensas antioxidantes endógenas, desencadenando peroxidación lipídica, apoptosis celular, inmunosupresión y severa pérdida de eficiencia metabólica [12], [20].
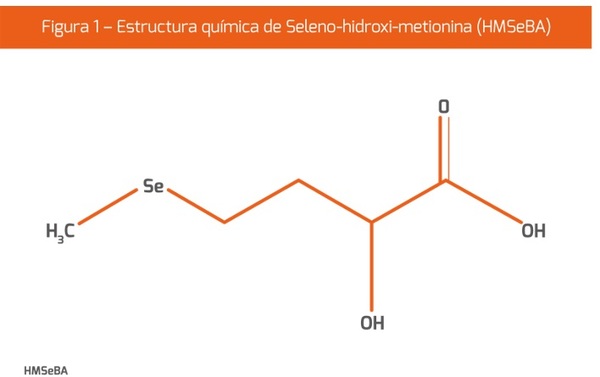
El metabolismo de las aves de alta productividad —caracterizado por una elevada tasa metabólica basal y un consumo continuo de dietas ricas en ácidos grasos poliinsaturados (PUFA)— genera de forma natural radicales libres como el anión superóxido (O2•-), el peróxido de hidrógeno (H2O2) y el radical hidroxilo (OH^•) [12], [32]. En condiciones homeostáticas, las enzimas endógenas superóxido dismutasa (SOD), catalasa (CAT) y glutatión peroxidasa (GSH-Px) neutralizan estos prooxidantes [10], [24]. Sin embargo, factores ambientales como el calor, hacinamiento, vacunaciones, toxinas y rápida tasa de crecimiento sobrepasan la capacidad enzimática celular [4], [18], [32].
La primera diana del ataque prooxidante son los fosfolípidos de membrana celular y mitocondrial. Este proceso de peroxidación lipídica genera aldehídos citotóxicos como el malondialdehído (MDA), alterando la permeabilidad celular, destruyendo la integridad estructural de los tejidos y desencadenando procesos inflamatorios sistémicos [1], [13].
Durante la etapa embrionaria, el estrés oxidativo adquiere una dimensión crítica. El incremento no controlado de especies reactivas de oxígeno daña la membrana corioalantoidea, compromete el desarrollo del sistema vascular primario y altera la citoarquitectura cardíaca del embrión [3].
"El estrés oxidativo no controlado durante la incubación disminuye drásticamente la vascularización embrionaria y desencadena hipertrofia cardíaca compensatory, incrementando la mortalidad embrionaria tardía y reduciendo la calidad del pollito al nacimiento." — Lucio Araujo, Especialista en Nutrición Aviar [3]
Asimismo, en los pollos de engorde de rápido crecimiento, las primeras semanas de vida y las fases cercanas al mercado representan ventanas de extrema vulnerabilidad [33]. El desequilibrio prooxidante a nivel microvascular pulmonar contribuye directamente al desarrollo del Síndrome Ascítico (hipertensión pulmonar aviar), obligando al ventrículo derecho a hipertrofiarse para compensar la hipoxia tisular [30], [33]. La suplementación temprana con antioxidantes mitiga este fallo metabólico al preservar la integridad del endotelio vascular pulmonar [33].
Antioxidantes naturales vs sintéticos en dietas avícolas
Los antioxidantes sintéticos (BHT, BHA, etoxiquina) protegen químicamente las grasas del pienso contra la rancidez, mientras que los antioxidantes naturales (polifenoles, flavonoides, carotenoides) aportan biodisponibilidad superior, protegen la célula viva contra el daño lipídico interno y previenen respuestas prooxidantes secundarias [11], [14].
Históricamente, la formulación avícola ha recurrido a antioxidantes de síntesis química como el butilhidroxitolueno (BHT), butilhidroxianisol (BHA) y etoxiquina para estabilizar las harinas de carne, aceites y piensos terminados [11]. Si bien estas moléculas son efectivas en la matriz inerte del alimento, su eficacia in vivo es limitada en comparación con los antioxidantes bioactivos exógenos de origen vegetal [11], [14]. Además, existen crecientes restricciones regulatorias internacionales sobre el uso de etoxiquina debido a la acumulación de residuos en la carne y el huevo.
En contraste, los antioxidantes naturales derivados de extractos botánicos —como la quercetina, la rutina, el resveratrol, el ácido carnosico (romero) y la silimarina— actúan mediante un doble mecanismo [10], [11]:
- Scavenging directo: Donación atómica de hidrógeno para estabilizar radicales libres peroxilo (ROO^•) en el espacio extracelular e intracelular [11], [20].
- Modulación de la expresión génica: Activación de la vía del factor nuclear Nrf2 (Nuclear factor erythroid 2-related factor 2), el cual estimula la transcripción endógena de enzimas citoprotectoras como SOD, CAT y la hemoxigenasa-1 [10], [20].
"Moléculas como la quercetina, la rutina y el resveratrol no solo detienen la reacción en cadena de la lipoperoxidación, sino que integran un ecosistema protector que ahorra el consumo metabólico de la ave frente a la agresión oxidativa diaria." — Cristian Lago, Investigador en Aditivos Naturales [11]
La combinación de mezclas tanínicas y flavonoides seleccionados, como Silvafeed® ATX, ha demostrado mejorar el Estado Antioxidante Total (TAS) del plasma en aves, evitando los riesgos de prooxidación que inducen las dosis masivas y no fisiológicas de ciertos antioxidantes sintéticos o minerales inorgánicos [14].
| Parámetro Evaluado | Antioxidantes Sintéticos (BHT / BHA / Etoxiquina) | Antioxidantes Naturales (Polifenoles / Flavonoides) | Minerales y Enzimas Endógenas (Se, Zn, Mn / SOD, GSH-Px) |
|---|---|---|---|
| Sitio de Acción Principal | Matriz del pienso / Luz intestinal [11] | Célula animal, citoplasma y tejido hepático [10], [11] | Mitocondria, citosol e intracelular [1], [9] |
| Activación de Vía Nrf2 | Nula / Inexistente [11] | Alta (Estimula transcripción endógena) [10] | Media (Dependiente de cofactores) [20], [23] |
| Riesgo de Efecto Prooxidante | Moderado a dosis elevadas [14] | Prácticamente nulo [14] | Alto si se usan sales inorgánicas [21] |
| Efecto en Calidad de Carne | Bajo (Protección indirecta) [11] | Muy Alto (Reduce exudación y TBARS) [2], [17] | Alto (Preserva membrana mitocondrial) [9], [13] |
| Restricciones Regulatorias | Crecientes (Límites MRL estrictos) [11] | Libre de retiro / Clean Label [11], [14] | Sujeto a máximos nutricionales [21] |
Sustitución de vitamina E por polifenoles en nutrición avícola
La sustitución parcial de vitamina E por polifenoles botánicos preserva la capacidad antioxidante celular al reciclar el radical a-tocoferoxil de vuelta a su forma activa, permitiendo reemplazar entre un 30% y 50% de la vitamina E sin comprometer el rendimiento avícola [10], [17].
La vitamina E (a-tocoferol) representa el antioxidante liposoluble primario en las membranas biológicas. Cuando la vitamina E neutraliza un radical libre lipídico (ROO^•), se convierte en el radical a-tocoferoxil, una molécula temporalmente inactiva que requiere de un donante de electrones para regenerarse [20]. Los polifenoles exógenos poseen un potencial redox óptimo para ceder electrones al radical a-tocoferoxil, reconfigurando la vitamina E a su estado funcional antioxidante en la interfase lipídica-acuosa [10], [17].
Este mecanismo de reciclaje permite diseñar dietas avícolas eficientes donde la concentración de vitamina E añadida se reduce substancialmente (de 100 mg/kg a 30-50 mg/kg) sin deteriorar los parámetros zootécnicos ni la estabilidad lipídica tisular [10], [17]. Adicionalmente, el aporte de fuentes orgánicas de selenio como la selenometionina (SeMet) o Selsaf®3000 refuerza la síntesis de la enzima glutatión peroxidasa, cerrando el ciclo de detoxificación de hidroperóxidos lipídicos [9].
Por el contrario, el uso inorgánico de selenito de sodio en premezclas minerales puede ejercer un inesperado efecto prooxidante a nivel intestinal, acelerando el desgaste de la vitamina E [21]. La sustitución por complejos de microminerales carbo-amino-fosfo-quelato (CAF) o selenio orgánico resulta indispensable para asegurar la estabilidad del sistema antioxidante [1], [9], [35].
| Estrategia de Formulación | Dosis de Vitamina E Sintética | Dosis de Sustituto Botánico / Orgánico | Nivel de MDA Plasmático (nmol/mL) | Actividad GSH-Px Relativa (%) | Retorno sobre la Inversión (ROI) |
|---|---|---|---|---|---|
| Control Vitamina E Alta | 100 mg/kg (100 UI) | 0 mg/kg | 2.10 ± 0.15 | 100% | 1.0x (Línea base) [17] |
| Control Vitamina E Baja | 20 mg/kg (20 UI) | 0 mg/kg | 4.85 ± 0.32 | 62% | 0.82x (Pérdida por oxidación) [16] |
| Sustitución Polifenoles (50%) | 50 mg/kg (50 UI) | 100 mg/kg Polifenoles seleccionados [17] | 1.95 ± 0.12 | 118% | 1.35x (Ahorro vitamínico) [10], [17] |
| Sustitución + Selenio Orgánico | 30 mg/kg (30 UI) | 100 mg/kg Polifenoles + 0.3 ppm Selsaf®3000 [9] | 1.60 ± 0.08 | 145% | 1.52x (Máxima protección) [1], [9] |
Salud hepática e intestinal y su relación con antioxidantes
La preservación de las uniones estrechas intestinales y la citoprotección hepática en aves dependen del equilibrio redox; la suplementación con polifenoles exógenos como la silimarina y aditivos fitogénicos frena la translocación bacteriana y la lipoperoxidación en el eje intestino-hígado [10], [22], [28].
El epitelio intestinal aviar está expuesto continuamente a agresores prooxidantes presentes en la dieta (aceites oxidados, micotoxinas, factores antinutricionales). La sobreproducción de ROS en los enterocitos degrada los complejos proteicos de las uniones estrechas (tight junctions: Claudina-1, Ocludina y ZO-1), desencadenando el síndrome de intestino permeable (leaky gut) [4], [7], [8]. Esta ruptura estructural permite la entrada de endotoxinas (LPS) y patógenos hacia la circulación portal [8].
Al arribar al hígado, el lipopolisacárido (LPS) activa las células de Kupffer y desata una cascada inflamatoria mediada por la vía NF-?B, generando sobrecarga metabólica en los hepatocitos [10], [22]. En afecciones virales graves como la Hepatitis a Cuerpo de Inclusión (IBH), producida por adenovirus aviares, el tejido hepático sufre una profunda depleción de sus defensas de glutatión, lo que eleva exponencialmente la mortalidad de la parvada [22].
"La incorporación de compuestos flavonoides y flavolignanos como la silimarina ahorra el gasto metabólico que la ave invierte en reparar el daño tisular hepático. Al desviar ese ahorro de energía hacia los procesos productivos, optimizamos la tasa de conversión y fortalecemos al ave frente a desafíos metabólicos e infecciosos." — Karla López Matsuoka, Especialista en Salud Hepática Aviar [10]
El empleo de aditivos fitogénicos en el alimento o soluciones solubles como PhytoShield en el agua de bebida provee una protección multinivel [2], [25], [28]:
- Protege la integridad de la membrana del enterocito [7], [8].
- Reduce la permeabilidad transepitelial al conservar las uniones estrechas [8].
- Inhibe la peroxidación lipídica hepática, disminuyendo los niveles circulantes de enzimas AST y ALT [10], [22].
Control del estrés calórico mediante estrategias antioxidantes
El estrés calórico induce alcalosis respiratoria e isquemia intestinal en aves, desencadenando una rápida explosión prooxidante que se contrarresta eficazmente combinando vitamina C, E, selenio orgánico y fitonutrientes solubles [4], [15], [18].
Cuando la temperatura ambiental supera la zona de termoneutralidad de las aves (>28-30 °C), el animal inicia el jadeo evolutivo para disipar calor por evaporación [4], [18]. La eliminación masiva de dióxido de carbono (CO2) desplaza el pH sanguíneo hacia la alcalosis respiratoria, reduciendo la biodisponibilidad de bicarbonato y alterando el equilibrio hidroelectrolítico [15], [25].
Simultáneamente, para disipar calor, el ave redistribuye el flujo sanguíneo desde los órganos viscerales hacia la periferia (piel y extremidades) [4], [18]. Esta vasoconstricción splancnica genera una severa isquemia intestinal transitoria [4], [8]. Al descender la temperatura durante la noche o reanudarse el flujo sanguíneo, la reperfusión genera una masiva ráfaga de especies reactivas de oxígeno (ROS) que destruye las microvellosidades intestinales [4], [8], [18].
La implementación de protocolos nutricionales y de hidratación durante las olas de calor debe actuar sinérgicamente sobre los componentes fisiológicos afectados [15], [27]:
- Restablecimiento del balance electrolítico: Incorporación de sales de sodio, potasio y citratos a través de PhytoShield en el agua de bebida para corregir la alcalosis sanguínea [2], [25].
- Neutralización de ROS en fase acuosa: Adición de vitamina C (ácido ascórbico a 200-500 mg/kg de alimento) para regenerar el ecosistema de antioxidantes citoplasmáticos [15], [20].
- Protección epitelial con fitonutrientes: Uso de aditivos fitogénicos ricos en aceites esenciales y taninos que reducen la emisión de amoniaco en la gallinaza hasta en un 50%, optimizando la calidad del aire del galpón y previniendo la ascitis [28], [30], [31].
| Parámetro Ambiental / Fisiológico | Parvada Estrés Calórico Sin Tratar (>33 °C) | Parvada con Protocolo Antioxidante + Electrolitos | Unidad de Medida / Impacto |
|---|---|---|---|
| Temperatura Corporal Interna | 43.8 - 44.2 | 41.5 - 41.9 | °C (Reducción de hipertermia) [15] |
| Resistencia Transepitelial (TER) | 120 ± 15 | 340 ± 28 | \Omega · cm2 (Integridad intestinal) [8] |
| Consumo de Alimento Relativo | -22% a -35% | -5% a -8% | % frente al estándar comercial [18], [27] |
| Nivel de MDA en Intestino | 8.45 | 2.15 | nmol/mg proteína tisular [4], [7] |
| Emisión de Amoniaco (NH3) | 45 - 60 | 18 - 25 | ppm en el ambiente del galpón [30], [31] |
Impacto de los antioxidantes en la calidad de huevo y pigmentación del pollo
Los carotenoides y antioxidantes botánicos protegen las xantofilas liposolubles y los ácidos grasos poliinsaturados contra la destrucción oxidativa, garantizando la pigmentación uniforme de la piel del pollo y prolongando la estabilidad de la yema en ponedoras comerciales [6], [29].
La pigmentación comercial de la piel del pollo de engorde y de la yema del huevo depende de la absorción intestinal y depósito tisular eficaz de carotenoides y xantofilas (luteína, zeaxantina, capsantina) [6], [29]. No obstante, los carotenoides son moléculas dobles altamente insaturadas, lo que las vuelve sumamente propensas a la autooxidación en la luz intestinal y en el torrente sanguíneo [6].
Cuando el ave padece estrés oxidativo sistémico, las xantofilas consumidas se degradan químicamente para actuar como antioxidantes secundarios de sacrificio, perdiéndose la capacidad de pigmentación cutánea y vitelina [6], [29]. La adición de carotenoides antioxidantes de alta estabilidad como Excecolor 11, combinada con niveles adecuados de vitamina E y microminerales traza (selenio y zinc), protege los pigmentos de la degradación oxidativa [6], [35].
En gallinas ponedoras sometidas a ciclos productivos prolongados (mayores a 80-100 semanas), la eficiencia de transferencia de nutrientes hacia la yema disminuye [35]. Además, situaciones de estrés sanitario o eventos de replume/peleche —como los generados tras la exposición a desafíos por Influenza Aviar— desencadenan procesos inflamatorios en el oviducto [34]. La suplementación antioxidante específica preserva la ultraestructura de las glándulas cascarógenas, mantiene la integridad de la membrana vitelina y evita el enranciamiento de los lípidos depositorios del huevo durante el almacenamiento [26], [34], [35].
Preguntas Frecuentes (FAQ)
Q: ¿Qué función cumplen los antioxidantes en la nutrición de las aves? A: Los antioxidantes neutralizan las especies reactivas de oxígeno (ROS), protegen la integridad de las membranas celulares, potencian la respuesta inmune y previenen pérdidas en el índice de conversión alimenticia y masa de huevo [12], [20].
Q: ¿Cómo afecta el estrés oxidativo la salud hepática e intestinal en avicultura? A: El estrés oxidativo destruye las uniones estrechas enterocíticas provocando intestino permeable, incrementa la peroxidación lipídica hepática y eleva la susceptibilidad a enfermedades como la Hepatitis a Cuerpo de Inclusión (IBH) [7], [10], [22].
Q: ¿Qué alternativas existen para reemplazar o complementar la vitamina E en aves? A: Los polifenoles botánicos y extractos tanínicos seleccionados (como Silvafeed® ATX) reciclan la vitamina E inactiva, permitiendo reducir su nivel sintético entre un 30% y 50% sin afectar el rendimiento productivo [10], [14], [17].
Q: ¿Cómo ayudan los antioxidantes a mitigar los efectos del estrés calórico en pollos y ponedoras? A: Neutralizan la ráfaga de radicales libres inducida por la isquemia intestinal y el jadeo, restituyen el equilibrio electrolítico en combinación con citratos y vitamina C, y estabilizan el consumo de alimento [4], [15], [25].
Q: ¿Por qué es preferible usar selenio orgánico frente al selenito de sodio en dietas avícolas? A: El selenito de sodio inorgánico puede presentar efectos prooxidantes en el intestino, mientras que el selenio orgánico (SeMet o Selsaf®3000) posee alta biodisponibilidad y estimula de forma segura la síntesis de glutatión peroxidasa [9], [21].
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
Alexandre da Silva Sechinato: Microminerales CAF reducen estrés oxidativo en pollos de engorda
-
Juan Mateo Lees: PhytoShield: Antioxidantes para Calidad de Carne en Aves
-
Lucio Araujo: Estrés oxidativo causa hipertrofia cardíaca y baja vascularización embrionaria
-
Francisco Pallini: Estrés Térmico y Estrés Oxidativo Intestinal en Aves
-
Guillermo Mattioli: Estrés oxidativo: Impacto de minerales y vitaminas en bovinos
-
Francisco Pallini: Carotenoides y salud inmunológica avícola
-
Juan Mateo Lees: Estrés oxidativo y salud intestinal en cerdos
-
John Furness: Phytonutrients: Antioxidants for Pig Heat Stress
-
Clementine Marien: Selsaf®3000: Organic Selenium for Oxidative Stress
-
Karla López Matsuoka: Antioxidantes exógenos y salud hepática en aves
-
Cristian Lago: Moléculas antioxidantes naturales clave para aves
-
Joseph W Ward: Oxidative Stress: Definition and Impact in Animals
-
Garros Fontinhas, Adisseo América del Sur, y Pierre-André Geraert, Adisseo Francia: Estrés Oxidativo y Calidad Productiva en Aves
-
Alejandro R. Castillo: Extractos de plantas vs. Estrés Oxidativo en Aves
-
Álvaro Pedroche: Dieta y Estrés Oxidativo Aviar
-
Dr. Ajay Chalikwar: Estrés Oxidativo: Calidad de Carne y Reproducción Aviar
-
Equipo de Nutrex. Contacto: Álvaro Pedroche Technical Sales Manager LATAM: Estrés calórico y oxidativo en aves
-
Dr. Jaime Andrés Ángel Isaza: Fitobióticos vs. Estrés Oxidativo Aviar
-
MV. Rodrigo Borges – Gerente Técnico Vetanco SA México: Defensas Antioxidantes Naturales en Aves
-
Garros Fontinhas y Wanderley Quinteiro Filho: Selenito de Sodio: Efecto Prooxidante en Aves
-
Departamento Técnico, Vetanco: Estrés Oxidativo y Daño Hepático en IBH Aviar
-
Alfredo Gómez: Zinc y Selenio para Estrés Oxidativo en Broilers
-
Dpto. Técnico Vetanco. Rodrigo Juliano Borges: Mecanismos Antioxidantes Naturales en Aves
-
Plusvet Animal Health: PhytoShield: Protección antioxidante aviar
-
Alejandro Córdova Izquierdo y A. Emmanuel Iglesias Reyes*: Antioxidantes: Prevención de Enfermedades en Aves
-
Fernando Pérez García: Antioxidantes na Dieta para Estresse Térmico em Aves
-
Pablo Lencioni: Salud hepática e intestinal con fitogénicos ante el estrés calórico
-
Andres Rocca (Seagro): Nutrición y Salud en Pigmentación Avícola
-
Gustavo Wassermann: Calidad del aire: clave en pollos de engorde
-
Oswaldo Seclèn Effio: Aditivos Fitogénicos: Reducción de Amoniaco en Aves
-
Álvaro Pedroche: Factores y Efectos del Estrés Oxidativo en Aves
-
Magdalena Escorcia Martínez: Antioxidantes en Pollos de Engorda
-
Magdalena Escorcia Martínez: Estrés oxidante en oviductos de ponedoras con IA y rol de antioxidantes
-
Jose Mauro Arrieta Acevedo: Minerales traza y selenio: antioxidantes clave en ponedoras