Antioxidantes en Cerdos: Estrategias Nutricionales para Controlar el Estrés Oxidativo
La suplementación con antioxidantes en nutrición porcina es la incorporación estratégica de micronutrientes y fitoquímicos para neutralizar las especies reactivas de oxígeno en cerdos. Se implementa mediante la combinación de selenio orgánico, alfa-tocoferol y polifenoles, manteniendo umbrales de 0,30 ppm de selenio y 100 UI/kg de vitamina E, lo que previene la disfunción entérica y optimiza la ganancia media diaria [13].
- Desafío Técnico y Causa Primaria: El estrés oxidativo en cerdos es causado por la acumulación desmedida de radicales libres durante el destete y el estrés térmico en la piara.
- Impacto Cuantitativo: Reducción del 12% al 18% en la ganancia de peso diaria, incremento del índice de conversión alimenticia de 0,15 a 0,25 unidades y aumento del goteo en carne hasta un 4,5%.
- Protocolo de Intervención Verificado: Adición dietética de 0,30 ppm de selenio orgánico, 150 UI/kg de alfa-tocoferol, 200 ppm de flavonoides cítricos y reemplazo de etoxiquina por tocoferoles naturales.
Fisiopatología del Estrés Oxidativo en Lechones Destetados
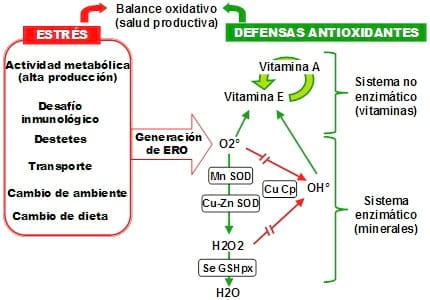
El estrés oxidativo rompe el equilibrio redox intestinal en lechones destetados, incrementando las concentraciones de malondialdehído en un 40% [11]. Durante la transición del destete, la separación de la madre, el cambio de dieta líquida a sólida y el reagrupamiento gatillan una sobreproducción de especies reactivas de oxígeno (ROS) en las mitocondrias de los enterocitos [17]. Cuando la tasa de generación de anión superóxido (O2bullet-) y peróxido de hidrógeno (H2O2) supera la capacidad de amortiguación de las enzimas endógenas, se produce un colapso en la homeostasis celular que compromete la fisiología entérica del animal [1].
Mecanismos Moleculares de Peroxidación Lipídica e Inflamación Intestinal
La peroxidación de lípidos de membrana degrada los fosfolípidos insaturados en los enterocitos, reduciendo la altura de las vellosidades intestinales hasta en un 35% [12]. Este proceso destructivo se inicia cuando el radical hidroxilo (OHbullet) extrae un átomo de hidrógeno de los ácidos grasos poliinsaturados (PUFA) presentes en la bicapa lipídica, generando radicales lipídicos peroxilo que perpetúan una reacción en cadena. La acumulación de subproductos tóxicos, especialmente el malondialdehído (MDA), altera la permeabilidad epitelial y desencadena una respuesta inflamatoria mediada por la vía del factor nuclear kappa B (NF-κB) [13].
La activación de NF-κB induce la transcripción de citoquinas proinflamatorias como el factor de necrosis tumoral alfa (TNF-α), la interleucina-1 beta (IL-1beta) y la interleucina-6 (IL-6) [13]. Estas citoquinas degradan las proteínas de unión estrecha (tight junctions) como la claudina-1, la ocludina y la zonula occludens-1 (ZO-1), incrementando la permeabilidad paracelular y permitiendo la traslocación de endotoxinas bacterianas y lipopolisacáridos (LPS) al torrente sanguíneo [35].
Impacto del Destete y Transición Dietética en las Especies Reactivas de Oxígeno
El uso de ingredientes oxidados en la dieta de lechones posdestete incrementa los niveles de hidroperóxidos séricos a más de 120 mumol/L [21]. La ingesta de aceites rancios o grasas con alto índice de peróxidos aporta directamente radicales libres al lumen intestinal, agotando las reservas de alfa-tocoferol y glutatión reducido (GSH) en la mucosa digestiva [12]. Esto provoca una atrofia severa de las vellosidades de la mucosa del yeyuno y profundiza la profundidad de las criptas, reduciendo drásticamente la capacidad de absorción de nutrientes [1].
| Punto Crítico de Control (PCC) | Etapa Productiva | Desafío Zootécnico / Etiología | Parámetro Cuantitativo Crítico | Protocolo de Intervención Recomendado | Referencia |
|---|---|---|---|---|---|
| PCC 1: Recepción de Materias Primas | Balanceados | Autooxidación de lípidos e ingredientes grasos | Índice de peróxidos menor a 5 meq O2/kg | Adición de 200 ppm de tocoferoles y extracto de romero | [30] |
| PCC 2: Transición de Destete | Lechones (21-28 días) | Estrés metabólico y separación materna | Consumo inicial mayor a 150 g/día/lechón | Suplementación con 150 UI/kg de Vitamina E + 0,30 ppm Se orgánico | [13] |
| PCC 3: Control de Micotoxinas | Crecimiento | Estrés oxidativo hepático por aflatoxinas/ZEA | Nivel de MDA sérico menor a 2,5 nmol/mL | Uso de inactivadores enzimáticos y moduladores antioxidantes | [31] |
| PCC 4: Mezclado de Premezclas | Planta de Alimento | Prooxidación inducida por minerales inorgánicos | Solubilidad del cobre/hierro en premezcla | Sustitución total de sulfatos por minerales orgánicos quelatados | [6] |
| PCC 5: Desafío Térmico en Verano | Engorda y Acabado | Estrés por calor ambiental y jadeo | Temperatura rectal menor a 39,2 °C | Inclusión de 200 mg/kg Vitamina C + 200 ppm flavonoides cítricos | [18] |
| PCC 6: Salud Epitelial Intestinal | Destete Tardío | Disfunción de tight junctions por ROS | Excreción de lactulosa/manitol controlada | Adición de 500 ppm de aceites esenciales y polifenoles | [9] |
| PCC 7: Gestación Avanzada | Cerdas reproductoras | Estrés oxidativo placentario e IUGR | Peso al nacer mayor a 1,35 kg/lechón | Administración de análogos bioactivos Herbal C y Herbal E | [22] |
| PCC 8: Preservación Seminal | Verracos | Peroxidación de membrana espermática | Motilidad espermática superior al 85% | Adición de 1,5 g/L de ácido ascórbico en diluyente | [24] |
| PCC 9: Transporte a Rastro | Cerdos de Abasto | Isquemia-reperfusión muscular pre-faena | Pérdida de goteo en canal menor al 2,0% | Suplementación con 200 UI/kg de alfa-tocoferol 14 días previas | [26] |
| PCC 10: Almacenamiento de Carne | Exprendio / Post-faena | Oxidación de mioglobina y color pálido | Valor TBA menor a 0,5 mg MDA/kg carne | Inclusión de levadura selenizada en fase de acabado | [34] |
Antioxidantes Naturales en Cerdos: Polifenoles y Flavonoides
Los polifenoles naturales neutralizan radicales libres mediante la donación de electrones, aumentando la capacidad antioxidante total (TAC) del plasma en un 25% [16]. Los fitoquímicos derivados de plantas, tales como flavonoides, catequinas, proantocianidinas y taninos condensados, ofrecen una estructura molecular rica en grupos hidroxilo fenólicos que atrapan directamente especies reactivas de oxígeno y quelan cationes metálicos prooxidantes como Fe2+ y Cu2+ [16].
Sinergia Bioquímica de Flavonoides Cítricos y Taninos Vegetales
La combinación de flavonoides cítricos y taninos hidrolizables reduce la concentración sérica de hidroperóxidos lipídicos en un 30% [3]. Cuando se incorporan en la matriz del alimento balanceado, estos compuestos naturales no solo actúan intracelularmente, sino que previenen la degradación oxidativa de las vitaminas liposolubles y ácidos grasos esenciales dentro del tracto gastrointestinal [16]. La acción conjunta de la vitamina C soluble, la vitamina E liposoluble y los flavonoides genera un ciclo de regeneración redox donde la vitamina C reconvierte el radical alfa-tocoferoxilo nuevamente en alfa-tocoferol activo, amplificando la longevidad del sistema antioxidante celular [16].
"A combination of different natural antioxidant options that can enhance the body's defence mechanisms and improve production. A combination of vitamin C with vitamin E can provide a platform for this effect... It is also now well understood that the polyphenol compounds, including the flavonoids and flavones, have powerful antioxidant properties." — Dr Mike Varley, Expert in Swine Nutrition [16]
Fitonutrientes para la Preservación de la Barrera Epitelial Intestinal
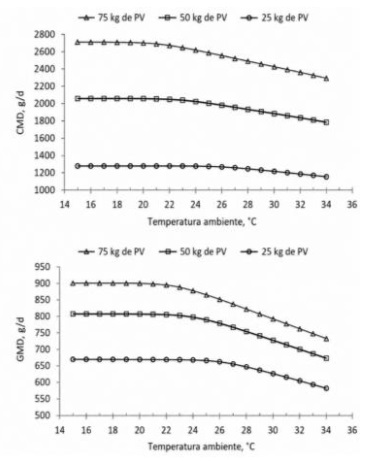
La adición de fitonutrientes en dietas expuestas a estrés térmico incrementa la resistencia eléctrica transepitelial (TEER) en un 22% [3]. El calor ambiental extremo altera la perfusión sanguínea intestinal debido a la vasoconstricción visceral reactiva, generando hipoxia hística y un pico desmedido de ROS en las vellosidades [14]. Los fitogénicos ricos en carvacrol, timol y flavonoides modulan la expresión génica de las proteínas de unión estrecha, impidiendo el síndrome de 'intestino permeable' (leaky gut) y reduciendo la translocación sistémica de patógenos entéricos [3], [9].
Selenio Orgánico y Vitamina E en Dietas Porcinas
El selenio orgánico en forma de selenometionina incrementa la actividad tisular de la enzima glutatión peroxidasa en un 45% en comparación con el selenito de sodio [2]. El selenio es un componente estructural indispensable del aminoácido selenocisteína, el cual forma parte del sitio activo de al menos 25 selenoproteínas esenciales, incluyendo las isoformas de la glutatión peroxidasa (GPx-1 a GPx-6) y la tioredoxina reductasa [15].
Nutrigenómica y Expresión de Glutatión Peroxidasa y Superóxido Dismutasa
La suplementación con selenio orgánico activa la transcripción metabólica de las enzimas superóxido dismutasa (SOD) y catalasa (CAT) [4]. A través de la ciencia nutrigenómica, se ha demostrado que la sustitución de fuentes inorgánicas prooxidantes por levaduras selenizadas (como Sel-Plex® o Selsaf®) no solo eleva la expresión de los genes directamente codificantes para GPx, sino que transactiva rutas metabólicas asociadas a la superóxido dismutasa dependiente de zinc/cobre (Cu/Zn-SOD) y de manganeso (Mn-SOD) [4].
"Lo que descubrimos fue que el selenio orgánico influye genes que codifican para esas otras enzimas... que típicamente las ubicamos como enzimas no dependientes del selenio, pero que al final no están desligadas del selenio. Y eso solo lo pudimos saber cuando aplicamos la nutrigenómica al estudio de este tipo de minerales." — Jose Mauro Arrieta, Alltech México [4]
Dosificación Estratégica de Alfa-Tocoferol y Selenio de Levadura
La combinación de 0,30 ppm de selenio orgánico y 100 UI/kg de vitamina E eleva la concentración celular de tocoferol muscular a más de 5,5 mug/g [26]. La vitamina E actúa deteniendo la propagación de la peroxidación lipídica en las membranas lipofílicas, mientras que la glutatión peroxidasa remueve el peróxido de hidrógeno en la fase acuosa citosólica [5]. La sustitución total de minerales inorgánicos por quelatos orgánicos elimina el efecto prooxidante en el premix y en el lumen intestinal [6].
| Parámetro Evaluado | Fuente Inorgánica (Selenito + Sulfatos) | Fuente Orgánica (Selenio Levadura + Tocoferol) | Impacto Relativo / Diferencial | Referencia |
|---|---|---|---|---|
| Actividad GPx Sérica | 180 ± 12 U/mL | 275 ± 15 U/mL | Incremento de 52,7% en capacidad detoxificante | [2] |
| Concentración de MDA Muscular | 0,85 mg/kg | 0,38 mg/kg | Reducción de 55,2% en peroxidación lipídica | [26] |
| Pérdida por Goteo (Drip Loss 48h) | 4,2% | 1,8% | Reducción del goteo de 4,2% a 1,8% | [26] |
| Expresión Génica Cu/Zn-SOD | Niveles basal (1.0x) | Sobreexpresión (2.4x) | Incremento de 140% en activación de transcripción | [4] |
| Retención de Selenio en Tejido | 0,15 mg/kg | 0,48 mg/kg | Aumento de 220% en reserva celular lipofílica | [15] |
Antioxidantes Sin Etoxiquina para el Alimento Balanceado
Los tocoferoles mixtos combinados con extracto de romero mantienen el período de inducción de grasas porcinas por encima de las 20 horas en pruebas OSI [30]. Ante las regulaciones globales que prohíben o restringen fuertemente la etoxiquina debido a preocupaciones sobre sus residuos metabólicos (como la etoxiquina quinona) y potenciales efectos tóxicos en la cadena alimentaria, la industria de alimentos balanceados ha migrado hacia complejos antioxidantes de origen natural y sintéticos de alta seguridad [30].
Sustitución de BHA, BHT y Etoxiquina por Tocoferoles y Extracto de Romero
El uso de sistemas antioxidantes naturales integrados evita la formación de peróxidos primarios en harinas de origen animal hasta por 12 meses [30]. La mezcla sinérgica de alfa, beta, gamma y delta-tocoferoles extraídos de aceites vegetales, en combinación con ácido carnosico y carnosol provenientes del Rosmarinus officinalis, ofrece una protección termoestable que soporta los procesos térmicos de acondicionado, extrusión y peletizado del alimento balanceado [30].
Estabilización Oxidativa de Grasas, Harinas de Carne y Rendering Porcino
La adición de 250 a 500 ppm de tocoferoles en grasas de rendering previene el ranceamiento oxidativo y mantiene el valor de acidez libre por debajo del 2,0% [30]. Las grasas de reciclaje, el sebo porcino y las harinas de subproductos avícolas o porcinos contienen altas proporciones de ácidos grasos insaturados propensos a la autooxidación. Si no se estabilizan inmediatamente tras el procesamiento térmico en la planta de rendering, la rápida generación de peróxidos y aldehídos reduce la palatabilidad del alimento y destruye las vitaminas A, D3 y E presentes en la formulación final [10], [30].
"La inclusión obligatoria de antioxidantes es vital para mantener la estabilidad oxidativa de la grasa y evitar el rechazo de los ingredientes grasos por degradación ranciotóxica." — Ing. Carlos H Aladino Triviño, Especialista en Rendering y Nutrición [30]
Efecto de los Antioxidantes en la Calidad de Carne de Cerdo y Reproducción
La suplementación con 200 UI/kg de alfa-tocoferol en la fase de acabado reduce el valor de sustancias reactivas al ácido tiobarbitúrico (TBARS) en carne fresca a menos de 0,30 mg MDA/kg [26]. El estado antioxidante previo al sacrificio es determinante para preservar la integridad estructural de la mioglobina y de las membranas celulares del miocito durante la transformación del músculo en carne [19].
Modulación de la Retención de Agua, Color de la Carne y Reducción del Goteo
La adición combinada de selenio de levadura y vitamina E reduce la pérdida de agua por goteo en el lomo (m. Longissimus dorsi) en un 2,4% [26]. Al proteger la bomba de Sodio-Potasio (Na+/K+-ATPasa) e impedir la desnaturalización proteica post-mortem, los antioxidantes mitigan la rápida caída del pH inicial y previenen la aparición de carnes pálidas, suaves y exudativas (PSE) [19]. Asimismo, la menor oxidación de la oximioglobina a metamioglobina mantiene el color rojo brillante atractivo por más de 7 días en anaquel [26].
"To counteract lipid oxidation, a combined selenium and vitamin E supplement is paramount. Selenium acts as an antioxidant enzyme cofactor, while vitamin E, stored in fatty tissue, liver, and muscle, neutralizes free radicals... targeting 5-6 mg per kilogram of muscle tissue, is essential for improving pork quality." — Paul Penny, Technical Consultant in Swine Industry [26]
Mitigación del Estrés Oxidativo en Cerdas Gestantes y Calidad Seminal del Verraco
La inclusión de antioxidantes naturales en cerdas gestantes incrementa el peso del lechón al nacer en 110 gramos y reduce la tasa de nacidos muertos en un 3,5% [22]. Durante la gestación tardía, la intensa actividad metabólica placentaria y el rápido crecimiento fetal aumentan exponencialmente la producción de ROS en la cerda, pudiendo provocar restricción del crecimiento intrauterino (IUGR) [22].
En los verracos, la alta concentración de ácidos grasos poliinsaturados en la membrana espermática los hace extremadamente vulnerables al daño oxidativo durante el almacenamiento del semen. La adición de ácido ascórbico (1,5 g/L) y selenio en el diluyente preserva la integridad acrosomal y mantiene la motilidad espermática por encima del 80% a las 72 horas post-colecta [24], [33].
| Indicador Técnico | Grupo Control (Sin Antioxidante Extra) | Grupo Tratado (Vitamina E + Se Orgánico + Polifenoles) | Parámetro Productivo / Medible | Referencia |
|---|---|---|---|---|
| Peso Promedio Lechón al Nacer | 1,28 kg | 1,39 kg | Incremento de 110 g/lechón al nacimiento | [22] |
| Porcentaje de Nacidos Muertos | 7,8% | 4,3% | Reducción de 7,8% a 4,3% en mortalidad neonatal | [22] |
| Motilidad Seminal Verracos (72h) | 62,5% | 83,0% | Incremento de 20,5 puntos porcentuales | [24] |
| Integridad Acrosomal Espermática | 71,0% | 89,5% | Incremento de 18,5 puntos porcentuales | [33] |
| Pérdida por Exudación de Carne (Drip) | 3,9% | 1,5% | Reducción de exudado de 3,9% a 1,5% | [19] |
Preguntas Frecuentes (FAQ)
Q: ¿Cuál es el más potente antioxidante? A: A nivel enzimático endógeno, la glutatión peroxidasa y la superóxido dismutasa son los sistemas más potentes en cerdos [4]. A nivel dietético exógeno, el alfa-tocoferol (vitamina E) en sinergia con el selenio orgánico constituye el complejo liposoluble neutralizador de radicales libres más eficiente [26].
Q: ¿Cuáles son 10 productos antioxidantes? A: Los 10 productos más utilizados en porcicultura son: alfa-tocoferol, selenio orgánico, ácido ascórbico, flavonoides cítricos, extracto de romero, tocoferoles mixtos, resveratrol, taninos condensados, betacarotenos y complejo de catequinas vegetales [13], [16].
Q: ¿Cuál es el alimento más rico en antioxidantes? A: Los concentrados fitogénicos derivados de extractos cítricos, hollejo de uva, romero y orégano poseen la mayor densidad de polifenoles antioxidantes [3]. En ingredientes tradicionales, la harina de alfalfa y el aceite de germen de trigo aportan las mayores concentraciones naturales de tocoferoles [16].
Q: ¿Cómo afecta el estrés por calor la integridad intestinal y el estado oxidativo en cerdos? A: El estrés térmico genera vasoconstricción visceral e hipoxia hística, disparando la producción de especies reactivas de oxígeno en los enterocitos [14]. Esto destruye las proteínas de unión estrecha, provoca 'intestino permeable', reduce la absorción nutricia e incrementa la translocación de endotoxinas sistémicas [3], [35].
Q: ¿Qué aditivos permiten reemplazar la etoxiquina sin perder estabilidad oxidativa en las grasas? A: Las mezclas de tocoferoles naturales (alfa, gamma y delta) combinadas de forma sinérgica con extracto de romero y ácido cítrico reemplazan eficazmente a la etoxiquina [30]. Esta combinación asegura un período de inducción superior a 20 horas en pruebas OSI de rendering porcino [30].
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
Juan Mateo Lees: Estrés oxidativo y salud intestinal en cerdos
-
Clementine Marien: Selsaf®3000: Organic Selenium for Oxidative Stress
-
John Furness: Phytonutrients: Antioxidants for Pig Heat Stress
-
Jose Mauro Arrieta: Selenio orgánico y expresión genética antioxidante
-
Guillermo Mattioli: Estrés oxidativo: Impacto de minerales y vitaminas en bovinos
-
Alexandre da Silva Sechinato: Microminerales inorgánicos: efecto prooxidante en pollos
-
Juan Mateo Lees: PhytoShield: Antioxidantes para Calidad de Carne en Aves
-
Diego Guerrero Huerta: Niveles óptimos de vitaminas en dietas para cerdos
-
Jorge Labala: Aditivos clave para la salud intestinal porcina
-
Fabian Ulises Fridstein García: Estrés oxidativo en cerdos: causas y rol de la Vitamina E
-
Michele De Marco: Estrés Oxidativo: Definición y Impacto en Cerdos
-
T.J. Gaydos: Oxidative stress and gut health in pigs
-
Elías Chávez Delgadillo, Sergio Román Othón Serna Saldívar: Antioxidantes: clave para la inmunidad y salud intestinal del lechón
-
Produmix-Igusol: Estrés Oxidativo y sus Consecuencias en Cerdos por Calor
-
Brecht Bruneel y Miguel Trepat: Rol del Selenio en la Mitigación del Estrés Oxidativo Porcino
-
Dr Mike Varley: Crucial Dietary Antioxidants for Swine Health
-
Dr. Ankur Gupta: Stress and Oxidative Stress: A Harmful Cycle in Swine
-
PlusVet Animal Health: Dosis de Vitaminas para Cerdos con Estrés Térmico
-
Luis Humberto López Hernández, María Alejandra Pérez Alvarado, Dr. José Cuarón: Vitamina E: Clave para el crecimiento y calidad de carne porcina
-
Isela Campoy: Efectos de Vitamina C y E en cerdos posdestete
-
Fabian Ulises Fridstein García: Vitamina E mitiga estrés oxidativo en lechones por aceite oxidado
-
Dr. Shivi Maini: Antioxidantes naturales en cerdas gestantes: mejora reproductiva
-
David Saornil y Marta Revuelta Gutiérrez: Aditivos nutricionales contra el estrés térmico en cerdas
-
Jose Manuel Valdez Torres: Estrés oxidativo en semen porcino: rol de antioxidantes
-
Med. Vet. Carlos Alberto Lozano Poveda: Antioxidantes vitamínicos: protección intestinal porcina
-
PAUL PENNY: Selenium and Vitamin E: Antioxidant Role in Pork
-
Enrique Castañeda: Nutrición para reducir impacto ambiental en porcinos
-
Daniel Leon Gaxiola: Exceso de vitaminas y minerales en cerdos: riesgos
-
Alexander Rodriguez Osorio: Rotación de porquerizas: impacto en el peso y estrés porcino
-
Carlos H Aladino Triviño: Antioxidantes en Grasa de Rendering para Pet Food
-
Albis Salas: Control de Micotoxinas y Estrés Oxidativo en Cerdos
-
Álvaro Pedroche: Contaminación Atmosférica y Estrés Oxidativo en Aves/Cerdos
-
Aurora Margarita Pantoja Lugo: Selenio y Vitamina E: claves para la fertilidad del verraco
-
Eros baroni: Antioxidants for Pork Quality: Selenium vs. Omega-3
-
Álvaro Pedroche: Estrés por Calor: Daño Oxidativo Intestinal en Aves/Cerdos




México