Enzimas en la Nutrición Avícola: Guía Técnica de Matrices Nutricionales, Salud Intestinal y Reducción de Costos
El uso de enzimas exógenas en la nutrición avícola es la suplementación estratégica de biocatalizadores para degradar factores antinutricionales y sustratos indigestibles. Se implementa mediante matrices nutricionales dinámicas, manteniendo umbrales de 500 a 1.500 FTU/kg de fitasa y 10.000 U/kg de xilanasa, lo que previene la disbiosis entérica y optimiza la conversión alimenticia en pollos y ponedoras [1].
- Desafío Técnico y Causa Primaria: La presencia de fitatos y polisacáridos no amiláceos (PNA) incrementa la viscosidad intestinal, bloquea nutrientes esenciales y favorece la proliferación de patógenos.
- Impacto Cuantitativo: Pérdida de 8 a 12 puntos en conversión alimenticia (FCR), incremento del 15% en humedad de cama y sobrecosto de 4.00 a 6.00 por tonelada de alimento.
- Protocolo de Intervención Verificado: Asignación de matriz nutricional con superdosis de fitasa (1.500 FTU/kg) y proteasa (15.000 PROT/kg) ajustada según sustrato analizado por NIRS.
Mecanismo de Acción de la Fitasa y Matriz Ca-P en Aves
La fitasa exógena hidroliza los enlaces éster fosfato del ácido fítico (mio-inositol 1,2,3,4,5,6-hexakisdietilfosfato o IP6) a isómeros de inositol inferiores, liberando entre 0,10% y 0,18% de fósforo disponible y reduciendo el consumo de fosfato dicálcico [13].
El ácido fítico es una molécula polianiónica altamente reactiva en el tracto gastrointestinal (TGI) de las aves. A pH ácido (proventrículo y molleja), el IP6 se une fuertemente a proteínas de la dieta y enzimas endógenas (como la pepsina), formando complejos fitato-proteína insolubles que disminuyen la digestibilidad de los aminoácidos y aumentan la excreción de nitrógeno endógeno. A pH neutro (duodeno y yeyuno), el fitato precipita con cationes divalentes como el Calcio (Ca2+), Zinc (Zn2+) y Magnesio (Mg2+), volviéndolos inasimilables.
| Etapa de Desfosforilación | Sustrato / Intermediario | Complejo Enzimático y pH | Metabolito Liberado e Impacto Zootécnico |
|---|---|---|---|
| Paso 1: Hidrólisis Inicial | Mio-Inositol Hexakisdietilfosfato (IP6) | Fitasa exógena activa a pH proventricular (2,5 – 5,5) | IP5 + Pi (Liberación inicial de fósforo inorgánico disponible) |
| Paso 2: Degradación Secuencial | IP5 $\rightarrow$ IP4 | Fitasas y fosfatasas endógenas | IP4 + Pi (Reducción de capacidad quelante de minerales divalentes) |
| Paso 3: Hidrólisis Progresiva | IP4 $\rightarrow$ IP3 | Fosfatasas de la mucosa intestinal | IP3 + Pi (Prevención de formación de complejos con proteínas) |
| Paso 4: Clivaje Sub-intestinal | IP3 $\rightarrow$ IP2 $\rightarrow$ IP1 | Fosfatasas epiteliales duodenales y yeyunales | IP2 + IP1 + Pi (Desaparición de residuos antinutricionales) |
| Paso 5: Liberación Final | IP1 $\rightarrow$ Mio-Inositol Libre | Fosfatasa alcalina intestinal | Mio-inositol libre (Estímulo metabólico celular, lipotrópico y glucídico) |
Al incluir fitasa microbiana (proveniente de fuentes bacterianas altamente eficientes como E. coli o fúngicas como Aspergillus niger), se rompe la estructura del fitato en el proventrículo antes de que alcance el intestino delgado [9]. La valoración de la matriz nutricional de la fitasa no se limita al fósforo disponible; exige una acreditación multidimensional de nutrientes:
- Liberación de Fósforo (P disponible): Aportes de 0,10% a 0,15% según la dosis (500 a 1.000 FTU/kg).
- Ahorro de Calcio (Ca): Liberación de 0,12% a 0,16% de Ca2+, permitiendo corregir la relación Ca:P disponible a niveles óptimos (2:1 en inicio de engorde y 1.8:1 en engorde final).
- Sodio (Na): Crédito de 0,03% a 0,05% de Na debido a la menor secreción endógena de bicarbonato de sodio pancreático necesario para neutralizar la digestión alterada por fitato.
- Aminoácidos Digestibles y Energía Metabolizable (AME): Ahorro de 1,5% a 2,5% de aminoácidos digestibles (Lys, Met, Cys, Thr) y de 40 a 70 kcal/kg de AME por la prevención de complejos fitato-proteína y reducción del costo energético de automantenimiento mucoso [18].
"Es fundamental comprender que las enzimas son sustrato-dependientes. Cuando evaluamos el efecto de una enzima en la dieta, debemos cuantificar exactamente la fracción indigestible y la concentración de fitato o polisacáridos para ajustar la matriz con precisión y asegurar el retorno económico." — Eduardo Trevisol, IFF / Danisco [10]
Proteasas y Digestibilidad de la Proteína Indigestible
Las proteasas exógenas degradan la fracción proteica no digerible de la soya y harinas de subproductos, incrementando la digestibilidad de aminoácidos esenciales entre un 2% y 4% y reduciendo el nitrógeno ureico en heces [10].
A pesar de la alta calidad nutricional de la harina de extracción de soya (SBM) y otras fuentes proteicas, entre un 10% y un 15% de la proteína bruta consumida por las aves escapa a la digestión enzimática endógena (pepsina, tripsina, quimiotripsina). Esta fracción indigestible está compuesta por:
- Proteínas estructurales asociadas a la pared celular vegetal: Globulinas (glicinina y beta-conglicinina) atrapadas en matrices de pectina y hemicelulosa.
- Inhibidores de tripsina y lectinas: Factores antinutricionales termosensibles que resisten parcialmente el procesamiento térmico de la soya.
- Proteínas recalcitrantes de subproductos animales: Queratina hidrolizada o harinas de pluma y sangre con enlaces disulfuro de difícil acceso.
La adición de mono-proteasas de serina de amplio espectro (o subtilisinas) complementa el equipo enzimático endógeno de la ave [31]. Al hidrolizar enlaces peptídicos específicos en el quimo, la proteasa reduce la viscosidad proteica y solubiliza los complejos proteína-PNA.
| Segmento Gastrointestinal | Fracción Proteica Diana | Acción de Proteasa Exógena (Subtilisina) | Beneficio Fisiológico y Sanitario |
|---|---|---|---|
| Ingesta en Molleja/Proventrículo | Proteína indigestible (10-15% del total) | Desnaturalización de inhibidores de tripsina y lectinas | Solubilización inicial de complejos recalcitrantes de soya |
| Yeyuno Proximal | Cadenas polipeptídicas complejas | Clivaje de enlaces peptídicos específicos | Fragmentación acelerada en oligopéptidos y aminoácidos libres |
| Yeyuno Medio e Íleon | Oligopéptidos absorbibles | Transporte activo en enterocitos epiteliales | Aumento de digestibilidad ileal de aminoácidos (+2% a +4%) |
| Íleon Terminal y Ciegos | Fracción proteica residual no absorbida | Supresión de proteína indigestible luminal | Disminución de sustrato para C. perfringens, menor enteritis y cama seca |
El impacto zootécnico de la proteasa exógena es doble:
- Nutricional: Permite la reducción del nivel de Proteína Bruta (PB) total de la ración en un 0,5% a 0,8%, reduciendo la inclusión de harina de soya sin comprometer la ganancia diaria de peso (GDP) o el rendimiento de pechuga [26].
- Salud Intestinal: Disminuye la cantidad de nitrógeno proteico que llega al ciego. La proteína indigestible en el intestino posterior promueve la proliferación de gérmenes patógenos como Clostridium perfringens y Escherichia coli, desencadenando enteritis bacteriana subclínica y aumento de la humedad en las deyecciones.
Enzimas PNA y Carbohidrasas en Dietas Avícolas
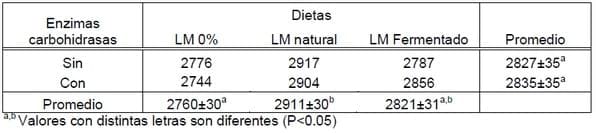
Las carbohidrasas despolimerizan los polisacáridos no amiláceos (PNA) solubles e insolubles, reduciendo la viscosidad digesta en un 20-35% y liberando entre 50 y 120 kcal/kg de energía metabolizable [12].
Los cereales utilizados en la formulación avícola (maíz, trigo, cebada, sorgo) contienen niveles variables de polisacáridos no amiláceos. Los PNA solubles, como los arabinoxilanos del trigo y maíz, y los beta-glucanos de la cebada, absorben grandes cantidades de agua en el lumen intestinal, formando un gel viscoso. Esta viscosidad reduce la tasa de difusión de las enzimas endógenas hacia los nutrientes, disminuye la motilidad intestinal y desacelera el paso del quimo.
Por otro lado, los PNA insolubles constituyen la "jaula de celulosa y hemicelulosa" de las paredes celulares vegetales, la cual encapsula almidones y proteínas utilizables, impidiendo su acceso enzimático ("efecto jaula").
| Nivel Estructural | Sustrato Vegetal | Acción de Carbohidrasas (Xilanasa / Glucanasa) | Impacto Digestivo y Prebiótico |
|---|---|---|---|
| Pared Celular Vegetal | PNA solubles e insolubles (arabinoxilanos/glucanos) | Clivaje endo-catalítico de la cadena principal | Ruptura física del "efecto jaula" de la fibra vegetal |
| Lumen Duodenal/Yeyunal | Fracción de PNA de alta viscosidad | Despolimerización de polímeros viscosos | Reducción de viscosidad digesta (20-35%) y difusión acelerada |
| Matriz del Endospermo | Almidón y proteína encapsulados | Hidrólisis de barreras de hemicelulosa | Mayor contacto enzima-sustrato (+50 a +120 kcal/kg AME) |
| Fermentación Cecal | Xilo-oligosacáridos (XOS) solubilizados | Fermentación por microbiota comensal | Producción de AGCC (butirato) y refuerzo de barrera mucosa |
Definición y Clasificación Bioquímica de Enzimas Nutricionales
Las enzimas nutricionales son proteínas catalíticas exógenas añadidas al alimento avícola para descomponer enlaces químicos específicos en ingredientes vegetales o animales que las enzimas endógenas del ave no pueden digerir [19].
Funciones Fisiológicas Principales de las Enzimas en Nutrición Aviar
Las tres funciones principales de las enzimas son la eliminación de factores antinutricionales, la liberación de nutrientes atrapados en la pared celular y la reducción de la viscosidad del quimo intestinal [14].
"La suplementación con enzimas carbohidrasas permite maximizar el uso de ingredientes alternativos y subproductos ricos en fibra, reduciendo el costo de la tonelada de alimento sin perjudicar la ganancia de peso o la conversión alimenticia." — Tryadd, Especialistas en Nutrición Avícola [4]
Blends Multienzimáticos vs. Enzimas Individuales
Los blends multienzimáticos combinan xilanasas, glucanasas, proteasas y fitasas para atacar simultáneamente la matriz compleja de la pared celular vegetal, logrando sinergias que superan la respuesta de enzimas monocomponentes en un 15% [11].
La arquitectura celular de las materias primas avícolas no presenta sustratos puros de un solo tipo. Por ejemplo, en un grano de maíz o un pellet de harina de soya, los arabinoxilanos, las pectinatoxinas, las beta-mananas y las proteínas estructurales se encuentran estrechamente entrelazados mediante enlaces covalentes y puentes de hidrógeno.
El empleo de una enzima monocomponente (ej. solo xilanasa) hidroliza la cadena principal de xilanos, pero su actividad queda físicamente bloqueada si existen ramificaciones de arabinosa, galactosa o recubrimientos proteicos alrededor de la pared celular [30].
| Enzima en el Blend | Sustrato Diana Específico | Mecanismo Bioquímico de Acción | Sinergia en la Respuesta Productiva |
|---|---|---|---|
| Endo-Xilanasa | Arabinoxilanos de maíz, trigo y DDGS | Escisión de enlaces beta-1,4-D-xilosídicos | Disminución de viscosidad y aceleración del tránsito luminal |
| Beta-Glucanasa | Beta-glucanos mixtos de cereales | Hidrólisis de enlaces beta-(1,3)(1,4) | Eliminación de geles mucilaginosos en el tracto anterior |
| Alpha-Galactosidasa | Oligosacáridos de soya (rafinosa, estaquiosa) | Escisión de residuos terminales de galactosa | Supresión de fermentación rápida indeseable y meteorismo |
| Mono-Proteasa | Proteínas de reserva y factores antinutricionales | Hidrólisis de inhibidores de tripsina y lectinas | Acceso abierto para que carbohidrasas y fitasas actúen |
| 6-Fitasa Bacteriana | Complejos fitato-mineral-proteína (IP6) | Desfosforilación proventricular temprana | Liberación de P, Ca y energía; Respuesta Sincrónica (+120 kcal/kg EM) |
Complejos Enzimáticos Principales Utilizados en la Alimentación Avícola
Las siete enzimas principales en avicultura son fitasa, xilanasa, beta-glucanasa, proteasa, amilasa, alpha-galactosidasa y lipasa, cada una dirigida a un sustrato específico del alimento [19].
Enzimas Digestivas Primarias Endógenas y su Complementación Exógena
Las tres enzimas digestivas primarias son la amilasa (hidrólisis de almidón), la proteasa (descomposición de proteínas) y la lipasa (degradación de lípidos y grasas) [35].
"Las enzimas de origen bacteriano presentan una mayor termoestabilidad intrínseca y una bioactividad superior a pH fisiológico digestivo en comparación con cepas fúngicas tradicionales, permitiendo mayores márgenes de ahorro económico en la formulación de raciones." — Roberto Santiago, Danisco Animal Nutrition [9]
Superdosis de Fitasa y Salud Intestinal en Broilers y Ponedoras
La superdosificación de fitasa (≥1.500 FTU/kg) destruye rápidamente el IP6 y sus ésteres inferiores (IP5-IP2), eliminando su efecto antinutricional de quelación y liberando inositol libre para estimular la ganancia de peso [3].
El concepto tradicional de uso de fitasa (dosis estándar de 500 FTU/kg) se enfoca exclusivamente en la liberación de fósforo inorgánico para reemplazar la inclusión de fosfato dicálcico o monocálcico. Sin embargo, en una dosis de 500 FTU/kg, queda un residuo significativo de IP5, IP4 e IP3 en el quimo duodenal. Estos ésteres inferiores continúan ejerciendo un efecto antinutricional moderado e impiden la producción de mio-inositol libre.
Cuando se aplican superdosis de fitasa (1.500 a 3.000 FTU/kg):
- Eliminación Total del Efecto Antinutricional: Se destruye más del 85-95% del IP6 dentro de la molleja en los primeros 15 a 30 minutos tras la ingesta.
- Efecto Mio-Inositol (Pro-Metabólico): La degradación completa del fitato hasta mio-inositol provee una molécula lipotrópica clave que estimula la síntesis de fosfolípidos de membrana, mejora el transporte de lípidos en el hígado y actúa como un potente estimulador de la captación de glucosa celular mediada por insulina.
- Mantenimiento de la Integridad de Uniones Estrechas (Tight Junctions): Al reducirse la irritación química del fitato no disociado sobre el epitelio intestinal, disminuye la producción compensatoria de mucina endógena por las células caliciformes, preservando la altura de las vellosidades y la profundidad de las criptas.
| Parámetro de Evaluación | Dosis Estándar de Fitasa (500 FTU/kg) | Superdosificación de Fitasa (1.500 – 3.000 FTU/kg) | Ventaja Zootécnica y Retorno Económico |
|---|---|---|---|
| Grado de Desglose de IP6 | Parcial (acumulación residual de IP5, IP4 e IP3) | Completo (desaparición de IP6 e intermediarios quelantes) | Eliminación total del efecto antinutricional del fitato |
| Liberación de Fósforo Disponible | 0,10% a 0,12% de P disponible | 0,15% a 0,18% de P disponible | Mayor ahorro por reemplazo de fosfatos inorgánicos |
| Generación de Mio-Inositol | Mínima o nula | Alta concentración de mio-inositol libre | Estímulo lipotrópico y captación celular de glucosa |
| Impacto en Conversión (FCR) | Reducción de 2 a 3 puntos de FCR | Reducción de 6 a 10 puntos de FCR | Máximo índice de eficiencia productiva (IEP/EPEF) |
| Salud e Integridad Mucosa | Alivio digestivo moderado | Supresión de mucinosis compensatoria y tight junctions selladas | Cama un 10-15% más seca y patas sanas (menor pododermatitis) |
En ponedoras comerciales y reproductoras pesadas, la superdosis de fitasa reduce la incidencia de rotura de huevo en un 1,2% a 2,5% debido a una calcinación superior de la cáscara durante las horas de fosforilación nocturna en la glándula del cascarón.
Lipasas en Nutrición Aviar y Aprovechamiento Energético
Las lipasas exógenas incrementan la hidrólisis de triglicéridos de cadena larga en las fases iniciales del ave, optimizando la digestibilidad lipídica entre 3% y 6% cuando la producción endógena de sales biliares es inmadura [18].
En los primeros 14 días de vida del pollo de engorde, el aparato digestivo presenta una inmadurez fisiológica crítica para el manejo de lípidos concentrados (aceite de soya, sebo bovino, mezclas de ácidos grasos). Durante este periodo:
- La secreción de sales biliares endógenas es insuficiente para emulsificar eficientemente las grasas saturadas.
- La actividad lipásica pancreática nativa alcanza su pico máximo recién después del día 21.
La inclusión de lipasas exógenas microbianas en dietas pre-iniciadoras e iniciadoras acelera la escisión de triglicéridos en 2-monoacilgliceroles y ácidos grasos libres (AGL). Esto favorece la formación espontánea de micelas mixtas dentro del lumen intestinal, aumentando la solubilización y absorción de vitaminas liposolubles (A, D3, E y K) y reduciendo la excreción de jabones cálcicos insolubles en las excretas.
| Fase Fisiológica en Pollos Jóvenes | Condición Digestiva Luminal (<14 Días) | Intervención con Lipasa Exógena | Impacto Zootécnico y Nutricional |
|---|---|---|---|
| Ingesta de Grasas Concentradas | Secreción limitada de sales biliares endógenas | Emulsificación asistida en fase inicial | Reduce el riesgo de tránsito rápido y esteatorrea lipídica |
| Actividad Enzimática Nativa | Maduración pancreática incompleta de lipasa nativa | Hidrólisis acelerada de enlaces 1 y 3 de triglicéridos | Liberación rápida de 2-monoacilgliceroles y ácidos grasos libres |
| Absorción en Enterocitos | Deficiencia en formación espontánea de micelas mixtas | Micelización eficiente y absorción trans-epitelial | Mayor aprovechamiento de vitaminas liposolubles (A, D3, E, K) |
| Rendimiento Calórico Total | Pérdida de energía digestible en heces | Aumento neto de digestibilidad de lípidos (+3% a +6%) | Ganancia energética de +50 a +90 kcal/kg de alimento terminado |
Matriz de Control de Puntos Críticos (PCC) en el Programa Enzimático Avícola
A continuación se detalla la matriz de diez Puntos Críticos de Control (PCC) para garantizar la máxima recuperación bioactiva de las enzimas en la planta de alimentos y en el tracto digestivo de las aves:
| Etapa del Proceso | Punto Crítico de Control (PCC) | Parámetro Cuantitativo | Enzima / Mecanismo | Impacto Zootécnico | Referencia |
|---|---|---|---|---|---|
| Recepción de Granos | Tamizado y NIRS de sustrato | Determinación de PNA solubles y fitato (%) | Detección de diana enzimática | Selección precisa del cóctel enzimático adecuado | [10] |
| Dosificación Premix | Precisión del micro-dosificador | Tolerancia de mezclado ± 1,0% del valor objetivo | Todos los tipos de enzimas | Evita subdosis o desperdicio por sobredosificación | [28] |
| Mezclado en Seco | Tiempo de mezclado homogeneizado | Coeficiente de variación (CV) inferior al 5% | Distribución uniforme de biocatalizadores | Homogeneidad de consumo en el lote de aves | [32] |
| Acondicionado Térmico | Temperatura de acondicionador | 80 °C a 85 °C por un tiempo máximo de 30 segundos | Resistencia de enzimas recubiertas (CT) | Preserva la actividad proteica de la enzima | [1] |
| Peletizado | Presión de vapor y dado | Presión de 2,0 a 3,5 bar en la matriz | Estabilidad térmica estructural | Previene la desnaturalización Irreversible de proteínas | [23] |
| Enfriado de Pellet | Humedad residual del pellet | Humedad final inferior al 12,5% | Retención de actividad acuosa (aw < 0,65) | Previene la inactivación hidrolítica en almacenamiento | [1] |
| Post-Peletizado (PPLA) | Aplicación líquida post-pellet | Cobertura atomizada de 100 a 500 ml/tonelada | Enzimas líquidas termosensibles | Evita totalmente el estrés térmico del peletizado | [4] |
| Molleja e Intestino Prox. | Gradiente de pH en proventrículo | pH 2,5 a 4,5 en la molleja | Fitasa / Proteasa de acción ácida | Hidrólisis rápida previa a la precipitación proteica | [3] |
| Intestino Delgado (Yeyuno) | Viscosidad de la fase fluida | Reducción de viscosidad de 4,5 a 2,5 cPs | Endo-xilanasa / Beta-glucanasa | Aumento de la tasa de difusión de nutrientes | [12] |
| Ciego | Fermentación de sustratos | Producción de AGCC (>80 mmol/L de acetato/butirato) | Prebiogénesis mediada por XOS | Supresión competitiva de enteropatógenos | [25] |
Preguntas Frecuentes (FAQ)
Q: ¿Cómo influye la estabilidad térmica del acondicionado y peletizado en la bioactividad de las enzimas exógenas? A: Las altas temperaturas de peletizado (>85 °C) pueden desnaturalizar las enzimas no recubiertas. Utilizar formulaciones termo-protegidas o sistemas de aplicación líquida post-peletizado (PPLA) garantiza una recuperación de actividad superior al 95% en el alimento terminado [1].
Q: ¿Cuál es el ahorro económico promedio en dólares por tonelada al aplicar matrices completas de fitasa y carbohidrasas? A: La valoración matricial completa de fitasas y carbohidrasas permite reducir el costo de la tonelada de alimento entre 4,00 y 6,00 USD, al sustituir fosfatos inorgánicos, aceite vegetal y fuentes de aminoácidos sintéticos [28].
Q: ¿De qué manera la superdosis de fitasa mejora la integridad de la mucosa intestinal y reduce la humedad de la cama? A: Al degradar el fitato en la molleja, la superdosis previene la moco-hipersecreción compensatoria de las células caliciformes y reduce la pérdida de sodio endógeno, lo que estabiliza el balance electrolítico y reduce la humedad de las excretas en un 10-15% [3].
Q: ¿Qué diferencia existe entre evaluar una enzima bajo el concepto de "Top-Dress" versus "Matriz de Formulación"? A: El concepto Top-Dress añade la enzima sobre una dieta completa para mejorar el rendimiento de las aves, mientras que la Matriz de Formulación acredita nutrientes a la enzima para reformular la dieta, reduciendo el costo por tonelada y manteniendo el rendimiento [4].
Q: ¿Cómo afecta la madurez fisiológica del tracto gastrointestinal de aves jóvenes la respuesta a enzimas exógenas? A: Las aves jóvenes tienen una secreción limitada de amilasa, proteasa y sales biliares en las primeras semanas de vida. Las enzimas exógenas suplen esta inmadurez fisiológica, mejorando la digestibilidad de grasas y proteínas en la fase inicial [21].
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
Vasco de Basilio: Enzimas Sólidas: Pre-digestión en Alimento Avícola Almacenado
-
Francisco Pallini: Natuzyme: Multienzimático para Aves y Cerdos
-
Dr. Sergio Fernández: Fitasas y Carbohidrasas-Proteasas en Nutrición Avícola
-
Tryadd: Enzimas para maximizar ingredientes y reducir costos en pollos
-
Héctor Leyva Jimenez: Multicarbohidrasas mejoran rendimiento en pollos de engorde
-
Mingan Choct: Enzyme Technology: Future Trends in Poultry Nutrition
-
Mingan Choct: Feed Enzymes & Net Energy: Advances in Poultry Nutrition
-
Nayeli Jazmín Rodríguez López: Carbohidrasas mejoran digestibilidad de HGM en pollos
-
Roberto Santiago: Enzimas bacterianas para ahorro en nutrición avícola
-
Eduardo Trevisol: Uso de Enzimas Sustrato-Dependientes en Pollos de Engorde
-
Justina Caldas: Mezclas Enzimáticas para Mayor Eficiencia Avícola
-
Dra. Anna Rogiewicz: Enzimas y valor nutritivo en avicultura
-
IAZ. Joaquin Armando Paulino Paniagua: Enzimas Exógenas: Digestibilidad y Rentabilidad Avícola
-
Dr. Fernando Rutz: Rol de enzimas exógenas en aves
-
Junaid Syed: Enzimas exógenas: clave para la digestibilidad avícola
-
Sergio Gomez, María de Lourdes Ángeles, Silvestre Charraga, Dr. Sergio Fernández: Conocimiento de Sustratos Clave para Enzimas Avícolas
-
Carmen Vásconez Montufar: Enzimas exógenas y digestión de polisacáridos en pollos
-
Bianca A. Brandao Martins: Funciones de enzimas exógenas en avicultura
-
Danisco Animal Nutrition, Departamento Técnico.: Enzimas Avícolas: Tipos y Sustratos Específicos
-
María Fernanda Peralta, Armando J Nilson y Miazzo Raul Daniel: Enzimas en avicultura: fitasas y celulolíticas
-
Anderson Lima: Enzimas Exógenas para Aves Jóvenes
-
Jeffersson Luiz Lecznieski: Enzimas Exógenas: Mejora de Digestibilidad y Costos en Avicultura
-
Leonel Mejia: Enzimas: Reducción de costos y mejora de digestibilidad en aves
-
María de los Ángeles Tepox Pérez: Enzimas Exógenas Optimizan Nutrientes y Reducen Costos en Avicultura
-
Antônio Mário Penz Junior: Enzimas para Sostenibilidad Avícola
-
Ing. Augusto Torero F.: Enzimas exógenas: ahorro en raciones avícolas
-
Erbilen Rossmary Yépez Montes y Ricardo Zambrano Moreira: Función de Enzimas Exógenas en Aves
-
Joaquin A. Paulino: Ahorro de $4-6/ton en alimento avícola con enzimas
-
Felix Del Aguila: Hidrólisis enzimática: +22% proteína digestible en aves
-
Alonso Quirós: Enzimas en Dietas Multicereal Avícolas
-
Marco A. Montenegro Idrogo: Enzimas en Avicultura: Mejora de Digestibilidad y Reducción de Costos
-
Ricardo Tepper: Estrategia de Uso de Enzimas en Aves
-
Fernando Patiño: Enzimas Exógenas: Reducción de Costos y Salud Intestinal
-
Bianca Martins: Factores clave en la eficacia enzimática para ponedoras
-
Oswaldo Seclèn Effio: Grupos de Enzimas en Nutrición Animal