Estrés Oxidativo en Bovinos Lecheros: Fisiopatología, Impacto Inmune y Estrategias Nutricionales de Control
El estrés oxidativo en bovinos lecheros es el desequilibrio citotóxico entre la producción de especies reactivas de oxígeno y las defensas antioxidantes endógenas. Su prevención y control se implementan mediante suplementación estratégica de selenometionina y alfa-tocoferol, manteniendo umbrales de 0,3 ppm de selenio y 1.000 UI/día de vitamina E en periparto, lo que previene la disfunción inmune y optimiza la producción láctea [1].
- Desafío Técnico y Causa Primaria: El estrés oxidativo en bovinos lecheros deriva del exceso metabólico de radicales libres durante el periparto no compensado por antioxidantes.
- Impacto Cuantitativo: Caída del 10% al 35% en producción láctea, duplicación de células somáticas (>400.000 cél/mL) y retención placentaria en vacas lecheras.
- Protocolo de Intervención Verificado: Suplementación oral con 0,3 ppm de hidróxido selenometionina y 1.000 UI/animal/día de Vitamina E desde 30 días preparto hasta 60 días posparto.
Qué Son las ROS y su Relación con el Estrés Oxidativo Bovino
Las especies reactivas de oxígeno (ROS) son moléculas hiperreactivas generadas por el metabolismo mitocondrial intracelular que reaccionan de forma inespecífica con lípidos, proteínas y ADN celular. En la fisiología del ganado lechero de alta producción, la respiración celular en la cadena transportadora de electrones mitocondrial es la fuente primaria ininterrumpida de prooxidantes [17]. Durante la reducción incompleta del oxígeno molecular (O2), se forman progresivamente el anión superóxido (O2bullet-), el peróxido de hidrógeno (H2O2) y el radical hidroxilo (OHbullet), este último con un potencial de daño citotóxico inmediato sobre la estructura fosfolipídica de las membranas plasmolíticas [16].
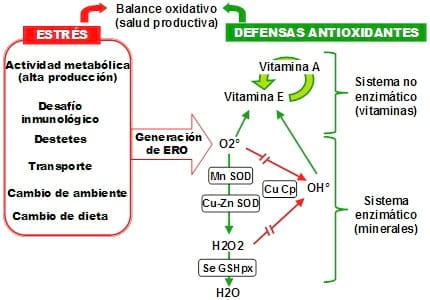
La segunda vía fisiológica de producción masiva de ROS se origina en la respuesta inmune innata durante el fenómeno denominado estallido respiratorio (burst oxidativo) en neutrófilos y macrófagos. Al fagocitar un agente patógeno, la enzima NADPH oxidasa genera una descarga intrafagocítica concentrada de radicales libres para lograr la apoptosis bacteriana; sin embargo, dado que el fagosoma no es un compartimento 100% hermético, entre un 15% y un 25% de estas especies reactivas se escapan hacia el citosol y el espacio extracelular, induciendo lesión hística colateral [17].
"El estrés oxidativo es el desequilibrio entre la producción de moléculas prooxidantes, llamadas radicales libres, y la capacidad de nuestro metabolismo en eliminarlas mediante el sistema antioxidante." — Garros Fontinhas, Adisseo [17]
Para contrarrestar esta constante amenaza química, el organismo bovino despliega un sistema antioxidante multicapa dividido en defensas enzimáticas y no enzimáticas. La sincronización de este sistema previene que el estrés oxidativo latente derive en necrosis tisular o disfunción metabólica sistémica [11].
| Categoría Antioxidante | Compuesto / Enzima | Mecanismo de Acción Bioquímico | Impacto Zootécnico Directo | Referencia |
|---|---|---|---|---|
| Defensa Enzimática Primaria | Superóxido Dismutasa (SOD) | Cataliza la dismutación del anión superóxido (O2bullet-) a peróxido de hidrógeno (H2O2). | Mantenimiento de la integridad celular eritrocitaria y mamaria. | [35] |
| Defensa Enzimática Seleno-dependiente | Glutatión Peroxidasa (GPx-1 / GPx-4) | Reduce el H2O2 y los hidroperóxidos lipídicos a agua y alcoholes inofensivos. | Reducción de la retención placentaria y control de mastitis. | [8] |
| Defensa Enzimática Citosólica | Catalasa | Degrada rígidamente altas concentraciones de H2O2 extracelular. | Protección del parénquima hepático contra necrosis oxidativa. | [16] |
| Defensa No Enzimática Liposoluble | Vitamina E (alpha-tocoferol) | Rompe la reacción en cadena de peroxidación lipídica en la bicapa membranosa. | Preservación de la viabilidad estructural del fagocito. | [11] |
| Defensa No Enzimática Hidrosoluble | Vitamina C y Glutatión Reducido (GSH) | Donadores de electrones directos que regeneran a la Vitamina E oxidada. | Sostenimiento de la reserva redox citoplasmática. | [17] |
Estrés Oxidativo en Vacas Lecheras en Transición y Posparto
El período de transición periparto induce un aumento drástico del metabolismo basal bovino que desencadena una producción masiva de peróxidos y lipomovilización periférica. Entre los 21 días previos al parto y los 21 días posteriores, la vaca sufre un déficit energético severo motivado por la caída del consumo de materia seca (CMS) y el inicio exponencial de la síntesis de colostro y leche [23]. Para suplir esta demanda energética, el tejido adiposo moviliza grandes volúmenes de ácidos grasos no esterificados (NEFA) hacia el torrente sanguíneo, los cuales sobrepasan la capacidad de oxidación hepática e incrementan la producción de beta-hidroxibutirato (BHBA) [14].
Tanto los NEFA circulantes como el BHBA ejercen un efecto prooxidante directo sobre el endotelio vascular y los hepatocitos. Evaluaciones clínicas demuestran que las concentraciones de malondialdehído (MDA) —el marcador de referencia de la peroxidación lipídica estructural— permanecen estables durante la gestación tardía, pero sufren un incremento del 100% (casi duplicando sus valores plasmáticos) en las dos primeras semanas postparto [17]. Este pico de MDA refleja que la tasa de generación de ROS supera ampliamente la capacidad amortiguadora del sistema antioxidante materno.
Para asegurar una transición inmunometabólica exitosa y prevenir la cascada citotóxica en el hato, el equipo zootécnico debe auditar la siguiente matriz de control cuantitativa:
| Paso / Fase | Punto Crítico de Control (PCC) | Parámetro Cuantitativo / Umbral | Acción de Intervención Zootécnica | Cita Técnica |
|---|---|---|---|---|
| 1. Secado (-60 días) | Evaluación del Estado Corporal (EC) | EC objetivo: 3,25 a 3,50 (Escala 1-5) | Ajustar la densidad energética para evitar sobrecondición al parto. | [14] |
| 2. Prequelado (-30 días) | Balance Mineral Cationico-Aniónico | DCAD de -50 a -150 mEq/kg MS | Prevenir hipocalcemia subclínica y estabilizar membranas. | [11] |
| 3. Preparto (-21 días) | Monitoreo de NEFA Sérico | NEFA < 0,30 mEq/L | Monitorear el nivel de estrés lipomovilizador en transición. | [23] |
| 4. Preparto (-15 días) | Suplementación Mineral Orgánica | 0,3 ppm Selenio + 1.000 UI Vit E | Garantizar la saturación enzimática previa al parto. | [1] |
| 5. Parto (Día 0) | Atención e Higiene de Parideros | Nivel de estrés ambiental mínimo | Minimizar descargas de cortisol que deprimen la fagocitosis. | [26] |
| 6. Posparto Inmediato (Día 1) | Consumo LÍquido e Hidratación | Drenaje cálcico + 40L agua fresca | Restituir volumen plasmático y depurar toxinas oxidativas. | [14] |
| 7. Posparto (+7 días) | Control Sérico de BHBA | BHBA < 1,2 mmol/L | Identificar cetosis subclínica proinflamatoria. | [4] |
| 8. Posparto (+14 días) | Muestreo de Malondialdehído (MDA) | Reducción de MDA a < 2,5 mumol/L | Validar la capacidad de contención de la peroxidación lipídica. | [17] |
| 9. Posparto (+21 días) | Auditoría de Salud Uterina | 0% metritis purulenta detectable | Evaluar la capacidad de resolución inmune en endometrio. | [15] |
| 10. Posparto (+30 días) | Recuento de Células Somáticas | RCS < 200.000 células/mL | Confirmar la funcionalidad de barrera mamaria postparto. | [9] |
Impacto del Estrés Oxidativo en la Salud Láctea y la Inmunidad
La disfunción neutrofílica producida por peroxidación lipídica compromete la migración leucocitaria y dispara el recuento de células somáticas por encima de 400.000 cél/mL. Cuando los radicales libres atacan los ácidos grasos poliinsaturados de la membrana neutrofílica, la fluidez celular se altera y se reduce drásticamente la capacidad de quimiotaxis y muerte bacteriana intracelular [16]. A nivel genómico, la acumulación de ROS actúa como molécula de señalización citoplasmática que induce la disociación del complejo coligado Ikappa B - NFkappa B.
Al liberarse, el factor de transcripción Nuclear Factor-kappa B (NFkappa B) sufre una translocación rápida hacia el núcleo celular, activando la transcripción de más de 100 genes proinflamatorios [17]. Esta respuesta génica dispara la síntesis descontrolada de citoquinas proinflamatorias como el Factor de Necrosis Tumoral alfa (TNF-α), la Interleucina 1-beta (IL-1beta) y la Interleucina-6 (IL-6). Esta inflamación sistémica de bajo grado no resuelta destruye las uniones estrechas (tight junctions) del epitelio secretor de la ubre, favoreciendo la diapédesis masiva de leucocitos no funcionales hacia la luz alveolar e incrementando bruscamente el recuento de células somáticas (RCS) [18].
"Los animales expuestos a un estrés del transporte, destete o cambio de ambiente sufren un deterioro de su respuesta inmune. La suplementación vitamínico-mineral con aminoácidos logra una conversión de anticuerpos significativamente mayor frente a desafíos vacunales." — Dr. Angel R. Bence, UNICEN Tandil [1]
Estudios comparativos entre vacas lecheras sanas y vacas con mastitis subclínica demuestran que la leche proveniente de animales infectados sufre una caída superior al 50% en la Capacidad Antioxidante Total (TAC), mientras que los marcadores de oxidación de proteínas (DNPAG) y de lípidos (MDA) se multiplican por 2,1 y 2,4 veces respectivamente [18]. Esta bancarrota antioxidante perpetúa el ciclo infeccioso y eleva la tasa de descarte involuntario.
Suplementación con Selenio y Vitamina E para Reducir Estrés Oxidativo
La administración combinada de hidróxido selenometionina y alfa-tocoferol neutraliza radicales libres intracelulares y repara las membranas lipídicas en tejido mamario bovino. El selenio es el elemento traza central de la defensa antioxidante debido a que se incorpora biológicamente en forma de selenocisteína dentro del sitio activo de las enzimas glutatión peroxidasa (GPx) y tioredoxina reductasa [7]. Sin embargo, el origen metabólico de la fuente de selenio dictamina su verdadera tasa de retención tisular en el rumiante.
Las fuentes inorgánicas tradicionales, como el selenito de sodio (Na2SeO3), sufren un proceso de reducción severo en el ambiente ruminal: los microorganismos reductores convierten hasta un 42% del selenito en selenio elemental insoluble (Se0), una forma químicamente inerte que se excreta de manera directa en las heces sin absorción intestinal [8]. Por el contrario, las fuentes orgánicas puras de tercera generación (hidróxido selenometionina) no sufren alteración ruminal y son absorbidas en el intestino delgado mediante los transportadores activos de aminoácidos de la metionina, integrándose directamente a las proteínas musculares como reserva estratégica [8].
"La selenometionina es la única forma que nos permite hacer un stock corporal de selenio. Cuando la vaca enfrenta picos de estrés metabólico, este depósito muscular se degrada fisiológicamente manteniendo la actividad antioxidante ininterrumpida." — Garros Fontinhas, Adisseo [7]
| Generación de Selenio | Composición Química | Transformación Ruminal | Biodisponibilidad Tisular | Impacto en Células Somáticas | Referencia |
|---|---|---|---|---|---|
| 1ª Generación (Inorgánica) | Selenito / Selenato de Sodio | Alta precipitación a Selenio Elemental (Se0) insoluble (hasta 42%). | Mínima (Excreción urinaria y fecal acelerada). | Mantiene el RCS sin reducciones significativas. | [8] |
| 2ª Generación (Pseudo-orgánica) | Levaduras Selenizadas | Absorción variable dependiente de la pared celular del levadura (50-70% SeMet). | Intermedia (Sujeta a variabilidad del lote fermentativo). | Reducción moderada del RCS en el posparto. | [8] |
| 3ª Generación (Orgánica Pura) | Hidróxido Selenometionina (SO-100%) | Resistencia total a la precipitación ruminal; absorción activa. | Máxima (Construcción de reservas musculares de SeMet). | Reducción de RCS de 400.000 a <180.000 cél/mL. | [9] |
El sinergismo con la Vitamina E (alfa-tocoferol) resulta indispensable: mientras que la Vitamina E actúa en la fase hidrófoba celular deteniendo la propagación de la peroxidación en los lípidos de la membrana plasmolítica, la Glutatión Peroxidasa (dependiente del selenio) actúa en la fase acuosa citoplasmática neutralizando el H2O2 antes de que ataque las estructuras liposolubles [11].
Efecto de las Micotoxinas y el Estrés Calórico en el Estado Oxidativo Bovino
El estrés térmico y la ingestión de micotoxinas alteran la permeabilidad intestinal bovina (leaky gut) disipando la capacidad antioxidante total en sangre. Cuando el Índice de Temperatura y Humedad (ITH) supera el umbral crítico de 72, la vaca lechera redirige el flujo sanguíneo hacia la periferia corporal para disipar calor, causando una hipoxia relativa y vasoconstricción en el lecho vascular del aparato digestivo [34]. Esta falta de oxigenación desencadena un estallido masivo de ROS en las enterocélulas, destruyendo las proteínas de unión celular (claudinas y ocludinas) y permitiendo el paso de lipopolisacáridos endotóxicos (LPS) hacia la circulación portal [17].
En vacas Holstein bajo estrés calórico severo, la baja en la producción lechera no se debe únicamente al menor consumo de materia seca: estudios con alimentación emparejada (pair-feeding) han demostrado que el consumo reducido solo explica el 50% de la caída láctea, siendo el 50% restante consecuencia directa del estrés oxidativo e inflamación intestinal que induce la pérdida de hasta un 35% de la eficiencia energética del animal [21].
Simultáneamente, la presencia de micotoxinas en la ración (Aflatoxina B1, T-2, Zearalenona y Vomitoxina) exacerba este daño endotelial. Las micotoxinas actúan como potentes agentes proinflamatorios que inducen la depleción directa del glutatión reducido (GSH) citoplasmático y saturan el sistema de desintoxicación hepático de la citocromo P450 [22]. La combinación de micotoxinas con un ITH elevado induce una tormenta prooxidante caracterizada por un incremento del 300% en las concentraciones de óxido nítrico (NO) y peróxidos circulantes [21].
Indicadores de Estrés Oxidativo y Respuesta con Glutatión Peroxidasa
La determinación sérica de glutatión peroxidasa y malondialdehído permite diagnosticar cuantitativamente el grado de lesión oxidativa y la reserva antioxidante tisular bovina. Dado que el estrés oxidativo cursa de manera subclínica en la mayoría de las explotaciones lecheras, la medicina veterinaria moderna utiliza biomarcadores plasmáticos y enzimáticos para evaluar objetivamente el balance redox del rodeo [20].
El monitoreo cuantitativo debe contemplar un panel integral de indicadores bioquímicos:
- Actividad de Glutatión Peroxidasa Eritrocitaria (GPx-1): Mide la capacidad antioxidante acumulada de los últimos 90 a 120 días (vida media del eritrocito bovino). Un nivel <60 U/g de hemoglobina indica deficiencia crítica de selenio y alta vulnerabilidad oxidativa [23].
- Concentración de Malondialdehído Plasmático (MDA): Determina el daño oxidativo lipídico activo en tiempo real. Valores séricos superiores a 2,5 mumol/L confirman una peroxidación membranosa descontrolada [17].
- Estatus Antioxidante Total (TAS / TAC): Refleja el poder acumulado de todos los antioxidantes presentes en el plasma. Una caída de TAS por debajo de 0,8 mmol/L presagia disfunción inmune y mastitis recurrente [18].
- Productos de Oxidación Proteica (DNPAG): Evalúa la carbonilación oxidativa de las cadenas aminoacídicas. Su elevación por encima de 1,2 nmol/mg de proteína evidencia necrosis hística en la glándula mamaria [18].
La suplementación continua con hidróxido selenometionina a razón de 0,3 ppm en la materia seca incrementa la actividad de la GPx en más de un 45% a los 28 días de inicio del protocolo, normalizando el TAS sérico y reduciendo las pérdidas económicas asociadas a la falla reproductiva y la mala calidad láctea [8].
Preguntas Frecuentes (FAQ)
Q: ¿Cómo se elimina el estrés oxidativo? A: El estrés oxidativo se elimina reequilibrando el balance redox mediante la suplementación oral de cofactores minerales (selenio orgánico, cobre, zinc) y antioxidantes no enzimáticos como la vitamina E, reduciendo además los factores de estrés ambiental [11].
Q: ¿Qué vitamina es buena para el estrés oxidativo? A: La Vitamina E (alpha-tocoferol) es la principal vitamina liposoluble para neutralizar el estrés oxidativo, actuando en las membranas celulares deteniendo la peroxidación lipídica, especialmente en sinergia funcional con la Vitamina A y la Vitamina C [11].
Q: ¿Cuáles son las hormonas que regulan el ciclo estral en bovinos? A: Las hormonas principales son la Hormona Liberadora de Gonadotropinas (GnRH), la Hormona Folículo Estimulante (FSH), la Hormona Luteinizante (LH), los Estrógenos, la Progesterona (P4) y la Prostaglandina F2alpha (PGF2alpha) [15].
Q: ¿Qué son las ROS y el estrés oxidativo? A: Las ROS (Especies Reactivas de Oxígeno) son moléculas derivadas del oxígeno extremadamente inestables. El estrés oxidativo es el desequilibrio citotóxico que ocurre cuando las ROS superan la capacidad neutralizadora del sistema antioxidante del animal [16].
Q: ¿Puede la suplementación con selenio reducir el recuento de células somáticas? A: Sí, la suplementación con 0,3 ppm de hidróxido selenometionina eleva la actividad antioxidante en la ubre, fortaleciendo la barrera epitelial mamaria y reduciendo el recuento de células somáticas a niveles óptimos <200.000 cél/mL [9].
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
Guillermo Mattioli: Cobre y ganancia de peso: Efectos subclínicos en terneros
-
Guillermo Mattioli: Fósforo y destete: Impacto en Corrientes
-
Guillermo Mattioli: Tetania hipomagnesémica: Prevención y manejo en bovinos
-
Guillermo Mattioli: Cromo: Mejorando la sensibilidad a la insulina en bovinos
-
Angel R. Bence: Suplementación para mejorar inmunidad en bovinos
-
Angel R. Bence: Sinergia nutricional para inmunidad bovina
-
Garros Fontinhas: Selenometionina y selenocisteína: El selenio en bovinos
-
Garros Fontinhas: Fuentes de selenio: Eficacia y absorción en bovinos
-
Garros Fontinhas: Selenio: Reduce recuento de células somáticas
-
Garros Fontinhas: Selenio periparto: Duración y beneficios
-
Guillermo Mattioli: Estrés oxidativo: Impacto de minerales y vitaminas en bovinos
-
Lizarraga RM, Galarza EM, Ventura MB, Mattioli GA1.: Deficiencia de Cobre y Ganancia de Peso en Terneros
-
Rojas M. et al.: Especies leñosas nativas para suplementos bovinos
-
Guillermo Mattioli: Estrés posparto: Impacto en vacas lecheras y soluciones
-
Guillermo Mattioli: Cobre y Selenio: Claves para la reproducción bovina
-
Ángel Abuelo: Estrés Oxidativo en Bovinos: Impacto Inmunológico y Soluciones
-
Garros Fontinhas: Estrés oxidativo: Definición y causas en bovinos
-
Garros Fontinhas: Estrés oxidativo: Salud de ubre y calidad de leche
-
Fernando Wittwer: Estrés Oxidativo y Selenio en Vacas Lecheras
-
Sebastian Picco: Estrés oxidativo en bovinos: impacto en la producción
-
Garros Fontinhas: Selenio: Mitigación del estrés por calor en vacas
-
Jorge Enrique Cruz: Micotoxinas y estrés oxidativo en vacas lecheras
-
Calcaterra F, Marcuzzi O, Fernández ME, Olivera LH, Guzmán Loza A, Giovambattista G, Picco SJ: Vulnerabilidad Periparto al Estrés Oxidativo
-
Julia Hamann: Estrés Oxidativo y Salud Láctea
-
Ángel Abuelo: Mayor Riesgo de EOX en Terneros durante Lactancia Artificial
-
Angel R. Bence: Impacto del estrés en la inmunidad bovina
-
Garros Fontinhas: Selenio: Jefe ejecutivo antioxidante en bovinos
-
Ewa Sujka, Liptosa Toledo: Estrés Oxidativo y Pérdidas Económicas en Ganadería
-
Alexandre da Silva Sechinato: Microminerales CAF reducen estrés oxidativo en pollos de engorda
-
Lallemand Animal Nutrition, Departamento Técnico: Estrés Oxidante: Fertilidad e Inmunidad Bovina
-
Dr. Rubén Barajas Cruz: Estrés Oxidativo en Bovinos: Causas y Consecuencias
-
Picco, S.J.: Estrés oxidativo vinculado a microminerales en periparto
-
Charlotte Visser. Central Technical Manager, Orffa Additives B.V. Alfredo J. Escribano. Regional Manager Americas, Orffa Additives B.V., .Brecht Bruneel, Innovation Manager, Orffa Additives B.V.: L-selenometionina: Estrés Oxidativo y Salud Mamaria
-
L Avendaño-Reyes: Estrés Calórico Aumenta Estrés Oxidativo en Holstein
-
Calcaterra F. et al.: SOD y Genes Diferenciales en Vacas Lecheras Posparto