Antioxidantes en Bovinos: Guía de Estrés Oxidativo, Selenio y Nutrición en Vacas Lecheras
El uso de antioxidantes en vacas lecheras y bovinos es la administración estratégica de micronutrientes y bioactivos para neutralizar especies reactivas de oxígeno. Se implementa mediante suplementación balanceada, manteniendo umbrales de 0.3 ppm de selenio orgánico y 500 UI/día de vitamina E, lo que previene la mastitis periparto y optimiza la producción láctea [1].
- Desafío Técnico y Causa Primaria: El estrés oxidativo periparto en vacas lecheras es provocado por el exceso metabólico de especies reactivas de oxígeno sin adecuado balance redox.
- Impacto Cuantitativo: Pérdidas de hasta un 35% en producción láctea por estrés térmico, caídas del 50% en capacidad antioxidante total y duplicación de células somáticas.
- Protocolo de Intervención Verificado: Adición diaria de 0.3 ppm de hidróxido selenometionina de tercera generación combinada con 500 UI/animal/día de vitamina E durante el periparto.
Estrés Oxidativo en Vacas Lecheras Periparto
El estrés oxidativo durante el período de transición genera un desequilibrio metabólico severo donde los prooxidantes superan la capacidad de la defensa celular endógena. En vacas lecheras de alta producción, el paso del estado gestante al lactante exige una aceleración drástica de la tasa metabólica tisular, incrementando el consumo hepático y mamario de oxígeno [14]. Como consecuencia colateral de la fosforilación oxidativa en las mitocondrias, una fracción del oxígeno consumido no se reduce completamente a agua, generando especies reactivas de oxígeno (ROS) como el anión superóxido (O2bullet-), el peróxido de hidrógeno (H2O2) y el radical hidroxilo (OHbullet).
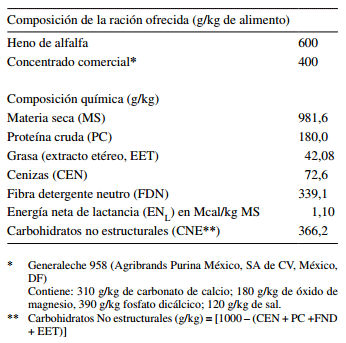
Durante el periparto, la intensa lipomovilización de ácidos grasos no esterificados (NEFA) desde el tejido adiposo incrementa la concentración plasmática de cetoácidos como el beta-hidroxibutirato (BHBA). La β-oxidación hepática sobrecargada de NEFA alimenta directamente la hiperproducción de radical de oxígeno en el complejo I y III de la cadena respiratoria mitocondrial [12]. Si el sistema de amortiguación antioxidante se encuentra depletado, el exceso de ROS inicia la cascadad de peroxidación lipídica en las membranas celulares plasmáticas y organelares, fragmentando los ácidos grasos poliinsaturados (PUFA) y generando compuestos citotóxicos como el malondialdehído (MDA) [10].
"El estrés oxidativo es el desequilibrio entre la producción de moléculas prooxidantes y la capacidad del metabolismo para eliminarlas mediante defensas antioxidantes." — Garros Fontinhas, Adiseo [14]
Fisiopatología Redox durante el Período de Transición
La demanda de oxígeno mitocondrial se duplica en el tejido mamario postparto, elevando la fuga de electrones a nivel del complejo I de la cadena respiratoria. En los 21 días previos y posteriores al parto, los mecanismos homeostáticos de la vaca lechera se ven sobrepasados por la demanda de síntesis láctea [28]. La interacción de niveles elevados de NEFA con una baja capacidad de barrido endógena altera la polaridad de la membrana mitocondrial, promoviendo la liberación de citocromo c al citosol e iniciando caspasa-dependiente de apoptosis en hepatocitos y células epiteliales mamarias [11].
Marcadores Cuantitativos del Daño Oxidativo
Las concentraciones plasmáticas de malondialdehído se elevan de 1.8 µmol/L preparto hasta superar los 3.5 µmol/L en las dos primeras semanas de lactancia. La cuantificación clínica del estado redox bovino se realiza mediante el perfil de Estado Antioxidante Total (TAS), Estado Oxidante Total (TOS) e Índice de Estrés Oxidativo (IEO = TOS/TAS) [23]. Adicionalmente, el marcador de oxidación proteica DNPAG y los niveles de hidroperóxidos lipídicos reflejan el deterioro metabólico estructural, permitiendo predecir la severidad de trastornos metabólicos secundarios como la cetosis clínica y el desplazamiento de abomaso.
Suplementación con Vitamina E y Selenio en Bovinos
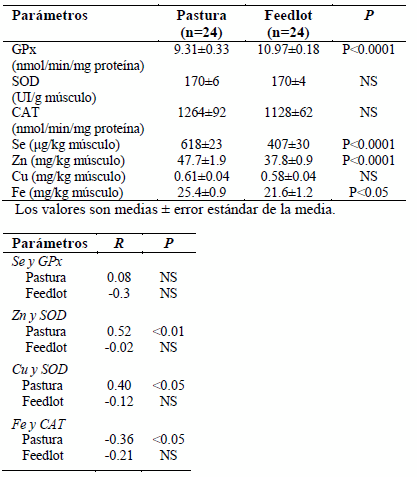
La interacción sinérgica entre la vitamina E liposoluble y el selenio micromineral constituye el eje fundamental de protección de las membranas lipídicas contra la peroxidación. La vitamina E (alpha-tocoferol) actúa directamente interceptando los radicales peroxilo (ROObullet) dentro del bicapa lipídica, deteniendo la reacción en cadena de peroxidación [31]. Por su parte, el selenio es el componente catalítico estructural del aminoácido selenocisteína, presente en el sitio activo de la enzima glutatión peroxidasa (GPx), la cual reduce el peróxido de hidrógeno y los hidroperóxidos orgánicos a agua y alcoholes inofensivos antes de que ataquen los lípidos celulares [22].
Sin embargo, el metabolismo del selenio en rumiantes presenta particularidades digestivas críticas. Las fuentes inorgánicas convencionales, como el selenito de sodio (Na2SeO3), sufren procesos de reducción química en el ambiente ruminal [1]. La microflora ruminal convierte hasta un 42% del selenito ingerido en selenio elemental insoluble (Se0), una forma química biológicamente inerte que se excreta directamente en las heces sin absorción sistémica [17].
Biodisponibilidad Ruminal y Formas Químicas de Selenio
El selenito de sodio sufre una conversión ruminal de hasta 42% hacia selenio elemental insoluble, reduciendo drásticamente su absorción intestinal efectiva. Por el contrario, las fuentes orgánicas de tercera generación, como la hidróxido selenometionina pura, son absorbidas intactas en el intestino delgado mediante los transportadores activos de aminoácidos neutros [17]. La selenometionina es incorporada inespecíficamente en las proteínas estructurales del organismo (músculo, tejido mamario), creando una reserva funcional corporativa de selenio que se moviliza gradualmente durante fases de catabolismo o alto estrés [15].
Protocolos Nutricionales de Suplementación Periparto
La administración combinada de 0.3 ppm de selenometionina pura y 500 UI/animal/día de alpha-tocoferol debe sostenerse ininterrumpidamente desde los 30 días preparto. En hatos con antecedentes de deficiencia o alta incidencia de retención placentaria, la dosis de vitamina E se incrementa a 1,000 UI/día durante el preparto cerrado [22]. La suplementación vía oral diaria garantiza una meseta plasmática constante, superando las limitaciones fisiológicas de las aplicaciones inyectables puntuales, las cuales generan picos de eliminación renal sin consolidar reservas tisulares duraderas [19].
Enzimas Antioxidantes Glutatión y Superóxido Dismutasa
Las enzimas superóxido dismutasa y glutatión peroxidasa forman el sistema de defensa catalítica de primera línea para neutralizar aniones superóxido y peróxido de hidrógeno. La superóxido dismutasa (SOD) cataliza la dismutación del anión superóxido en peróxido de hidrógeno y oxígeno molecular (2O2bullet- + 2H+ rightarrow H2O2 + O2) [25]. Esta enzima posee isoformas específicas según la localización subcelular: la SOD1 (Cu/Zn-SOD) presente en el citosol y espacio intermembrana mitocondrial, la SOD2 (Mn-SOD) ubicada en la matriz mitocondrial, y la SOD3 (Cu/Zn-SOD) extracelular [24].
Por otro lado, la familia de la glutatión peroxidasa (GPx) incluye isoformas dependientes de selenio (GPx1 a GPx4) que consumen glutatión reducido (GSH) para convertir el H2O2 en agua (H2O2 + 2GSH rightarrow GSSG + 2H2O) [14]. La GPx1 citosólica resguarda la masa muscular y eritrocitaria, mientras que la GPx4 (hidroperóxido de fosfolípido glutatión peroxidasa) interactúa directamente con los lípidos integrales de membrana, previniendo la ferroptosis y la necrosis hídrica celular [25].
| Punto Crítico de Control (PCC) | Etapa Productiva | Parámetro Operativo Target | Mecanismo de Acción / Impacto | Cita Técnica |
|---|---|---|---|---|
| PCC 1: Transición Preparto | 30 a 15 días preparto | 0.3 ppm Se-Orgánico + 500 UI Vit E/día | Acumulación de selenometionina tisular y prevención de caída estromal | [1] |
| PCC 2: Parto Inmediato | Día 0 postparto | IEO (TOS/TAS) < 1.2 | Neutralización del ráfaga oxidativa de la miometrio-contracción | [11] |
| PCC 3: Lactancia Temprana | 0 a 30 días postparto | GSH-Px sanguínea > 130 U/g Hb | Depuración de peróxidos derivados de la β-oxidación de NEFA | [14] |
| PCC 4: Estrés Térmico | Período estival (ITH > 72) | Hidróxido selenometionina 0.3 ppm | Protección de las barreras intestinales contra leaky gut y choque térmico | [12] |
| PCC 5: Lactancia Artificial | Día 1 a 60 en terneros | 100 UI Vit E + 0.3 mg Se/kg MS de RMR | Reducción del daño oxidativo por hierro y prevención del músculo blanco | [24] |
| PCC 6: Involución Uterina | 15 a 45 días postparto | Polimorfonucleares uterinos (PMN) < 5% | Activación fagocítica de neutrófilos e inhibición del factor NF-κB | [18] |
| PCC 7: Control de RCS | Lactancia continua | RCS < 150,000 cel/mL | Mantenimiento de las uniones estrechas del epitelio mamario | [10] |
| PCC 8: Pre-Servicio y Fertilidad | 45 a 90 días postparto | Zinc orgánico 60 ppm + Cu 15 ppm | Cofactores de SOD1 y SOD2 para protección del microambiente folicular | [23] |
| PCC 9: Donadoras de Embriones | Días de superovulación | Relación Ca:P estrictamente 1.5:1 a 2.5:1 | Preservación de la viabilidad del ovocito contra daño lipídico | [4] |
| PCC 10: Secado e Involución | Día de secado (Día -60) | Suplementación parenteral Vit E + Se | Refuerzo de la queratinización del esfínter del pezón e inmunidad innata | [22] |
Capacidad Antioxidante y Calidad de la Leche
La reducción de células somáticas por debajo de 200,000 cel/mL se logra directamente al preservar la integridad celular mamaria con un estatus redox optimizado. Las glándulas mamarias con mastitis subclínica o clínica sufren un reclutamiento masivo de leucocitos polimorfonucleares (PMN). Durante la fagocitosis de patógenos, los PMN ejecutan el llamado "estallido respiratorio" (burst oxidativo), liberando grandes volúmenes de anión superóxido y ácido hipocloroso (HOCl) mediante la enzima mieloperoxidasa [10].
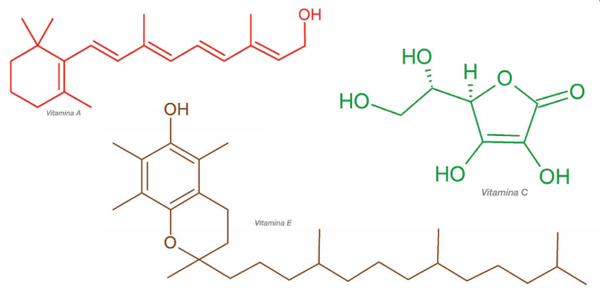
Si el estatus antioxidante de la leche es bajo, el exceso de radicales destruye el epitelio secretor de la glándula mamaria, alterando las permeabilidades paracelulares e incrementando el paso de sodio, cloro y proteínas seroalbulmínicas a la leche, lo que disminuye paralelamente la concentración de síntesis de lactosa y caseínas [16]. La adición estratégica de antioxidantes estabiliza las uniones ocludinas y claudinas de las células epiteliales mamarias, manteniendo bajo el recuento de células somáticas (RCS) y prolongando la vida útil comercial de la leche fluida y sus derivados procesados [20].
Impacto del Estatus Redox en el Recuento de Células Somáticas
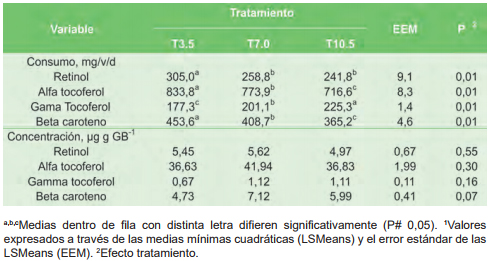
Las vacas con mastitis subclínica presentan una caída superior al 50% en la capacidad antioxidante total de la leche y una duplicación de malondialdehído. En evaluaciones continuas, la suplementación con hidróxido selenometionina a dosis de 0.3 ppm redujo linealmente el logaritmo del recuento de células somáticas a partir del día 14 post-intervención [18]. La preservación de la capacidad antioxidante en la secreción láctea inhibe la rancidez oxidativa del perfil lipídico, protegiendo los ácidos grasos esenciales y asegurando un producto organolépticamente superior [20].
Antioxidantes Naturales en Nutrición Bovina
Los compuestos polifenólicos como taninos condensados, flavonoides y extractos botánicos de tomillo ofrecen una potente capacidad barredora de radicales libres en el rumen. Los taninos purificados actúan directamente como donadores de electrones y protones hacia las moléculas radicalarias, atrapando las ROS antes de que inicien reacciones lesivas en la mucosa digestiva [13]. Adicionalmente, la modulación ruminal inducida por taninos reduce la degradación acelerada de la proteína dietaria a amonio, mejorando la eficiencia del nitrógeno y reduciendo el costo metabólico energético de la síntesis hepática de urea [13].
| Fuente / Categoría | Mecanismo de Acción | Concentración / Dosis Recomendada | Impacto Zootécnico Medible | Cita Técnica |
|---|---|---|---|---|
| Hidróxido Selenometionina (3ª Gen) | Donador directo de selenocisteína y acumulación tisular | 0.3 ppm en materia seca total | Reducción de RCS y mantenimiento de leche en estrés por calor (+10%) | [1], [12] |
| alpha-Tocoferol (Vitamina E) | Intercepción de radicales peroxilo (ROObullet) en membranas | 500 a 1,000 UI/animal/día periparto | Disminución de retención placentaria y metritis en un 40% | [22], [31] |
| Taninos Condensados | Quelación de metales prooxidantes (Fe2+) y barrido de ROS | 0.5% a 1.5% de inclusión en MS | Reducción de marcadores MDA y optimización de digestibilidad proteica | [13] |
| Extracto de Tomillo (Timol/Carvacrol) | Inhibición de lipoperoxidación e interacción lipofílica | 100 a 250 mg/kg de alimento | Estabilización micelial y mejora de parámetros inmunológicos | [6] |
| Microminerales Orgánicos (Zn, Cu, Mn) | Cofactores metaloenzimáticos citosólicos y mitocondriales | Zn: 60 ppm; Cu: 15 ppm; Mn: 40 ppm | Retorno rápido a la ciclicidad ovárica e incremento de tasa de concepción | [23], [26] |
| Zeolita Clinoptilolita Natural | Absorción de amonio, secuestro prooxidante y amortiguador | 2% de inclusión sobre la Materia Seca | Involución uterina acelerada y reducción de PMN inflamatorios uterinos | [29] |
Impacto de los Antioxidantes en la Inmunidad y Salud Uterina
La función fagocítica y microbicida de los neutrófilos posparto depende directamente de la disponibilidad tisular de selenio y alpha-tocoferol para evitar la inmunosupresión. Al momento del parto, la subida aguda de cortisol plasmático inhibe la expresión de moléculas de adhesión celular (L-selectina) en los neutrófilos circulantes, disminuyendo drásticamente su capacidad de diapedesis hacia la cavidad uterina [28]. Si esta supresión funcional se acompaña de peroxidación lipídica interna, los neutrófilos pierden la capacidad de matar bacterias patógenas (Escherichia coli, Metritis-causing pathogens) mediante desgranulación [11].
Bioquímicamente, el acúmulo intracelular de especies reactivas de oxígeno desacopla el complejo inhibidor Ikappa B del factor de transcripción Nuclear Factor kappa B (NF-κB) en el citoplasma celular [14]. Una vez libre, el NF-κB migra libremente al núcleo, transcribiendo más de 100 genes codificantes para citoquinas altamente proinflamatorias como el Interferón-alpha (IFN-alpha), Interleucina-1beta (IL-1beta), Interleucina-6 (IL-6) y Factor de Necrosis Tumoral-alpha (TNF-α) [14]. La cascada resultante perpetúa una inflamación uterina crónica que retarda la involución de la carúncula e impide la rápida reanudación de los ciclos ováricos [29]. La administración de antioxidantes interrumpe el desacoplamiento de Ikappa B, bloqueando la sobreexpresión de citoquinas proinflamatorias y restaurando la salud reproductiva postparto [22].
Preguntas Frecuentes (FAQ)
Q: ¿Cuál es el más potente antioxidante? A: En nutrición bovina, la hidróxido selenometionina de tercera generación se considera el antioxidante celular más potente y completo, ya que participa en los tres niveles de defensa endógena mediante la síntesis de selenoproteínas [1].
Q: ¿Qué función tiene el antioxidante? A: Su función principal es ceder electrones para neutralizar especies reactivas de oxígeno y nitrógeno, evitando el daño oxidativo en membranas lipídicas, ADN y proteínas durante períodos de alto estrés metabólico [9].
Q: ¿Cuáles son 10 productos antioxidantes? A: En zootecnia destacan la hidróxido selenometionina, selenito de sodio, alpha-tocoferol (vitamina E), beta-caroteno (vitamina A), ácido ascórbico (vitamina C), taninos condensados, extracto de tomillo, zinc orgánico, cobre orgánico y manganeso orgánico [15].
Q: ¿Cuáles son los tipos de antioxidantes? A: Se clasifican en enzimáticos endógenos (superóxido dismutasa, glutatión peroxidasa, catalasa) y no enzimáticos exógenos (vitamina E, carotenoides, polifenoles y microminerales traza) [13].
Q: ¿Cómo reduce el selenio orgánico el recuento de células somáticas en vacas lecheras? A: Mantiene la viabilidad de los neutrófilos en la glándula mamaria y reduce la inflamación tisular, logrando disminuir el recuento de células somáticas lineal a partir de la segunda semana de suplementación [18].
Q: ¿Por qué la deficiencia de vitamina E y selenio provoca retención de placenta? A: Al alterarse la capacidad antioxidante, los neutrófilos pierden su quimiotaxis y capacidad de degradación enzimática de las uniones carunculares, impidiendo el desprendimiento normal de las membranas fetales [11].
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
Garros Fontinhas: Selenometionina y selenocisteína: El selenio en bovinos
-
James D. Quigley, III, Ph.D., PAS, Diplomate, ACAN: Calf & Heifer: Clave para la Rentabilidad en Lechería
-
M.V. Guillermo Cáceres: Optimización de Costos de Alimentación Porcina
-
Sergio Lopez: Aplicación de Antioxidantes en Rendering
-
Luis Alfredo Chávez Balarezo: Ca:P para Reproducción Bovina
-
Lipidos Toledo SA: Tomillo: Antioxidante natural para aves
-
Fabio L. Jaramillo: Harina de Aguacate: Digestibilidad en Cerdos
-
Miguel Ruano: Reducción de S. Enteritidis en Ponedoras
-
Sebastian Picco: Estrés oxidativo en bovinos: impacto en la producción
-
Garros Fontinhas: Estrés oxidativo: Salud de ubre y calidad de leche
-
Ángel Abuelo: Estrés Oxidativo en Bovinos: Impacto Inmunológico y Soluciones
-
Garros Fontinhas: Selenio: Mitigación del estrés por calor en vacas
-
Juan Maria Baeck: Taninos: Potente acción antioxidante y salud animal
-
Garros Fontinhas: Estrés oxidativo: Definición y causas en bovinos
-
Garros Fontinhas: Selenio: Jefe ejecutivo antioxidante en bovinos
-
Alejandro Córdova Izquierdo y A. Emmanuel Iglesias Reyes: Antioxidantes: Control de Mastitis en Lechería
-
Garros Fontinhas: Fuentes de selenio: Eficacia y absorción en bovinos
-
Garros Fontinhas: Selenio: Reduce recuento de células somáticas
-
Garros Fontinhas: Selenio periparto: Duración y beneficios
-
Adriana Maria DESCALZO: Concentrado y vitaminas antioxidantes en leche de vacas lecheras
-
Laura Martinez: Selección de antioxidantes por materia prima
-
Dra. Valeria Reinoso y Dr. Claudio Soto: Efectos de deficiencia de Vit. E y Selenio en Lechería
-
L Avendaño-Reyes: Estrés Calórico Aumenta Estrés Oxidativo en Holstein
-
A. Terevinto1, A. Saadoun2 & M.C. Cabrera11Facultad de Agronomía, UDELAR 2Facultad de Ciencias, UDELAR: Alimentación y Antioxidantes en Carne Bovina
-
Calcaterra F. et al.: SOD y Genes Diferenciales en Vacas Lecheras Posparto
-
Guillermo Mattioli: Estrés oxidativo: Impacto de minerales y vitaminas en bovinos
-
Alejandro Cerruti: Vitamina E y Electrolitos: Claves para Bovinos Estresados
-
Rodrigo Ruiz, PhD: Depresión inmunológica fisiológica en vacas lecheras
-
Juan Garzón: Efecto de la zeolita en la involución uterina y salud ovárica
-
Ing. Agr. Tobias Zamprile: Antioxidantes clave para vacas lecheras en estrés térmico
-
Julia Hamann: Vitamina E y Selenio Antioxidante
-
Lallemand Animal Nutrition, Departamento Técnico: Estrés Oxidante: Fertilidad e Inmunidad Bovina
-
Stephen LeBlanc: Antioxidantes para Inmunidad en Vacas Periparto
-
Néstor Alonso Villa-Arcila, Alejandro Ceballos-Márquez: Minerales y Vitaminas Antioxidantes Clave en Bovinos
-
Ángel Abuelo: Mayor Riesgo de EOX en Terneros durante Lactancia Artificial