Sistema Inmune en Cerdos: Fisiología, Inmunomodulación Nutricional y Estrategias Sanitarias en Granja
El sistema inmune en cerdos e inmunomodulación porcina es la red de defensas biológicas y su regulación nutricional para optimizar la respuesta sanitaria animal. Su prevención y control se implementan mediante la maduración mucosal temprana y el equilibrio de citoquinas, manteniendo umbrales de colostro de 250 g/lechón e IgG de 50 mg/mL, lo que previene síndromes enterico-respiratorios y optimiza la tasa de conversión alimenticia [1].
- Desafío Técnico y Causa Primaria: El sistema inmune en cerdos e inmunomodulación porcina enfrenta fallos por inmadurez neonatal y estrés del destete que alteran la barrera epitelial.
- Impacto Cuantitativo: Mermas en ganancia diaria de peso del 18%, incremento de la mortandad post-destete de 2% a 8% y elevación del índice de conversión alimenticia en 0,25 puntos.
- Protocolo de Intervención Verificado: Ingesta inmediata de 250 g de colostro/lechón (>50 mg/mL de IgG), adición de 1000 ppm de zinc, 0,5% de ácidos orgánicos y suplementación con beta-glucanos.
Desarrollo del Sistema Inmunitario del Lechón
El desarrollo del sistema inmunitario del lechón depende de la maduración acelerada del tejido linfoide asociado al intestino durante los primeros 28 días de vida [5].
Al nacimiento, el lechón es fisiológicamente agammaglobulinémico debido a la estructura histológica de la placenta porcina, la cual impide el paso transplacentario de inmunoglobulinas maternas [19]. Como consecuencia, la supervivencia del lechón recién nacido queda estrictamente condicionada a la adquisición de inmunidad pasiva a través del colostro durante las primeras horas posteriores al parto [29].
Histológicamente, el sistema inmunológico del lechón neonato presenta una inmadurez estructural marcada en los órganos linfoides primarios y secundarios. El timo y la médula ósea producen linfocitos T y B, pero la densidad celular y la capacidad funcional de estas poblaciones en el tejido linfoide asociado al intestino (GALT) y en el tejido linfoide asociado al aparato respiratorio (BALT) son sumamente limitadas [19]. Las placas de Peyer, el bazo y los ganglios linfáticos mesentéricos carecen de centros germinales desarrollados, lo que impide una respuesta humoral adaptativa eficaz frente a antígenos ambientales en la primera semana de vida.
Durante el periodo de lactancia, el aparato digestivo del lechón experimenta un ritmo acelerado de proliferación celular y diferenciación tisular [5]. Las vellosidades intestinales aumentan su longitud y los enterocitos desarrollan complejos de unión estrecha (tight junctions) que incluyen proteínas funcionales como ocludinas, claudinas y zonula occludens (ZO-1). Sin embargo, el evento sociodefensivo del destete —típicamente ejecutado entre los 21 y 28 días de edad— interrumpe abruptamente este proceso de maduración fisiológica [29].
El estrés multifactorial del destete engloba el aislamiento de la cerda, el cambio abrupto de una dieta líquida altamente digestible a un pienso sólido de alta matriz vegetal, el reordenamiento jerárquico y la exposición a nuevos patógenos ambientales [4]. Fisiológicamente, este estrés desencadena una hipersecreción de hormona liberadora de corticotropina (CRH), la cual incrementa los niveles de cortisol circulante y catecolaminas. El cortisol promueve la atrofia severa de las vellosidades intestinales (con reducciones de hasta un 40% en la altura vellosa) e hiperplasia de las criptas, comprometiendo la absorción de nutrientes e incrementando la permeabilidad paracelular [8].
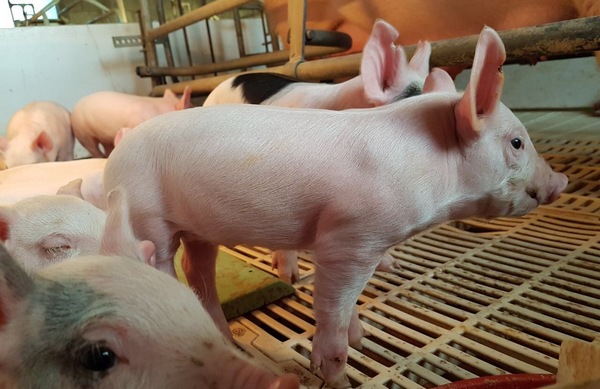
Esta brecha de inmunocompetencia —caracterizada por el declive de los anticuerpos colostrales maternos alrededor de la tercera y cuarta semana y la lentitud en la síntesis de IgA secretora (IgAs) endógena— crea una "ventana de vulnerabilidad sanitaria" [19]. Durante esta ventana, patógenos entéricos oportunistas como Escherichia coli enterotoxigénica (ETEC K88/F18), Clostridium perfringens y Salmonella typhimurium colonizan la mucosa epitelial desprotegida, desencadenando síndromes diarreicos post-destete y procesos inflamatorios sistémicos [22].
Inmunidad Innata y Adquirida en Porcicultura
La inmunidad innata porcina actúa como la primera línea celular y humoral no específica frente a desafíos bacterianos y virales [11].
Este sistema de defensa rápida se sustenta en barreras anatómicas, péptidos antimicrobianos (catelicidinas y defensinas), el sistema del complemento y una intrincada red celular compuesta por macrófagos alveolares, macrófagos tisulares, neutrófilos, células dendríticas y células asesinas naturales (Natural Killer - NK) [11]. La activación del sistema innato ocurre mediante el reconocimiento de Patrones Moleculares Asociados a Patógenos (PAMPs) a través de Receptores de Reconocimiento de Patrones (PRRs), predominantemente los Receptores Tipo Toll (TLRs).
| Componente del Sistema Inmune | Mecanismo de Acción Fisiológico | Parámetro Evaluado | Impacto en Producción Porcina | Cita Técnica |
|---|---|---|---|---|
| Línea Celular Innata (Macrófagos / Neutrófilos) | Fagocitosis rápida, estallido oxidativo y secreción de TNF-α, IL-1β e IL-6. | Índice de Fagocitosis y Nivel de Citoquinas | Respuesta inmediata no específica; consumo elevado de energía y aminoácidos. | [11] |
| Barrera Mucosa Epitelial | Expresión de tight junctions (claudinas, ZO-1) y mucus por células caliciformes. | Resistencia Trans-Epitelial (TEER) en O/cm² | Previene la translocación bacteriana de E. coli y disminuye episodios de diarrea. | [2] |
| Inmunidad Adaptativa Humoral (Linfocitos B) | Diferenciación a plasmocitos y secreción de anticuerpos específicos (IgA, IgG, IgM). | Títulos serológicos de IgA e IgG por ELISA | Neutralización específica de patógenos y toxinas; efectividad en vacunación. | [19] |
| Inmunidad Adaptativa Celular (Linfocitos T) | Activación de linfocitos T CD4+ (colaboradores) y CD8+ (citotóxicos) mediada por MHC. | Proporción CD4+/CD8+ en sangre periférica | Depuración de patógenos intracelulares como PRRSV y Mycoplasma hyopneumoniae. | [1] |
| Inmunidad Pasiva Colostral | Absorción entérica de IgG y M-IgA maternas vía enterocitos neonatales vacuolados. | Niveles plasmáticos de IgG (>10 mg/mL al día 2) | Reducción de la mortalidad pre-destete de un 15% a menos del 5%. | [29] |
| Inmunidad Entrenada (Trained Immunity) | Reprogramación epigenética y metabólica de células mieloides innatas vía β-glucanos. | Producción de ROS e IL-10 tras re-estímulo | Respuesta reactiva acelerada frente a coinfecciones virales y bacterianas. | [27] |
Cuando un patógeno compromete la barrera mucosa, los TLRs epiteliales y dendríticos (como TLR-2 para bacterias Gram-positivas y TLR-4 para lipopolisacáridos de Gram-negativas) desencadenan la cascada de señalización intracelular del factor transcripcional NF-κB [1]. Esto induce la liberación masiva de citoquinas proinflamatorias (TNF-α, IL-1β, IL-6) y quimiocinas. Aunque este proceso es indispensable para frenar la invasión bacteriana, una activación proinflamatoria desmedida resulta metabólicamente destructiva [15].
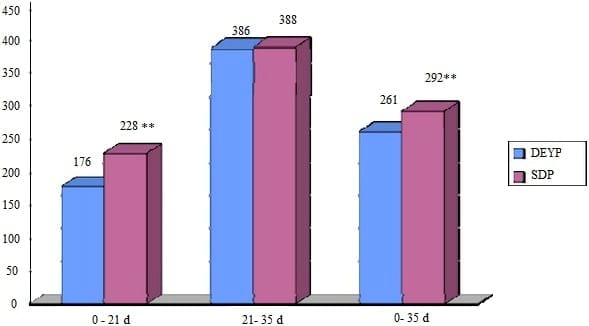
El "costo metabólico" de la inflamación sistémica redirige los nutrientes destinados al depósito de músculo (proteína magra) hacia la síntesis hepática de proteínas de fase aguda (proteína C reactiva, haptoglobina, amiloide A sérico) y la termogénesis [21]. La pérdida de masa muscular y la anorexia inducida por citoquinas provocan una merma considerable en la ganancia diaria de peso (GDP) y deterioran la conversión alimenticia [26].
Por su parte, la inmunidad adaptativa se caracteriza por su especificidad y memoria inmunológica [11]. Los linfocitos T (CD4+ colaboradores y CD8+ citotóxicos) procesan antígenos presentados por el Complejo Mayor de Histocompatibilidad (MHC-I y MHC-II). Los linfocitos T helper 1 (Th1) estimulan la respuesta celular indispensable contra virus como el Síndrome Respiratorio y Reproductivo Porcino (PRRSV), mientras que la vía Th2 favorece la activación de linfocitos B para la producción masiva de inmunoglobulinas [1].
"La inmunonutrición busca optimizar el sistema inmune con un costo bajo, es decir, minimizando la inversión del lechón en tiempo, energía y nutrientes para reaccionar a los desafíos. Una respuesta inmune específica, como la generada por vacunas, es más económica que una respuesta innata constante, que consume muchos recursos." — Dr. Luiz Felipe Caron, Universidad Federal de Paraná [7]
Un avance conceptual determinante en la porcicultura moderna es el concepto de Inmunidad Entrenada (Trained Immunity) [27]. Tradicionalmente, se asumía que la memoria inmunológica era exclusiva del sistema adaptativo. Sin embargo, investigaciones recientes demuestran que las células progenitoras mieloides del sistema innato (monocitos y macrófagos) pueden ser "entrenadas" mediante modificaciones epigenéticas (metilación de histonas H3K4me3) y reprogramación metabólica (incremento de la glucólisis aeróbica) [27].
La exposición a ligandos específicos como los β-1,3/1,6-glucanos purificados de Saccharomyces cerevisiae induce este estado de alerta biológica en las células mieloides [27]. Ante una segunda infección por un patógeno no relacionado, estas células entrenadas responden con mayor rapidez y eficiencia en la eliminación bacteriana, reduciendo la severidad del cuadro clínico sin la latencia temporal exigida por la inmunidad adaptativa [27].
Transferencia de Inmunidad Maternal y Calidad del Colostro
La transferencia colostral masiva en las primeras 12 horas de vida constituye el único vehículo de inmunoglobulinas maternas hacia el lechón agammaglobulinémico [29].
La placenta de la cerda, de tipo epiteliocorial difusa, posee seis capas tisulares que separan mecánicamente la circulación sanguínea materna de la fetal. Esta barrera histológica impide de forma absoluta el paso de inmunoglobulinas (IgG, IgA, IgM) hacia los fetos en desarrollo durante la gestación [19]. Como consecuencia, la concentración plasmática de IgG en el lechón al nacer es prácticamente nula (<0,5 mg/mL) [29].
| Componente Colostral / Parámetro | Rango Óptimo en Cerda | Impacto Fisiológico en el Lechón Neonato | Consecuencia del Defecto | Cita Técnica |
|---|---|---|---|---|
| Concentración de IgG | >50 a 80 mg/mL | Otorga inmunidad humoral sistémica inmediata contra sepsis. | Niveles plasmáticos en lechón <10 mg/mL; alta mortalidad. | [29] |
| Concentración de IgA secretora | >10 a 15 mg/mL | Recubre el epitelio intestinal; previene la adhesión bacteriana. | Vulnerabilidad extrema a colibacilosis e infecciones virales. | [19] |
| Grados Brix Refractométricos | >24% a 28% Brix | Indicador indirecto correlacionado con la densidad proteica e IgG. | Medición <20% Brix indica colostro hipoproteico e insuficiente. | [29] |
| Volumen Ingerido por Lechón | Minimum 250 g en 12 h | Cobertura inmunológica e ingreso termogénico de energía. | Hipotermia, hipoglucemia y aplastamiento neonatal. | [29] |
| Cierre Intestinal (Gut Closure) | Primeras 12 a 24 horas | Ventana temporal de endocitosis no selectiva de macromoléculas. | Pérdida irreversible de la capacidad de absorción de IgG. | [29] |
El colostro no solo aporta elementos inmunológicos, sino también factores de crecimiento cruciales como el Factor de Crecimiento Insulínico tipo 1 (IGF-1), Factor de Crecimiento Transformante beta (TGF-β), citoquinas, leucocitos maternos viables (linfocitos T y B, macrófagos) y nutrientes energéticos de alta disponibilidad (lípidos y lactosa) [29].
La absorción de las inmunoglobulinas colostrales ocurre en los enterocitos neonatales maduros mediante un proceso de endocitosis no selectiva [29]. Los enterocitos capturan macromoléculas luminales y las transfieren a través de vacuolas hacia la circulación linfática y sanguínea. Sin embargo, esta capacidad de absorción masiva es transitoria y está regulada por el fenómeno del "cierre intestinal" (gut closure) [29].
El cierre intestinal se inicia gradualmente tras el nacimiento y se completa de forma irreversible entre las 24 y 36 horas de vida [29]. A las 6 horas post-parto, la eficiencia de absorción de IgG cae un 50%, y a las 12 horas la permeabilidad macromolecular se ha reducido drásticamente. Por este motivo, el consumo inmediato de un volumen adecuado de colostro es la variable de manejo más crítica en la maternidad porcina. Un lechón requiere ingerir un umbral mínimo de 250 gramos de colostro durante las primeras 12 a 16 horas post-nacimiento para asegurar niveles plasmáticos de IgG superiores a 10 mg/mL y garantizar su supervivencia termorreguladora e inmunológica [29].
La nutrición estratégica de la cerda en el último tercio de gestación (fase de hipertrofia mamaria y síntesis colostral entre los días 90 y 114 de gestación) influye directamente en la masa y calidad del colostro [5]. La incorporación de fuentes de fibra prebiótica soluble e insoluble, β-glucanos purificados, ácidos grasos omega-3 (EPA/DHA) y fitoquímicos en la dieta peri-parto estimula la síntesis de IgG mamaria y eleva los grados Brix del colostro, optimizando la protección pasiva de toda la camada [5].
Inmunomoduladores Nutricionales y Aditivos Funcionales
Los inmunomoduladores nutricionales modulan selectivamente las citoquinas inflamatorias y optimizan la eficacia de las vacunas sin desviar energía del crecimiento [4].
Frente a las restricciones globales y la prohibición del uso de Antibióticos Promotores de Crecimiento (APC) y niveles terapéuticos de Óxido de Zinc (ZnO) en el pienso medicado, la industria porcina ha migrado decididamente hacia el uso de aditivos inmunomoduladores funcionales [4]. Estas sustancias nutricionales no buscan suprimir la respuesta inmune ni provocar una estimulación descontrolada, sino regular o "modular" la cascada inmunológica para lograr un estado de resiliencia biológica frente a desafíos infecciosos [13].
Entre las tecnologías inmunomoduladoras de mayor sustento científico en porcicultura destacan:
1. Alpha-Monolaurina y Monoglicéridos de Cadena Media (1-MCM)
Los monoglicéridos de ácidos grasos de cadena media, en particular la alpha-monolaurina (C12), poseen una estructura molecular esterificada en la posición C-1 del glicerol [9]. Esta configuración les confiere propiedades de acción independiente del pH del tracto digestivo. La alpha-monolaurina actúa disolviendo la envoltura lipídica de virus encapsulados (como PRRSV, Influenza Porcina y Peste Porcina Africana) y alterando la membrana celular de bacterias Gram-positivas (Streptococcus suis, Clostridium perfringens) [9]. A nivel inmunológico, la monolaurina reduce la transcripción de interleucinas proinflamatorias (IL-1β, IL-6), atenúa el estrés oxidativo tisular y potencia los títulos serológicos de anticuerpos post-vacunación [9].
2. Alcaloides Isoquinolínicos (AIQs)
Extraídos de plantas como Sanguinaria canadensis, los alcaloides isoquinolínicos actúan inhibiendo directamente la fosforilación de la proteína IκB, bloqueando la translocación del factor nuclear NF-κB al núcleo celular [1]. Al frenar la sobreactivación de NF-κB, los AIQs reducen drásticamente la inflamación intestinal inducida por patógenos o factores antinutricionales de la soja [1].
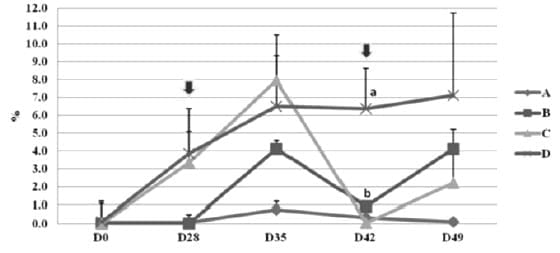
En lechones infectados experimentalmente con PRRSV, los AIQs mitigan la inmunosupresión viral, restauran la barrera epitelial entérica y promueven una expansión más robusta de células mononucleares de sangre periférica (CMSP), mejorando la seroconversión vacunal [1].
"Los alcaloides isoquinolínicos actúan como moduladores inmunes al inhibir el factor NF-κB, crucial para sostener la respuesta inflamatoria. En el contexto del PRRS, los AIQs contrarrestan la inmunosupresión viral, permitiendo que el sistema inmune del lechón responda de manera más robusta a la vacunación." — Dra. Jessika Van Leeuwen, Investigadora en Salud Animal [1]
3. Plasma Deshidratado por Atomización (Spray-Dried Plasma - SDPP)
El plasma porcino deshidratado es una mezcla compleja de inmunoglobulinas funcionales (IgG), glicoproteínas, factores de crecimiento y péptidos biológicamente activos [2]. Su inclusión en dietas de iniciación (2% a 5%) neutraliza patógenos en el lumen intestinal mediante exclusión competitiva y aglutinación, evitando su adhesión al epitelio [2]. Esto preserva la integridad estructural de las vellosidades, reduce la inflamación de la mucosa y redirige la energía y los aminoácidos (lisina, treonina, metionina) desde el mantenimiento inmune hacia la deposición muscular magra [2], [18].
4. Paredes Celulares de Levadura (MOS y β-Glucanos)
Las fracciones purificadas de pared celular de Saccharomyces cerevisiae aportan Manano-Oligosacáridos (MOS) y β-1,3/1,6-glucanos [12]. Los MOS actúan como análogos de receptores epiteliales, uniéndose a las fimbrias tipo 1 de bacterias enteropatógenas (E. coli, Salmonella) y facilitando su expulsión mecánica en las heces [12]. Por su parte, los β-glucanos interactúan con los receptores Dectina-1 presentes en la superficie de macrófagos y células dendríticas, estimulando la fagocitosis, la secreción de IgA secretora y activando el proceso de inmunidad entrenada [22], [27].
5. Zinc Orgánico y Probióticos Esporulados
El zinc es un cofactor enzimático esencial para la síntesis de ADN, la proliferación celular y el mantenimiento de las uniones estrechas entéricas [17]. La utilización de quelatos de zinc orgánico (asociado a aminoácidos o metionina) incrementa la biodisponibilidad tisular frente al óxido de zinc inorgánico, fortaleciendo la barrera intestinal y la actividad citotóxica de los linfocitos NK [17]. La combinación sinérgica con probióticos esporulados (Bacillus subtilis, Bacillus licheniformis) favorece la exclusión competitiva en la mucosa entérica [3].
Relación Entre Microbiota Intestinal y Sistema Inmune Porcino
La interacción metabólica entre la microbiota luminal y el tejido MALT entérico regula la expresión de uniones estrechas y la síntesis de IgA secretora [10].
El tracto gastrointestinal porcino no solo representa la superficie de mayor absorción de nutrientes, sino que alberga más del 70% de las células inmunocompetentes de todo el organismo, siendo considerado con justicia el "centro operativo del sistema inmune" porcino [10]. Esta barrera inmunológica comprende un ecosistema tripartito en equilibrio dinámico: la capa mucosa con la microbiota commensal en el lumen, la monocapa epitelial con sus complejos proteicos de uniones estrechas (tight junctions) y el tejido linfoide asociado al intestino (GALT) en la lámina propia [10].

Una microbiota salutogénica o en estado de "eubiosis" —dominada por géneros bacterianos como Lactobacillus, Bifidobacterium, Ruminococcus y Faecalibacterium prausnitzii— ejerce una influencia inmunomoduladora decisiva a través de la fermentación de fibra eugónica no almidonada [3]. Esta fermentación genera altas concentraciones de Ácidos Grasos de Cadena Corta (AGCC), principalmente acetato, propionato y butirato [3].
El butirato actúa como el combustible metabólico preferencial para la colonocitosis y la regeneración del epitelio entérico [3]. A nivel inmunológico, el butirato inhibe las enzimas histona desacetilasas (HDAC), favoreciendo la diferenciación de linfocitos T virgen hacia células T reguladoras (Treg) moduladas por el factor de transcripción Foxp3 [3]. Las células Treg secretan interleucina 10 (IL-10) y factor de crecimiento transformante beta (TGF-β), mediadores clave para limitar reacciones inflamatorias no deseadas, tolerar antígenos alimentarios inocuos e inducir la clase inmunoglobulínica hacia la producción masiva de IgA secretora (IgAs) [24].
La IgA secretora es transportada activamente a través de las células epiteliales hacia el mucus luminal mediante el receptor polimérico de inmunoglobulinas (pIgR) [19]. Una vez en el lumen, la IgAs realiza la "exclusión inmune": se une específicamente a los epitopos de patógenos bacterianos y virales, aglutinándolos y neutralizando sus adhesinas sin activar la cascada del complemento, lo que evita el daño tisular secundario [19].
Por el contrario, factores de distorsión como la hiperproteína indigerida en la dieta, el estrés de manejo o el uso desmedido de antibióticos inducen disbiosis entérica [4]. La disbiosis promueve la proliferación de bacterias proteolíticas y Gram-negativas que liberan Lipopolisacáridos (LPS) y toxinas luminales. Los LPS rompen la arquitectura de las uniones estrechas, abriendo la vía paracelular e iniciando la translocación bacteriana hacia los ganglios mesentéricos y la circulación portal [8]. Este fenómeno de "intestino permeable" (leaky gut) desencadena endotoxemia sistémica, inflamación crónica de bajo grado y una severa reasignación de nutrientes desde el crecimiento hacia el soporte inmunitario [8].
Impacto de las Micotoxinas en la Respuesta Inmunometabólica
Las micotoxinas como la deoxinivalenol y las fumonisinas inducen inmunosupresión profunda al inhibir la síntesis proteica y destruir la arquitectura entérica [14].
La contaminación de los cereales (maíz, trigo, cebada) por metabolitos fúngicos secundarios representa una de las amenazas invisibles más graves para el sistema inmunológico porcino [14]. El cerdo es considerado la especie doméstica de mayor sensibilidad metabólica y tisular frente a las micotoxinas, sufriendo inmunosupresión incluso ante concentraciones reducidas que no generan sintomatología clínica evidente [20], [25].
| Micotoxina Primaria | Hongos Productores | Mecanismo Inmunotóxico Específico | Parámetro Sanitario/Productivo Alterado | Cita Técnica |
|---|---|---|---|---|
| Deoxinivalenol (DON / Vomitoxina) | Fusarium graminearum | Inhibición de la síntesis proteica por unión a la subunidad 60S ribosomal; daño epitelial entérico. | Alteración de tight junctions; translocación de E. coli; reducción severa de GDP. | [14] |
| Aflatoxina B1 (AFB1) | Aspergillus flavus / parasiticus | Metabolización hepática a epóxido 8,9-AFB1; aductos de ADN e inhibición de síntesis proteica. | Disminución drástica de albúmina e IgG sérica; supresión de la fagocitosis. | [34] |
| Fumonicina B1 (FB1) | Fusarium verticillioides | Inhibición de la ceramida sintasa; alteración de la relación esfinganina/esfingosina (Sa/So). | Alteración de macrófagos alveolares; fallo en aclaramiento del virus de PRRS. | [20] |
| Toxin T-2 / HT-2 | Fusarium sporotrichioides | Toxicidad directa sobre células de rápida división (linfocitos y células de criptas entéricas). | Atrofia de placas de Peyer y bazo; leucopenia severa y necrosis mucosa. | [25] |
| Zearalenona (ZEA) | Fusarium graminearum | Agonismo estrogénico; disrupción endocrina y alteración de citoquinas en tracto reproductivo. | Edema vulvar, anestro, reabsorción embrionaria y baja calidad colostral. | [20] |
El mecanismo inmunotóxico de la deoxinivalenol (DON) radica en su capacidad para inducir "estrés ribotóxico", activando proteíno-quinasas de respuesta a estrés (MAPKs) [14]. Esto detiene de forma inmediata la traducción proteica en células de alta tasa de recambio, como los enterocitos y los linfocitos activados. A nivel entérico, DON erosiona las vellosidades intestinales y destruye selectivamente las claudinas y ocludinas, desencadenando translocación patógena masiva [14].
Por su parte, la Aflatoxina B1 compromete gravemente la función hepática y la síntesis de proteínas plasmáticas [34]. La exposición prolongada a Aflatoxina provoca una caída drástica en la producción de anticuerpos séricos (IgG e IgM) y deprime la capacidad fagocítica de los neutrófilos, dejando al animal indefenso frente a infecciones bacterianas secundarias [34].
Un impacto crítico de las micotoxinas en granjas comerciales es la falla de la eficacia vacunal [14], [25]. La presencia simultánea de DON, Fumoniscina B1 y T-2 en el pienso impide que el sistema inmune adaptativo monte una respuesta celular o humoral adecuada tras la administración de vacunas clave (como PRRS, Mycoplasma hyopneumoniae, PCV2 o Erisipela) [20]. Los animales vacunados alimentados con dietas contaminadas presentan títulos de anticuerpos muy por debajo del umbral protector, sufriendo brotes infecciosos severos a pesar de cumplir formalmente con el plan profiláctico de la granja [14], [25].
La prevención efectiva exige la implementación de un programa integral de gestión de riesgo de micotoxinas [28]. Esto incluye el monitoreo analítico continuo de la materia prima (HPLC / LC-MS/MS) y el uso sistemático de secuestrantes biotecnológicos de amplio espectro que combinen organoaluminosilicatos activados con enzimas de biotransformación (capaces de degradar enzimáticamente el anillo epóxido de los tricotecenos) y componentes de pared celular de levadura [12], [28].
Puntos Críticos de Control en la Gestión Inmunosanitaria y Nutricional Porcina
Para garantizar una inmunomodulación efectiva y mantener la bioseguridad operacional, la granja porcina debe gestionar una matriz de Puntos Críticos de Control (PCC) estructurada por fases productivas:
| PCC / Etapa | Riesgo Fisiológico e Inmunológico | Parámetro Operativo Crítico | Estrategia Inmunomoduladora y Sanitaria | Cita Técnica |
|---|---|---|---|---|
| 1. Gestación Tardía (Día 90-110) | Calidad insuficiente de inmunoglobulinas colostrales y baja masa mamaria. | Brix colostral objetivo >24% en refractómetro | Suplementación con β-glucanos, fibra prebiótica soluble y ácidos grasos omega-3. | [5] |
| 2. Periodo Peri-parto (Día 110-114) | Estrés térmico/metabólico; estreñimiento cerda; prolapso o hipogalaxia. | Mantenimiento de T° corporal <39,2 °C | Ácidos orgánicos al 0,5% en pienso; laxantes osmóticos y suministro libre de agua. | [4] |
| 3. Lactancia Temprana (0-24 h) | Falla en transferencia pasiva por cierre intestinal precoz del lechón. | Ingesta mínima de 250 g de colostro/lechón | Colostrado asistido; aseguramiento de ingestión en las primeras 6 horas post-parto. | [29] |
| 4. Lactancia Tardía (21-28 d) | Caída de anticuerpos maternos; brecha inmunitaria pré-destete. | Consumo de Creep Feed >150 g/lechón | Creep feed altamente digestible con plasma deshidratado al 3-5% y nucleótidos. | [2] |
| 5. Destete (Día 0-3 post-destete) | Atrofia de vellosidades; hipersecreción de cortisol e hiperpermeabilidad. | Mantener T° ambiental en lechonera a 28-30 °C | Inclusión de alpha-monolaurina, zinc orgánico (1000 ppm) y electrolitos en agua. | [9] |
| 6. Pre-iniciador (Día 3-14 post-destete) | Colonización entérica por E. coli ETEC K88/F18 y disbiosis. | Nivel proteico total en dieta <18,5% | Uso de ácidos orgánicos de cadena corta/media y alcaloides isoquinolínicos. | [1] |
| 7. Iniciador (Día 14-35 post-destete) | Estrés oxidativo; sobrecrecimiento bacteriano; fallas en respuesta vacunal. | Índice de Conversión Alimenticia <1,35 | Incorporación de probióticos esporulados y paredes celulares de levadura (MOS). | [12] |
| 8. Transición Crecimiento (Semana 8-10) | Inmunosupresión por micotoxinas (DON, ZEA) en cereales de engorda. | DON <0,9 ppm / Aflatoxina <0,02 ppm | Adición continua de secuestrantes enzimáticos de micotoxinas de amplio espectro. | [14] |
| 9. Desarrollo y Engorda (Semana 12-20) | Coinfecciones respiratorias (PRRSV, M. hyo) e inflamación sistémica. | Ganancia Diaria de Peso >900 g/día | Ajuste de perfil de aminoácidos (Met, Thr, Trp) e inmunocastración con Improvac. | [33] |
| 10. Desafío Sanitario / Vacunación | Inflamación excesiva desmesurada e inhibición del consumo voluntario. | Proteína C Reactiva sérica | Modulación con fitoquímicos antiinflamatorios y mantenimiento de electrolitos. | [6] |
Preguntas Frecuentes (FAQ)
Q: ¿Qué significa la regla 3-3-3 para los cerdos? A: La regla 3-3-3 indica la duración promedio de la gestación en la cerda (3 meses, 3 semanas y 3 días, es decir, 114 días), período clave para planificar los protocolos de inmunomodulación preparto y vacunación matrilineal [5].
Q: ¿Qué animal tiene el sistema inmune más fuerte? A: En ganadería intensiva, el cerdo posee un sistema inmune mucosal e intestinal sumamente especializado y reactivo (tejido GALT), aunque al nacer es 100% dependiente del colostro maternal debido a su placentación epiteliocorial infranqueable [19].
Q: ¿Cuáles son los 4 tipos de inmunidad? A: Los cuatro tipos principales son la inmunidad innata (no específica), la inmunidad adaptativa humoral (anticuerpos B), la inmunidad adaptativa celular (linfocitos T) y la inmunidad pasiva (adquirida mediante la ingesta colostral materno-filial) [11].
Q: ¿Qué es la inmunización en cerdos? A: Es el proceso mediante el cual se estimula la memoria inmunológica del cerdo a través de vacunas o inmunomoduladores para generar anticuerpos específicos sin provocar reacciones inflamatorias desmesuradas que mermen la conversión alimenticia [13].
Q: ¿Cómo afecta el estrés del destete a la función de barrera intestinal en lechones? A: El estrés eleva el cortisol e interleucinas inflamatorias, desestructurando las proteínas de uniones estrechas (occludinas y claudinas), lo que genera atrofia villosa, hiperpermeabilidad intestinal y diarreas por translocación de E. coli [2].
Q: ¿Cuál es el rol de la alpha-monolaurina en la inmunidad porcina? A: La alpha-monolaurina altera la envoltura lipídica de virus encapsulados y membranas bacterianas Gram-positivas, reduciendo la transcripción de citoquinas proinflamatorias y potenciando la respuesta serológica post-vacunal [9].
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
Jessika Van Leeuwen: Alcaloides isoquinolínicos mejoran inmunidad contra PRRS
-
Luis Rangel: Plasma spray dried mejora la salud intestinal en lechones
-
Nathalia Maria Del Pilar Correa Valencia: Modulación del Microbioma con Probióticos
-
Joaquin Brufau: Inmunomoduladores para Cerdos
-
Hector Herrera: Inmunonutrición porcina: Estrategias por etapa
-
Ton Kramer: Optimización inmunológica en cerdos de alta productividad
-
Dr. Luiz Felipe Caron: Inmunonutrición: Clave para la salud intestinal del lechón
-
Jose Soto, Ph.D.: Inmunonutrición en cerdos: Impacto de la dieta en la salud
-
Dr. Luiz Felipe Caron: Intestino: El 'segundo cerebro' y centro inmune del cerdo
-
Javier Polo: Tipos de inmunidad en cerdos: innata y adaptativa
-
Antonio Garcia Estefan: Paredes de levadura: inmunomodulación en cerdos
-
Eddy Rolando De Paz Véliz: Inmunomodulación: Optimización de la respuesta inmune porcina
-
Douglas Zaviezo: Micotoxinas y Respuesta Inmune en Cerdos
-
Eddy Rolando De Paz Véliz: Salud porcina: más allá de la ausencia de enfermedad
-
Eddy Rolando De Paz Véliz: Inmunomoduladores: reducción de mortalidad y mejora de conversión
-
Nathalia María del Pilar Correa: Zinc y probióticos: Inmunomoduladores en nutrición porcina
-
Departamento Técnico, APC México: Plasma porcino: Inmunomodulación y eliminación viral en cerdos
-
Joaquim Querol Sanchis: Sistema Inmune de Mucosas Porcinas: Primera Línea de Defensa
-
Dra. Sofia Noemi Chulze: Micotoxinas y respuesta inmune en cerdos
-
Javier Polo, J Campbell, Mª Carmen Rodríguez, Luis F. S. Rangel y Joe Crenshaw: Nutrición, Salud e Inmunología en Porcinos
-
M.V Jorge Labala: Aditivos para la Inmunidad Intestinal en Lechones
-
M.V. Jorge Labala: Estrategias clave para la salud intestinal y el sistema inmune del lechón
-
M.V. Lucas Piroca: Función del sistema inmune mucosal porcino
-
Carlos Alberto da Rocha Rosa: Micotoxinas: Inmunosupresión y Vulnerabilidad en Cerdos
-
Manuel Toledo Castillo, Sara Crespo Vicente y Jose Herrera Martin: Inmunoestimulación y crecimiento porcino
-
Fabio Catunda: Trained Immunity in Pigs: Enhancing First-Line Defense
-
Dra. Santa María Mendoza: Optimización del sistema inmune de la mucosa porcina
-
Dra. Susana Mendoza Elvira y Dr. Abel Ciprian Carrasco: Inmunidad Neonatal y Destete: Clave en Salud Respiratoria
-
Verónica Lisboa Santos: Inmunomoduladores: Estrategia para fortalecer defensa porcina
-
Fernando Pérez García: Inmunomoduladores en CRP: Levaduras, Algas, Nucleótidos, MOS
-
Jose Fernando Estrada: Beneficios de la Inmunocastración en Cerdos
-
Evandro Poleze: Impacto sistémico de Improvac: Desde la granja hasta el consumidor
-
Prof. Mallmann: Aflatoxina: Inmunosupresión y reducción de proteínas en cerdos
-
Horácio Santiago Rostagno: Inmunocastración y Nutrición: Requerimientos para Machos Enteros


Estados Unidos de América


México


España