Marcadores Moleculares y Selección Genómica en Ganado Bovino Lechero: Guía de Aplicación Zootécnica
El uso de marcadores moleculares en selección genética bovina es la identificación de variaciones genómicas para evaluar reproductores lecheros. Su optimización se implementa mediante genotipificación con chips de SNP, manteniendo umbrales de confiabilidad del 70% al 85% y densidades de 50.000 a 800.000 marcadores, lo que previene la consanguinidad y optimiza el rendimiento de sólidos lácteos [19].
- Desafío Técnico y Causa Primaria: Los marcadores moleculares en selección genética bovina corrigen la baja precisión de evaluación causada por la heredabilidad faltante del hato.
- Impacto Cuantitativo: Aumento de 15% a 25% en el progreso genético anual por reducción del intervalo generacional y aumento de 0.3% en sólidos útiles de leche.
- Protocolo de Intervención Verificado: Genotipificación al nacimiento con paneles de 50K a 800K SNPs y evaluación con modelos BLUP genómico o RKHS.
Clasificación de Marcadores Moleculares SNPs y Microsatélites Bovinos
Los marcadores moleculares se dividen en polimorfismos de nucleótido único (SNPs), microsatélites (SSR) y polimorfismos de longitud de fragmentos de restricción (RFLP), alcanzando densidades superiores a 800.000 loci en paneles comerciales bovinos [14].
La evolución de la genética molecular en la producción de ganado vacuno lechero ha transitado desde los marcadores bioquímicos de primera generación hacia las plataformas de genotipificación masiva de alto rendimiento. En las primeras etapas, el análisis de grupos sanguíneos e isozimas ofrecía una ventana limitada para la identificación de individuos, con una cobertura genómica muy baja y una susceptibilidad considerable a la influencia del estado fisiológico del animal. La llegada de los marcadores moleculares directos sobre el ácido desoxirribonucleico (ADN) transformó radicalmente este panorama, permitiendo evaluar la variación genética directamente en cualquier célula nucleada (sangre, folículos pilosos, semen o cartílago auricular) independientemente de la edad o el ambiente en que se desarrolle el bovino [15].
Dentro de los marcadores moleculares de DNA, los microsatélites o repeticiones de secuencias simples (SSR, Simple Sequence Repeats) se clasificaron históricamente como marcadores de Tipo II. Estas regiones no codificantes del genoma están compuestas por repeticiones en tándem de uno a seis pares de bases (por ejemplo, repeticiones dinucleotídicas CA/GT). Debido a su elevada tasa de mutación por deslizamiento de la ADN polimerasa durante la replicación, los microsatélites poseen un altísimo polimorfismo y codominancia, lo que los convirtió en la herramienta estándar internacional para la verificación de paternidad y el control de filiación en los registros genealógicos bovinos [14]. Sin embargo, su distribución heterogénea en el genoma y la dificultad para automatizar su lectura masiva en paralelo limitaron su utilidad en la evaluación genómica holística de caracteres cuantitativos complejos.
Por su parte, los polimorfismos de nucleótido único (SNPs, Single Nucleotide Polymorphisms) representan la forma más abundante de variación genética en el genoma de Bos taurus y Bos indicus. Un SNP ocurre cuando un solo nucleótido (Adenina, Timina, Citosina o Guanina) difiere entre cromosomas homólogos o entre individuos de una población. Con la disponibilidad de la secuencia de referencia del genoma bovino, se han identificado millones de SNPs distribuidos uniformemente a lo largo de los 29 autosomas y los cromosomas sexuales. Los chips de SNPs (matices de microarreglos de ADN) permiten genotipar desde 10.000 hasta más de 770.000 SNPs en una sola reacción por muestra, optimizando la captura del desequilibrio de ligamiento en toda la población lechera [19].
| Categoría de Marcador | Tipo Genómico | Densidad Genómica | Aplicación Zootécnica Principal | Ventaja Operativa | Cita Técnica |
|---|---|---|---|---|---|
| Microsatélites (SSR) | Tipo II (No codificante) | Baja (15 - 30 loci por panel) | Pruebas de paternidad y filiación | Alta heterocigosidad y polimorfismo por locus | [14] |
| SNPs de Baja Densidad | Tipo I y II | Media (10.000 - 30.000 SNPs) | Tamizado inicial de terneras en granja | Bajo costo unitario por muestra evaluada | [19] |
| SNPs de Alta Densidad (HD) | Tipo I y II | Alta (50.000 - 770.000+ SNPs) | Evaluación genómica de toros e imputación | Captura máxima de desequilibrio de ligamiento | [19] |
| RFLP / PCR-RFLP | Tipo I (Codificante) | Muy baja (Loci específicos) | Detección de alelos específicos (ej. DGAT1) | Diagnóstico directo de mutaciones causales | [15] |
Genotipificación Bovina y Huella de ADN en Ganado Lechero
La genotipificación bovina mediante huella de ADN garantiza un 99.9% de certeza en la verificación de paternidad y el control de consanguinidad en planteles lecheros elite [23].
El establecimiento de la identidad genética e individual de cada bovino dentro de la explotación láctea es el cimiento operativo sobre el cual se estructuran las decisiones de selección y cruzamiento. Los errores de asignación de paternidad en las granjas comerciales oscilan históricamente entre el 10% y el 20% cuando se basan exclusivamente en registros de campo manuales o inseminaciones múltiples en celos consecutivos. Un error en la genealogía reduce de manera drástica la heredabilidad efectiva y la tasa de progreso genético, al introducir ruido blanco en la estimación de las Diferencias Esperadas de Progenie (DEP) o Valores Genéticos Estimados (EBV) [23].
Mediante el uso de la huella de ADN (DNA fingerprinting), los laboratorios de genotipificación procesan la muestra bilógica de la ternera recién nacida y comparan su genotipo con la base de datos de toros dadores de semen. La resolución genómica actual basada en paneles de SNPs permite no solo confirmar la paternidad con una probabilidad superior al 99.99%, sino también identificar de manera unívoca la presencia de tara genéticas recesivas indeseables (como la Deficiencia de Adhesión Leucocitaria Bovina [BLAD], el Síndrome de Inmunodeficiencia Herreditaria Malformación Vertebral Causal [CVM], o los haplotipos de fertilidad Holstein HH1, HH2, HH3, HH4 y HH5) [19].
Asimismo, la caracterización de la consanguinidad o endogamia genómica (calculada mediante la proporción de corridas de homocigosidad o ROH, Runs of Homozygosity) supera las limitaciones de la consanguinidad calculada por genealogía tradicional. El monitoreo de ROH identifica la acumulación real de alelos homocigóticos idénticos por descendencia a lo largo de los cromosomas, permitiendo a los consultores en reproducción evitar acoplamientos entre reproductores que compartan fragmentos de ADN peligrosos, protegiendo así la fertilidad, el vigor híbrido y la supervivencia embrionaria en el hato [23].
Puntos Críticos de Control en la Implementación Genómica de Granjas Lecheras
Para garantizar el retorno financiero de la inversión en pruebas moleculares y prevenir fallas en el procesamiento de muestras, es imperativo establecer un protocolo de gestión con Puntos Críticos de Control (PCC) cuantitativos en la unidad productiva láctea.
| Paso | Etapa del Protocolo | Punto Crítico de Control (PCC) | Parámetro Cuantitativo Objetivo | Acción Correctora ante Desviación | Referencia |
|---|---|---|---|---|---|
| 1 | Identificación de la ternera | Colocación de caravana/muesca al nacimiento | < 24 horas post-parto | Recortar caravana y auditar registro de parto | [23] |
| 2 | Trazabilidad del pedigrí | Registro de semen utilizado en la madre | 100% de coincidencias en libro | Auditar inventario del termo de nitrógeno | [23] |
| 3 | Toma de muestra biológica | Cartílago auricular (TSU) o pelo con bulbo | > 31 mg de tejido o > 20 bulbos | Repetir muestreo con nuevo kit esterilizado | [23] |
| 4 | Almacenamiento y cadena de frío | Temperatura de conservación del TSU | 4 °C a 20 °C (sin congelado extremo) | Desechar tubos con desecación o moho visible | [23] |
| 5 | Envíos al laboratorio de ADN | Tiempo transcurrido hasta despacho | < 14 días post-muestreo | Agilizar transporte refrigerado expreso | [23] |
| 6 | Control de calidad de extracción | Concentración y pureza de ADN (A260/280) | Ratio A260/A280 entre 1.8 y 2.0 | Re-extracción por precipitación alcohólica | [22] |
| 7 | Tasa de llamada de genotipado | Call rate de SNPs por muestra | > 98.5% de SNPs leídos correctamente | Repetir corrido en placa de microarreglo | [19] |
| 8 | Verificación de filiación | Validación de paternidad genómica | < 0.1% de inconsistencias alélicas | Re-analizar progenitores o declarar padre desconocido | [23] |
| 9 | Imputación genómica | Conversión de paneles 10K/50K a HD | Precisión de imputación > 97% | Filtrar SNPs con baja frecuencia del alelo menor (MAF) | [19] |
| 10 | Selección y descarte técnico | Clasificación por índice genómico (TPI/NM$) | Top 30% recría retenida / Bot 15% venta | Re-evaluar umbral de descarte según costo de crianza | [16] |
Polimorfismos Genéticos Asociados a la Composición y Calidad de Leche
El polimorfismo K232A en el gen DGAT1 y las variantes de beta-caseína A1/A2 determinan variaciones de hasta un 0.8% en el contenido de grasa láctea y la digestibilidad industrial [13].
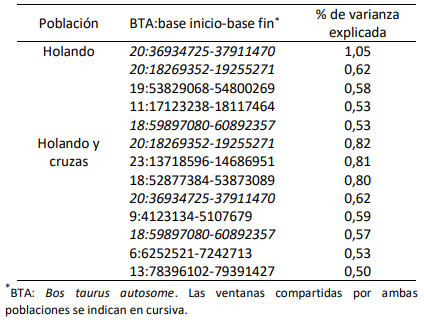
La composición físico-química de la leche bovina —medida en porcentaje de grasa, proteína total, caseínas, lactosa y minerales— presenta una variabilidad genética considerable que puede ser moldeada de manera acelerada mediante la selección asistida por marcadores (MAS). Uno de los loci genéticos mejor caracterizados en ganado vacuno lechero es el gen de la Acil-CoA:diacilglicerol aciltransferasa 1 (DGAT1), ubicado en el cromosoma bovino 14 (BTA14). Este gen codifica la enzima clave que cataliza el paso final en la síntesis de triacilgliceroles en el epitelio mamario [27].
El polimorfismo dinucleotídico de sustitución no sinónima en el exón 8 del gen DGAT1 genera una mutación de aminoácidos en la posición 232, donde la lisina es reemplazada por alanina (variante K232A). Las vacas portadoras del alelo K (Lisina) muestran un incremento estadísticamente significativo en el porcentaje de grasa láctea y en el rinde quesero, acompañado por una reducción en la producción total de volumen de leche y porcentaje de proteína en comparación con las vacas homocigotas para el alelo A (Alanina) [27]. La frecuencia de estos alelos varía ampliamente entre razas: mientras que en el ganado Jersey el alelo K se encuentra fijado en proporciones elevadas, en la raza Holstein-Friesian existe un polimorfismo equilibrado que permite orientar la selección hacia el aumento de sólidos totales según las exigencias del pago por calidad de la industria procesadora local [21].
"La selección orientada hacia el alelo K del gen DGAT1 incrementa la concentración de triacilgliceroles en la glándula mamaria, permitiendo elevar la densidad de grasa en leche de manera sostenida sin comprometer la salud metabólica de la vaca." — Andrés M. Carvajal, Especialista en Calidad Láctea [27]
Por otro lado, la fracción proteica de la leche está dominada por las caseínas (alphas1, alphas2, beta y kappa-caseína), las cuales representan aproximadamente el 80% del nitrógeno total de la leche. El gen de la beta-caseína (CSN2), situado en el BTA6, exhibe múltiples variantes alélicas, de las cuales las formas A1 y A2 son las más relevantes desde la perspectiva nutricional y zootécnica. La diferencia estructural entre la beta-caseína A1 y A2 radica en un cambio puntual en el aminoácido 67 de la cadena polipeptídica de 209 aminoácidos: la variante A1 posee una Histidina en dicha posición, mientras que la variante A2 conserva la Prolina original [13].
Durante la digestión gastrointestinal humana de la variante A1, la división enzimática por acción de la elastasa pancreática libera el heptapéptido beta-casomorfina-7 (BCM-7), el cual ha sido asociado con molestias digestivas, tránsito intestinal alterado y respuestas inflamatorias en personas sensibles. Por el contrario, la presencia de Prolina en la variante A2 previene la escisión proteolítica en el aminoácido 67, evitando la formación de BCM-7 [13]. Debido a la creciente demanda del mercado por "Leche A2A2", los programas de selección genética bovina emplean la genotipificación de toros y vacas para eliminar progresivamente el alelo A1, transformando rebaños enteros a genotipo homocigoto A2A2 mediante el uso exclusivo de sementales testeados [13].
"Implementar un programa de selección genómica estricto para multiplicar la variante A2A2 de beta-caseína permite valorizar la producción primaria en la usina láctea, diferenciando el producto en el anaquel de consumo masivo con un sobreprecio de mercado sostenido." — MVZ. Nacho Ortiz Espinosa, Consultor en Selección Genética [13]
Marcadores Moleculares en la Selección Genómica de Toros y Vacas Holstein
La selección genómica en ganado Holstein incrementa la confiabilidad del valor genético estimado en terneras jóvenes a un 75%, reduciendo el intervalo generacional de 5 años a menos de 2 años [16].
La integración de la información de cientos de miles de marcadores SNPs dentro de los esquemas de evaluación genética animal dio origen a la Selección Genómica (GS). Antes de la llegada de la genómica, la selección de toros dadores de semen dependía de las pruebas de progenie tradicionales. Un toro joven debía ser apareado con decenas de vacas, y se requería esperar la gestación, el nacimiento, el crecimiento y la primera lactancia de sus hijas para obtener una estimación precisa de su mérito genético (con una confiabilidad del 75-80% obtenida recién cuando el reproductor alcanzaba los 5 a 6 años de vida) [18].
Con la implementación de la Selección Genómica basada en el Modelo Lineal Mixto Genómico (GBLUP) o en métodos no paramétricos de aprendizaje estadístico como Reproducing Kernel Hilbert Spaces (RKHS), se extrae el ADN de una ternera al nacer y se predice su Valor Genómico Estimado (GEBV) con una confiabilidad inicial de entre 65% y 75% [25]. Esto permite tomar decisiones instantáneas de descarte o multiplicación embrionaria (mediante aspiración folicular y producción in vitro de embriones, OPU-PIVE) en hembras de pocos meses de edad, acortando dramáticamente el intervalo generacional y duplicando la tasa de progreso genético por año para rasgos de baja y alta heredabilidad [16].
"En lugar de asumir un modelo estrictamente aditivo infinitesimal que ignora las redes de interacción genio-genio, la adopción de métodos no paramétricos basados en kernels permite capturar interacciones epistáticas complejas, optimizando la predicción del mérito genético real del reproductor." — Dr. Daniel Gianola, Catedrático de Genética Cuantitativa en la Universidad de Wisconsin-Madison [2]
La precisión de la Selección Genómica radica en la magnitud y caracterización de la "población de referencia", constituida por miles de toros probados con hijas y vacas genotipadas con registros fenotípicos de alta calidad. Para rasgos metabólicos complejos o de moderada a baja heredabilidad, como la eficiencia de conversión alimenticia (medida como Consumo Residual de Alimento o RFI), la fertilidad de las hijas (tasa de preñez de las hijas, DPR) y la longevidad productiva (vida productiva, PL), los modelos genómicos tradicionales de marcadores individuales (GWAS) están siendo superados por modelos poliómicos. Estos últimos integran genómica, transcriptómica de glándula mamaria y datos metabolómicos, permitiendo capturar el fenómeno de epistasis y la interacción genotipo-ambiente (G×E) [5].
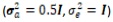
Locus SOCS2 y Genes Asociados al Rendimiento Productivo Lácteo
Los polimorfismos en el gen SOCS2 modulan la respuesta a la hormona de crecimiento e influyen directamente en la resistencia mastítica y la producción de leche en vacas Holstein [22].
Dentro del conjunto de genes candidatos reguladores de la fisiología mamaria, los supresores de la señalización de citoocinas (Suppressor of Cytokine Signaling, SOCS) juegan un papel regulador determinante en la cascada metabólica de la lactogénesis y la respuesta inmune mamaria. Específicamente, el gen SOCS2 actúa como un regulador de retroalimentación negativa en la vía de señalización del receptor del eje Hormona de Crecimiento / Somatotropina (GH/IGF-1) y Prolactina [22].
La caracterización de los polimorfismos del gen SOCS2 en vacas de la raza Holstein mediante amplificación por PCR y espectrometría de masas (MALDI-TOF) ha revelado variantes de nucleótido único en sus regiones promotoras e intrones que alteran la afinidad de unión de factores de transcripción. Los animales que expresan alelos específicos de SOCS2 exhiben una mayor sensibilidad tisular a la somatotropina bovina endógena, lo que se traduce en un incremento en el volumen diario de leche pico sin desencadenar un balance energético negativo severo [22].
Simultáneamente, la región genómica de SOCS2 está estrechamente acoplada a la regulación de la respuesta inflamatoria frente a patógenos causantes de mastitis (como Staphylococcus aureus y Streptococcus uberis). Las vacas con genotipos favorables muestran una disminución cuantitativa en el recuento de células somáticas (RCS) en leche, reduciendo la incidencia de mastitis clínica y subclínica y preservando la integridad de las uniones estrechas de los alvéolos mamarios durante la lactancia media y tardía [22].
Por otra parte, la detección temprana de la gestación en vacas lecheras de alta producción representa otro campo donde los biomarcadores genéticos y transcriptómicos han generado un avance zootécnico sustancial. La expresión de genes estimulados por el interferón tau (Interferon-Stimulated Genes, ISG), tales como ISG15 y MX2, medidos en leucocitos de sangre periférica mediante RT-qPCR en el día 18 post-inseminación artificial, permite diagnosticar la presencia de un embrión viable días antes de que la ecografía transrectal clásica sea aplicable, optimizando la re-sincronización de hembras vacías y reduciendo el intervalo entre partos [28].
| Gen Candidato | Locus / Cromosoma | Mecanismo Fisiológico / Bioquímico | Efecto Fenotípico en Lechería | Cita Técnica |
|---|---|---|---|---|
| SOCS2 | BTA17 | Regulación negativa de la señal GH/IGF-1 y citoocinas | Reducción de células somáticas y mayor pico lácteo | [22] |
| DGAT1 | BTA14 | Esterificación de ácidos grasos a triacilgliceroles | Elevación de % de grasa y rendimiento de sólidos | [27] |
| CSN2 (beta-caseína) | BTA6 | Codificación de la cadena de beta-caseína | Eliminación del péptido BCM-7 (Lácteos A2A2) | [13] |
| SCD | BTA26 | Desaturación de enlaces simples en C16:0 y C18:0 | Mayor proporción de ácidos grasos insaturados (MUFA) | [17] |
| FASN | BTA19 | Síntesis de novo de ácidos grasos de cadena corta/media | Modificación del perfil lipídico de la grasa láctea | [17] |
| ISG15 / MX2 | Multicromosómico | Transcripción inducida por Interferón-tau embrionario | Diagnóstico precoz de preñez al día 18 post-IA | [28] |
Aplicación de Marcadores Moleculares para el Perfil de Ácidos Grasos y Caseínas
La identificación de SNPs en los genes FASN y SCD altera la proporción de ácidos grasos saturados e insaturados en la grasa láctea, optimizando el perfil nutricional del producto final [17].
La demanda de los consumidores industriales y finales por alimentos funcionales ha impulsado el desarrollo de programas de selección genómica orientados al perfil nutricional de la grasa láctea. La grasa de la leche bovina está compuesta en un 95-98% por triacilgliceroles, los cuales contienen una mezcla compleja de ácidos grasos saturados (SFA), monoinsaturados (MUFA) y poliinsaturados (PUFA). Los ácidos grasos de cadena corta y media (C4:0 a C14:0) y una porción de C16:0 son sintetizados de novo en la glándula mamaria, mientras que los ácidos grasos de cadena larga (C18:0 en adelante) provienen del lípido circulante absorbido en el digestivo [17].
El gen de la Estearoil-CoA Desaturasa (SCD), localizado en el cromosoma 26, codifica la enzima responsable de introducir un doble enlace cis-9 en los ácidos grasos saturados de cadena corta y larga, convirtiendo, por ejemplo, el ácido esteárico (C18:0) en ácido oleico (C18:1 cis-9) y el ácido palmítico (C16:0) en ácido palmitoleico (C16:1). La presencia del SNP C878T en el exón 5 del gen SCD provoca la sustitución del aminoácido valina por alanina en el sitio activo de la enzima [17].
Las vacas con genotipo homocigoto para el alelo Alanina muestran un índice de desaturación significativamente superior en la leche, generando un perfil graso con menor punto de fusión, mayor fluidez y un impacto nutricional más saludable para la dieta humana. Paralelamente, el gen de la Ácido Graso Sintasa (FASN), ubicado en el BTA19, presenta variantes alélicas en sus dominios catalíticos de tioesterasa que modulan la proporción de ácidos grasos saturados de cadena media, permitiendo la selección asistida de reproductores con mérito genético directo para la producción de mantequillas más untables o leche con perfiles lipídicos cardioprotectores [17].
En términos de eficiencia alimentaria asociada a la síntesis lipídica y proteica, la combinación de la evaluación de marcadores moleculares con la caracterización de isotopos estables (como la abundancia natural de 15N en proteínas plasmáticas, 15NPP) ofrece una herramienta complementaria para identificar terneras con menor consumo residual de alimento (RFI eficiente) en condiciones pastoriles. Esta sinergia entre marcadores biológicos y paneles de SNPs acelerará la transformación de los tambos comerciales hacia sistemas de alta precisión y sostenibilidad ambiental [9].
Preguntas Frecuentes (FAQ)
Q: ¿Cuál es el animal que comparte más ADN con el humano y qué implicancia tiene en la genómica bovina? A: El chimpancé comparte aproximadamente un 98.8% de ADN con el humano; sin embargo, en ganadería, el secuenciamiento del genoma bovino (con un 90% de sintenia con el genoma humano) permite transferir herramientas bioinformáticas para mapear marcadores de producción láctea [1].
Q: ¿Cómo se clasifican los marcadores moleculares en la selección genética bovina? A: Se clasifican en tipo I (asociados a regiones codificantes como SNPs en genes DGAT1 o SOCS2) y tipo II (regiones no codificantes hipervariables como microsatélites SSR), utilizados en pruebas de filiación y evaluación genómica [14].
Q: ¿Cuáles son los 3 tipos de genética aplicados al mejoramiento del ganado lechero? A: Los tres tipos son la genética mendeliana (caracteres monogénicos cualitativos), la genética cuantitativa (modelos aditivos BLUP para producción) y la genética molecular/genómica (uso de chips SNP y selección asistida por marcadores) [18].
Q: ¿Cuáles son las 4 moléculas de ADN que constituyen los polimorfismos de SNP bovinos? A: Las cuatro bases nitrogenadas son Adenina (A), Timina (T), Citosina (C) y Guanina (G). Las mutaciones puntuales de un solo nucleótido constituyen los polimorfismos de nucleótido único (SNP) empleados en las evaluaciones genómicas [19].
Q: ¿Cómo seleccionar genéticamente bovinos lecheros para producir leche con variante A2A2? A: Se implementa genotipificación por PCR en sangre o pelo para identificar reproductores portadores del alelo A2 en el gen de beta-caseína, eliminando toros A1A1 y A1A2 del programa de acoplamientos [13].
Q: ¿Cuál es el costo promedio y beneficio económico de genotipar terneras lecheras? A: La prueba genómica ronda los 15 a 30 USD por ternera y permite tomar decisiones tempranas de descarte del 15% inferior en valor genómico, ahorrando más de $600 USD por costo de crianza ineficiente [26].
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
Dr. Daniel Gianola: Características complejas en genética cuantitativa
-
Dr. Daniel Gianola: Insuficiencia del modelo aditivo en genética compleja
-
Dr. Daniel Gianola: Captura de interacciones no aditivas con kernels
-
Dr. Daniel Gianola: Efectividad de métodos no paramétricos en plantas
-
Dr. Daniel Gianola: Predicción poliómica en enfermedades complejas
-
Javier Dupuy: Manejo de Pasturas Megatérmicas C4: Claves para la Productividad
-
Julián Bartolomé: Estrés calórico reduce tasa de preñez en lechería 50%
-
Leda Gobbo: Estresse Térmico: Mortalidade e Qualidade do Ovo em Postura
-
Milano G.D., Bakker M.L., Spetter M.J., Quintana S., Giustina S., Hoffer L.W., Herrera R., Comerio A. y Nadin L.: 15NPP como marcador de consumo residual en terneras Angus
-
Motter MM., Corva P. M., Krause M. F. y Soria L.A.: Calpastatina y Terneza en Angus y Brahman
-
López Valiente S., Rodríguez A.M., Domingo Montes A., Vara Solana, G. y Maresca S.: Confiabilidad DEP PanAm: Peso al Nacer Hereford
-
Bonamy M., Giovambattista G. y Munilla S.: SEM vs MTM en Selección Genética Bovina
-
MVZ. Nacho Ortiz Espinosa: Selección Genética A2A2 en Bovinos Lecheros
-
Brenda Sosa Reyes: Microsatélites en Mejoramiento Genético Bovino
-
Jorge Quiroz-Valiente: Polimorfismo molecular: Mejora genética en ganado lechero
-
Alvaro Garcia: Evolución de la nutrición y selección genética en lechería
-
Karla Inostroza y Néstor Sepúlveda: SNPs en SCD y FASN para selección genética bovina
-
Dr. Daniel Gianola: Paradigmas de estudio en genética cuantitativa
-
MC Hugo O. Toledo Alvarado, PhD Felipe de J. Ruíz López.: Chips SNP para detección genética en bovinos
-
Raschia M.A., Maizon D.O. y Poli M.A.: Loci Genéticos DG Bovinos Lecheros
-
Alvaro Garcia: Importancia de la selección genómica en producción de grasa y proteína
-
Leyva CJC: Genotipificación de polimorfismos SOCS en Holstein
-
Miguel Adriano Novoa Bravo y Eleonora Bernal Pinilla: Beneficios de la Genotipificación Bovina
-
Jaime Piñeira: Polimorfismos y Grasa Intramuscular en Bovinos Clavel de Carne
-
Dr. Daniel Gianola: Predicción genética en la era genómica
-
Alvaro Garcia: Beneficios de las pruebas genómicas en terneras lecheras
-
Andrés M. Carvajal: Gen DGAT1 K232A y composición de leche
-
Lorenti, S.N., Madoz, L.V., Rearte, R., Quintero-Rodriguez, L., Migliorisi,A.L., Jaureguiberry, M., Gabler, C., Drillich, M., de la Sota, R.L.: ISG para preñez temprana en lechería
-
Nancy Plaza Castro: Biotecnología Reproductiva: Clave para Rentabilidad Ganadera
-
Eduardo Frank: Bajo impacto del mejoramiento animal en producción
-
Andrés Rogberg Muñoz: Selección por ADN en ganado de carne: Desafíos y Aplicaciones
-
Andrés Rogberg Muñoz: Marcadores moleculares: Crecimiento en Hereford y resultados
-
Hernando Bentancur: Marcadores moleculares: Calidad de carne en Angus y Uruguay
-
Arcesio Salamanca Carreño: Identificación y registros en mejoramiento genético
-
Oscar Martinez: Recursos para el estudio de beta caseína en zootecnia

Eficacia de MYCO-AD en disminuir la presencia de Aflatoxina M1 en la leche
La transición energética en la recuperación sostenible de América Latina y el Caribe
Cultivos de invierno de cereal y leguminosa para optimizar la producción de proteína de forraje ecológico en explotaciones de vacuno de leche