Glucosa y Precursores Gluconeogénicos en Nutrición Bovina: Estrategias para Optimizar el Balance Energético
El uso de precursores gluconeogénicos en nutrición de vacas lecheras es la administración estratégica de sustratos gluconeogénicos metabólicos como propilenglicol o propionatos para sintetizar glucosa hepática. Se implementa mediante suplementación oral en la ración, manteniendo umbrales de 250 a 500 g/vaca/día y glucemia sobre 3.0 mmol/L, lo que previene la cetosis subclínica y optimiza la producción láctea [19].
- Desafío Técnico y Causa Primaria: Los precursores gluconeogénicos en nutrición de vacas lecheras corrigen el déficit de glucosa hepática originado por el alto consumo lácteo.
- Impacto Cuantitativo: Reducción del 45% en la incidencia de cetosis subclínica, disminución de betahidroxibutirato a <1.2 mmol/L y ganancia de 1.2 a 2.5 kg/vaca/día de leche.
- Protocolo de Intervención Verificado: Administrar propilenglicol a dosis de 300 a 500 g/vaca/día o propionato de calcio a 400 g/vaca/día desde 21 días preparto hasta 21 días posparto.
Metabolismo de la Glucosa y Gluconeogénesis Hepática en Rumiantes
La gluconeogénesis hepática sintetiza más del 85% de la glucosa requerida por el bovino rumiante debido a la fermentación microbiana casi total de los azúcares dietéticos en el rumen [26]. A diferencia de los monogástricos, donde la glucosa se absorbe directamente en el epitelio intestinal, el digestato ruminal convierte los carbohidratos solubles e insolubles en Ácidos Grasos Volátiles (AGV): acetato, propionato y butyrate [13]. En vacas de alta producción, el parénquima hepático debe transformar de forma ininterrumpida estos sustratos carbonados en glucosa libre para sostener la osmolalidad sanguínea, el metabolismo celular y la secreción láctea [28].
Rutas Bioquímicas del Propionato y Precursores Ruminales
El propionato ruminal constituye el precursor gluconeogénico cuantitativamente más relevante, aportando entre el 60% y el 74% del carbono total para la síntesis de glucosa en el hepatocito [13]. Tras su absorción por difusión pasiva a través del epitelio ruminal, el propionato ingresa a la vena porta y se transloca a la matriz mitocondrial del hepatocito. Allí es transformado en propionil-CoA mediante la enzima propionil-CoA sintetasa, requiriendo ATP y coenzima A [25].
Posteriormente, la propionil-CoA carboxilasa (enzima dependiente de biotina) convierte el propionil-CoA en D-metilmalonil-CoA, el cual sufre una racemización a L-metilmalonil-CoA. La enzima metilmalonil-CoA mutasa, dependiente de la coenzima cobalamina (Vitamina B12), isomeriza este intermediario en succinil-CoA, permitiendo su entrada directa al Ciclo de Krebs (TCA) [17]. Dentro de la matriz mitocondrial, el succinil-CoA se convierte en fumarato y malato; este último sale al citosol donde se oxida a oxaloacetato (OAA). La fosfoenolpiruvato carboxiquinasa (PEPCK) citosólica descarboxila y fosforila el OAA para formar fosfoenolpiruvato (PEP), canalizando el flujo de carbono en sentido inverso a la glicólisis hasta generar Glucosa-6-Fosfato y, finalmente, glucosa libre mediante la glucosa-6-fosfatasa [25].
Demandas de Glucosa en la Glándula Mamaria y Tejidos Periféricos
La glándula mamaria en lactación absorbe hasta el 80% de la glucosa sistémica disponible para la síntesis de lactosa a través de transportadores independientes de insulina [26]. Una vaca lechera que produce 40 kg de leche al día requiere aproximadamente 3.0 kg de glucosa sanguínea cada 24 horas, destinando más de 2.0 kg únicamente a la glándula mamaria para la osmolaridad del volumen lácteo y la generación de NADPH en la vía de las pentosas fosfato para la síntesis de grasa de la leche [20].
Cuando el aporte de propionato ruminal es insuficiente, el hígado recluta fuentes alternativas de carbono gluconeogénico:
- Lactato: Procedente del metabolismo anaeróbico muscular y del reciclaje ruminal (Ciclo de Cori), aportando entre 10% y 15% de la glucosa sistémica.
- Glicerol: Liberado durante la lipólisis del tejido adiposo, el cual ingresa en la vía gluconeogénica a nivel de dihidroxiacetona fosfato tras ser fosforilado por la glicerol quinasa hepática.
- Aminoácidos Glucogénicos: Principalmente alanina y glutamina, movilizados desde el tejido muscular esquelético, cuyo esqueleto carbonado entra al Ciclo de Krebs como alfa-cetoglutarato, piruvato u oxaloacetato [17].
Uso de Sustratos y Precursores Gluconeogénicos en Ganado de Leche
La adición de sustratos gluconeogénicos exógenos eleva los niveles de glucosa sanguínea en un rango de 15% a 30% dentro de las primeras horas posteriores a su administración [30]. Estos aditivos sobrepasan la fermentación ruminal o se metabolizan parcialmente en el rumen sin generar la carga de acidez volátil asociada a los concentrados almidonados, previniendo estados de Acidosis Ruminal Subaguda (SARA) [19].
| Precursor Gluconeogénico | Dosis Recomendada | Ruta Metabólica Hepática | Eficiencia Energética | Impacto en Glucemia | Referencia |
|---|---|---|---|---|---|
| Propilenglicol (1,2-Propanadiol) | 250 - 500 g/vaca/día | Conversión a Lactato y Piruvato ? Oxaloacetato | Alta (Evita pérdida por metanogénesis) | Incremento de 0.5 a 1.2 mmol/L en 2 horas | [19], [31] |
| Propionato de Calcio | 300 - 500 g/vaca/día | Conversión a Propionil-CoA ? Succinil-CoA | Moderada-Alta (Aporta Calcio disponible) | Sostenido por 6 - 8 horas post-consumo | [19] |
| Glicerol Purificado (>99%) | 250 - 400 g/vaca/día | Phosphorylación a Glicerol-3-P ? Dihidroxiacetona-P | Alta (Ingreso directo en triosas fosfato) | Elevación moderada sin alteración del consumo | [19] |
| Sustratos Complejos (Lipofeed / Lifi) | 60 - 150 g/vaca/día | Sinergia Propionatos / Propanadiol en parénquima | Muy Alta (Bajo volumen de inclusión) | Mantenimiento de glucemia > 3.2 mmol/L | [6], [15] |
Caracterización y Farmacocinética de Propilenglicol y Propionatos
El propilenglicol (1,2-propanadiol) se absorbe rápidamente por la pared ruminal o ingresa al hígado para convertirse en lactato y piruvato, aumentando la glucemia sistémica [25]. Una fracción de aproximadamente 40-50% del propilenglicol dosificado por vía oral escapa a la fermentación microbiana y se absorbe de forma intacta en el omaso e intestino delgado, alcanzando el torrente circulatorio portal sin requerir energía de transporte activo [30]. En el citosol hepático, la enzima alcohol deshidrogenasa transforma el propilenglicol en lactaldehído, que posteriormente se oxida a lactato por la aldehído deshidrogenasa, ingresando sin desvío a la vía del piruvato/oxaloacetato.
Por otro lado, las sales de propionato (propionato de calcio o de sodio) aportan moléculas completas de propionato libre al disociarse en el medio acuoso del rumen o del abomaso [19]. El propionato de calcio ofrece la ventaja técnica de suministrar calcio iónico altamente soluble (aproximadamente 18-21% de Ca en peso elemental), favoreciendo la prevención simultánea de la hipocalcemia subclínica en vacas recién paridas.
Integración de Glicerol y Sustratos Complejos en la Ración
El glicerol purificado actúa como un sustrato glucogénico de rápida asimilación que ingresa a la gluconeogénesis a nivel de la triosa fosfato en el parénquima hepático [19]. Al ser absorbido directamente a través del epitelio ruminal por difusión facilitada, el glicerol no depende de la activación por propionil-CoA, reduciendo el gasto de equivalentes de ATP mitocondriales. Sin embargo, en dosis superiores a 500 g/día, las bacterias ruminales pueden fermentar una parte a propionato y acetato, alterando levemente el pH ruminal si la ración base es baja en fibra detergente neutro (FDN).
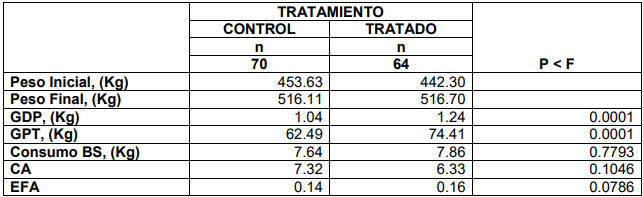
"La adición de sustratos gluconeogénicos como Lipofeed en la dieta complementaria de toretes en pastoreo y vacas lecheras mejora el aporte de energía metabolizable, estimulando el crecimiento, la eficiencia de conversión y reduciendo la movilización lipídica." — MC. Fernando Livas Calderón, Universidad Nacional Autónoma de México [15]
Prevención del Balance Energético Negativo y Cetosis mediante Glucosa
El balance energético negativo periparto desencadena la movilización masiva de ácidos grasos no esterificados desde el tejido adiposo hacia el hígado [32]. Durante las semanas -3 a +3 respecto al parto (periodo de transición), la vaca lechera sufre una caída fisiológica en el Consumo de Materia Seca (CMS) de entre 20% y 30%, coincidiendo con la máxima demanda de nutrientes para la síntesis de colostro y leche de pico [23].
Fisiopatología de la Mobilización Lipídica e Infiltración Hepática
La acumulación de triacilgliceroles en el hígado supera la capacidad de secreción de VLDL, resultando en esteatosis hepática y depresión de la gluconeogénesis [28]. Cuando la glucemia desciende por debajo de 2.5 mmol/L (45 mg/dL), la concentración de insulina en plasma cae de forma drástica, estimulando la lipasa sensible a hormonas en el tejido adiposo. Esto libera Ácidos Grasos No Esterificados (AGNE) a la circulación sistémica en concentraciones superiores a 0.6 mEq/L [32].
Al llegar al hígado, los AGNE entran a la mitocondria transportados por la carnitina palmitoiltransferasa-1 (CPT-1) para sufrir beta-oxidación y generar Acetil-CoA [17]. Para que el Acetil-CoA ingrese al Ciclo de Krebs y se condense en citrato, se requiere una provisión constante de oxaloacetato (OAA). Sin embargo, bajo un estado de gluconeogénesis severa, todo el OAA disponible es desviado hacia la producción de glucosa. El exceso de Acetil-CoA mitocondrial no condensado se canaliza obligatoriamente hacia la cetogénesis, formando acetoacetato, el cual se reduce reversiblemente a Betahidroxibutirato (BHBA) por la betahidroxibutirato deshidrogenasa [18].
Ácidos Grasos No Esterificados (AGNE) en Sangre (>0.7 mEq/L)
Beta-Oxidación Mitocondrial en Hepatocito
Exceso de Acetil-CoA
Falta de Oxaloacetato (OAA) CPT-1 Saturada / Déficit VLDL
v v
Ruta Cetogénica Acumulación de Triglicéridos
v v
Betahidroxibutirato (BHBA) Esteatosis Hepática
(>1.2 mmol/L) (Hígado Graso)
Matriz de Puntos Críticos de Control en el Periodo de Transición
El control sistemático de los puntos críticos nutricionales previene picos de betahidroxibutirato superiores al umbral patológico de 1.2 mmol/L en vacas frescas [18]. La aplicación estricta de una matriz operacional en la finca asegura la homeostasis glucídica y metabólica.
| Fase / Punto Crítico | Parámetro Operativo | Objetivo Nutricional / Bioquímico | Intervención Práctica / Dosis | Cita Técnica |
|---|---|---|---|---|
| PCC 1: Condición Corporal al Secado | Escala 1 a 5 | 3.0 a 3.25 al momento del secado | Ajustar densidad energética para evitar vacas sobrecondicionadas (>3.5) | [23] |
| PCC 2: Azúcares Simples Preparto | % de Materia Seca | 3.5% a 5.0% de sacarosa/melaza en la ración | Estimular el desarrollo papilar ruminal e incrementar absorción de VFA | [21] |
| PCC 3: Suplementación Gluconeogénica | Preparto (-21 días) | Aporte preventivo de precursores de glucosa | Administrar 60 g/día de compuesto glucogénico o 300 g/día propilenglicol | [24], [31] |
| PCC 4: Control del CMS Periparto | kg MS/vaca/día | Minimizar la caída de consumo preparto (>12 kg MS) | Garantizar espacio de comedero (>80 cm/vaca) y dietas altamente palatables | [23] |
| PCC 5: Drenching Post-Parto Inmediato | Dosis única al parto | Rehidratación y estímulo gluconeogénico masivo | Suministrar drench de 500 g propionato de Ca + 300 g glicerol en 30 L agua | [19] |
| PCC 6: Monitoreo de BHBA Sanguíneo | mmol/L en sangre | < 1.2 mmol/L en primeros 21 días post-parto | Muestreo semanal con cetómetro portátil en vacas de 3 a 14 Días En Leche (DEL) | [18] |
| PCC 7: Protección Hepática y Donantes | g/vaca/día | Facilitar exportación de VLDL desde el hígado | Adicionar Colina Protegida (15 g/d) y Metionina Protegida (10-20 g/d) | [17], [29] |
| PCC 8: Carbohidratos No Fibrosos (CNF) | % de Materia Seca | 36% a 40% de CNF en ración de vacas frescas | Mantener almidón fermentable en equilibrio con FDN frena la cetosis | [21] |
| PCC 9: Control de Calcio e Hipocalcemia | % Ca y Mg en TMR | Ca iónico > 1.1 mmol/L en plasma fresco | Uso de sales aniónicas en preparto para optimizar sensibilidad a PTH | [19] |
| PCC 10: Integridad de la Pared Ruminal | pH ruminal medio | pH > 6.0 sostenido durante las 24 horas | Inclusión de búferes (Bicarbonato 0.75-1.0%) junto con sustratos glucogénicos | [21] |
Impacto de la Suplementación Gluconeogénica en la Producción de Leche
La suplementación con precursores glucogénicos incrementa la producción diaria de leche entre 1.0 y 2.5 kg por vaca al elevar el flujo de glucosa mamaria [29].
Modulación de la Síntesis de Lactosa y Volumen de Leche
La lactosa sintetizada en el aparato de Golgi de las células epiteliales mamarias actúa como el principal determinante osmótico del volumen total de leche secretado [20]. La enzima lactosa sintetasa es un complejo heterodimérico formado por la galactosiltransferasa y la alfa-lactalbúmina (esta última estimulada por la prolactina y las hormonas lactogénicas). El sustrato limitante para esta reacción es la UDP-galactosa derivada directamente de la glucosa citosólica [26].
Al aumentar el suministro de sustratos gluconeogénicos, sube la concentración de glucosa portal y disminuye la supresión de la síntesis de alfa-lactalbúmina. Esto impulsa una mayor conversión de UDP-galactosa y glucosa en lactosa, atrayendo agua por gradiente osmótico hacia la luz alveolar de la glándula mamaria, resultando en un incremento cuantitativo inmediato en el volumen del ordeño [20].
Regulación Energética y Eficiencia Reproductiva en Pastoreo
El aporte suplementario de energía en vacas en pastoreo reduce el intervalo parto-primer servicio al restablecer la pulsatilidad de la hormona luteinizante [2]. En sistemas pastoriles donde los bovinos caminan largas distancias para cosechar el forraje, el gasto energético de locomoción consume una fracción elevada de la energía metabolizable disponible [2].
Como detalla el Dr. Maximiano Gabriel Macias en la investigación audiovisual de Engormix, la adición de precursores energéticos en sistemas de pastoreo compensa las pérdidas por transporte y mantiene el ciclo reproductivo:
"En vacas que están en pastoreo va a ayudar muchísimo la utilización de este producto porque va a aportar una energía extra para que estas vacas que andan caminando en el campo pastoreando tengan la energía requerida para el trabajo reproductivo, mejorando la eficiencia y obteniendo más terneros al año." — Dr. Maximiano Gabriel Macias, Especialista en Nutrición Bovina [2]
Glucosa Sobrepasante y Nutrición de Precisión Más Allá del Rumen
Las tecnologías de nutrición de sobrepaso permiten direccionar nutrientes gluconeogénicos y moduladores endocrinos hacia el intestino delgado sin alteración microbiana ruminal [14].
Sensibilidad a la Insulina y Ahorro Peripheral de Glucosa
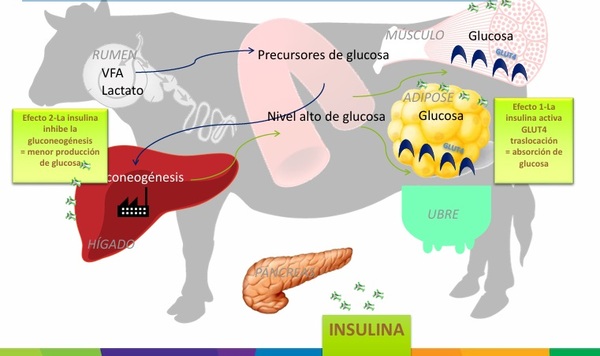
La resistencia periférica a la insulina en tejidos muscular y adiposo durante el inicio de la lactancia prioriza el flujo de glucosa hacia la glándula mamaria [14]. Al reducir los picos excesivos de insulina posprandial mediante tecnologías como NexUlin, se mitiga el secuestro de glucosa por parte del músculo esquelético y los adipocitos, reservando el monosacárido para los transportadores GLUT1 y GLUT8 no dependientes de insulina situados en el epitelio mamario [14].
Esta modulación de la respuesta insulínica previene desacoplamientos metabólicos y permite que el hígado mantenga tasas altas de gluconeogénesis sin la retroalimentación negativa que ejerce la hiperinsulinemia sobre la expresión génica de la fosfoenolpiruvato carboxiquinasa (PEPCK) [14].
Programación Fetal y Expresión Génica Gluconeogénica
La nutrición materna enriquecida con donantes de metilos estimula la maquinaria gluconeogénica del ternero recién nacido mediante modificaciones epigenéticas hepáticas [34]. La adición de metionina protegida (ej. Smartamine® M) o colina en la dieta de la vaca en el último tercio de gestación incrementa la metilación del ADN en los promotores de genes clave como PCK1 (que codifica para PEPCK) y G6PC (glucosa-6-fosfatasa) en el hígado del feto [34]. Al nacer, las terneras de madres suplementadas muestran un encendido enzimático más rápido para metabolizar el lactato y el glicerol del colostro, logrando niveles superiores de glucemia natal y una mejor respuesta adaptativa al estrés neonatal [29], [34].
Evaluación Costo-Beneficio de Optimizadores de Energía en la Ración Bovina
La sustitución parcial de grasas pasantes por optimizadores gluconeogénicos reduce el costo diario de la ración manteniendo la densidad energética metabolizable [1].
Sustitución Estratégica de Grasas de Sobrepaso por Gluconeogénicos
Los optimizadores de energía en polvo o líquidos ofrecen una mayor eficiencia metabólica por Mcal consumida en comparación con los ácidos grasos saponificados [7]. Mientras que las grasas de sobrepaso aportan energía exclusivamente como lipogénesis periférica o grasa en leche (sin transformarse en glucosa), los gluconeogénicos de última generación alimentan directamente la reserva de glucógeno hepático y la oxalacetatemia, previniendo la cetosis y reduciendo el costo por mega caloría útil [7], [11].
El Dr. Maximiano Gabriel Macias expone las ventajas económicas directas del uso de optimizadores energéticos frente a fuentes tradicionales de grasa:
"El producto Lifi, como optimizador de energía a través de sustratos gluconeogénicos, tiene un menor costo que la utilización de grasas de sobrepaso o aceites. Nos permite mantener un costo más rentable por vaca por día, dejando un margen económico para implementar otras estrategias de manejo en la ración." — Dr. Maximiano Gabriel Macias, Especialista en Nutrición Bovina [1]
Retorno Económico y Reducción del Costo por Vaca Día
El uso de sustratos gluconeogénicos genera un margen sobre el costo de alimentación superior al 15% al prevenir mermas productivas por cetosis subclínica [11]. Los modelos de evaluación económicofinanciera demuestran que por cada dólar invertido en aditivos glucogénicos durante el periodo de transición, el productor recupera entre 3.5 y 4.8 dólares por concepto de mayor leche producida y disminución de costos veterinarios asociados a desplazamientos de abomaso, metritis y retención de placenta [27].
| Estrategia Energética | Costo Relativo Diario / Vaca | Aporte de Glucosa Directa | Riesgo de Acidosis / Ketosis | Retorno Económico (ROI) | Referencia |
|---|---|---|---|---|---|
| Grano de Maíz Molido (Incremento de Almidón) | Basal (Medio) | Nulo (Depende de fermentación) | Alto Riesgo de SARA ruminal | 1.5 : 1 (Limitado por acidosis) | [19] |
| Grasa Prill de Sobrepaso (Jabones Cálcicos) | Alto (+35% vs basal) | Nulo (Solo aporta ácidos grasos) | Bajo riesgo ruminal | 2.2 : 1 (Sin protección cetogénica) | [7] |
| Propilenglicol Líquido Drench | Medio-Alto | Directo e Inmediato | Cero riesgo de SARA | 3.8 : 1 (Alto control clínico) | [19], [31] |
| Optimizador Gluconeogénico (Lifi / Lipofeed) | Eficiente (-20% vs Grasa) | Directo vía Oxaloacetato | Cero riesgo de SARA | 4.5 : 1 (Máxima rentabilidad) | [1], [6], [11] |
Preguntas Frecuentes (FAQ)
Q: ¿Cómo sintetizan glucosa los rumiantes a través de la gluconeogénesis hepática? A: Los rumiantes sintetizan glucosa en el hígado utilizando principalmente el propionato producido por la fermentación ruminal de los carbohidratos, además de lactato, glicerol y aminoácidos glucogénicos mediante enzimas clave como la PEPCK y la glucosa-6-fosfatasa [13], [25].
Q: ¿Qué función cumplen los precursores gluconeogénicos en vacas en transición? A: Aportan una fuente de carbono directo para la gluconeogénesis hepática, previniendo la baja de glucosa sanguínea, reduciendo la movilización de tejido graso y disminuyendo drásticamente la formación de cuerpos cetónicos como el betahidroxibutirato [18], [19].
Q: ¿Cómo prevenir el balance energético negativo mediante sustratos glucogénicos? A: Se previene incorporando sustratos como propilenglicol o propionatos en la dieta desde 21 días preparto hasta 21 días posparto, manteniendo la glucemia por encima de 3.0 mmol/L y frenando la liberación masiva de AGNE [24], [31].
Q: ¿Cuál es el impacto de la glucosa en la producción y porcentaje de grasa de la leche? A: La glucosa es el sustrato limitante para la síntesis de lactosa, responsable de arrastrar agua y determinar el volumen de leche; además, provee NADPH para la síntesis de novo de ácidos grasos en la glándula mamaria [20], [26].
Q: ¿Cuál es la dosificación adecuada de propilenglicol para prevenir la cetosis subclínica? A: La dosis preventiva recomendada de propilenglicol varía entre 250 y 500 gramos por vaca al día administrados por vía oral o mezclados en la ración diaria durante el período de transición [19], [31].
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
Dr. Maximiano Gabriel Macias: Lifi: Optimizador de energía para raciones más rentables
-
Dr. Maximiano Gabriel Macias: Energía extra mejora reproducción en vacas de pastoreo
-
Hector Herrera: Lipofeed: Eficiencia y Reducción de Costos en Pollos de Engorde
-
Hector Herrera: Criterios Premio Excelencia Exportación Agropecuario Jalisco
-
AV Velilla et al.: Biossegurança Reduz Contaminação por Salmonella
-
Livas, C.F y Medeles, O.R.J: Lipofeed mejora conversión alimenticia en becerros Brangus
-
Dr. Maximiano Gabriel Macias: Precursores Gluconeogénicos vs. Grasas de Sobrepaso en Lechería
-
Juarez Donzele: Galactosidase e mananase melhoram microbiota e digestibilidade em frangos
-
Dr. Maximiano Gabriel Macias: Hippofit: Energía para Vacas Lecheras de Alta Producción
-
Mario Ibarra: Gluconeogénicos de Prepec aumentan producción de leche
-
Sara Medeles: Gluconeogénicos: Optimización energética y reducción de costos
-
Hector Herrera: LipoFeed: Sustrato glucogénico para bovinos
-
Carrillo-Herrera Jay: Glucosa y Propionatos: Clave en Energía y Músculo Bovino
-
Gabriela Acetoze: NexUlin Disminuye Producción de Insulina en Lechería
-
MC. Fernando Livas Calderón: Lipofeed mejora ganancia de peso y rentabilidad en toretes
-
Castañeda RLA, Núñez PR, Garza FJD: 1,2 Propanadiol vs Grasa en Vaquillas de Carne
-
Guillermo Mattioli: Estrés posparto: Impacto en vacas lecheras y soluciones
-
Katherine Garcia Alegria: Diagnóstico de Cetosis Subclínica en Vacas Lecheras
-
Pedro Melendez: Gluconeogénicos: Propilenglicol, Glicerol y Propionato de Calcio
-
Javier López Paredes: Glucosa y Producción en Bovinos de Leche
-
Juan Maria Baeck: Transición: Azúcares Simples para Vacas Lecheras
-
Hector Herrera: Uso de gluconeogénicos en rumiantes
-
Alejandro Palladino: Impacto del consumo de energía en vacas lecheras en transición
-
Morales CJL: Precursor glucogénico reduce βHB en posparto
-
Carlos Olegario Hidalgo Ordóñez, Carolina Tamargo Miguel, Enrique Gómez Piñeiro, Nieves Facal Fernández, Carmen Díez Monforte: Metabolismo de Propilenglicol a Glucosa en Bovinos
-
L. Royo y M. Puyalto - Norel Animal Nutrition: Demanda de Glucosa en Vacas Holstein Periparto
-
Calderón-Leyva MG1, Leyva OC1, Morales CJL2, Arellano-Rodríguez F1, GaytánAlemán LR3, Arellano-Rodríguez G1, Veliz-Deras FG2, Ángel-García O2, Cancino MCA4. 1Departamento de Producción Animal, UAAAN-UL 2Departamento de Ciencias Medico Veterinarias, UAAAN-UL, 3Deparatamento de Salubridad e Higiene, UAANUL. 4Lipofeed México: Precursor Glucogénico Reduce RMF en Holstein
-
Rubén D Galvis Góez1, Zoot; Hector J Correa Cardona2, Zoot, MSc.: Lipidosis Hepática y Gluconeogénesis en Lechería
-
Ryan Ordway: Pre-partum Choline Still Benefits Dairy Cows
-
Domínguez S.S., Carlos L., Grado A.: Propilenglicol y Glucosa Sanguínea en Vacas Lecheras
-
Andres L. Martinez Marin: Dosis de propilenglicol para prevención de cetosis
-
Dr.Ms PhD. Leonardo De Luca: Manejo de AGNE en Vacas Lecheras en Transición
-
Michael S. Allen and B. J. Bradford: Propionate's Role in Dairy Cow Feed Intake
-
Fernanda Lopes, PhD y Carolina Bespalhok Jacometo, PhD: Metionina materna mejora gluconeogénesis en terneras
-
M.V. Diego Carcano: Demandas Nutricionales Vaca Transición