Marcadores Moleculares en Ganadería Bovina: Tipos (SNP, RFLP), Ejemplos y Selección Genómica
Los marcadores moleculares en selección genética bovina son secuencias específicas de ADN utilizadas para identificar variaciones del genoma vinculadas a rasgos de interés económico. Su optimización se implementa mediante genotipado por paneles SNP y modelos de evaluación genómica, manteniendo umbrales de exactitud superior al 70% en animales jóvenes y densidades de 50.000 SNPs, lo que previene errores de filiación y optimiza la tasa de progreso genético intrarrodeo [1].
- Desafío Técnico y Causa Primaria: La baja exactitud de las DEPs en reproductores jóvenes retarda el progreso genético y dificulta la selección de caracteres cuantitativos.
- Impacto Cuantitativo: Incremento del 40% en la confiabilidad de evaluación al nacimiento y reducción del intervalo generacional en hasta 2,5 años.
- Protocolo de Intervención Verificado: Genotipado SNP mediante chips de media/alta densidad (50k/777k), imputación genómica y estimación de gDEPs enriquecidas.
Tipos de Marcadores Moleculares SNP RFLP y AFLP en Animales
La caracterización del genoma bovino mediante marcadores moleculares permite identificar variantes genéticas en cualquier tejido nucleado independientemente del ambiente o la edad del animal [1]. A diferencia de las evaluaciones fenotípicas tradicionales y las isozimas bioquímicas, las técnicas basadas en el análisis directo de la cadena de ácido desoxirribonucleico (ADN) ofrecen estabilidad biológica absoluta y acceso directo al locus de interés [2].
En la evolución de la genética molecular aplicada a la ganadería bovina, los marcadores se dividen fundamentalmente en tecnologías de primera generación (RFLP, AFLP, SSR) y tecnologías de alto rendimiento de segunda y tercera generación (SNPs y microarreglos) [3].
Polimorfismos de Longitud de Fragmentos de Restricción (RFLP)
Los marcadores RFLP (Restriction Fragment Length Polymorphism) se fundamentan en la digestión del ADN genómico o productos de PCR mediante enzimas de restricción bacterianas específicas [4]. Cuando ocurre una mutación puntual, inserción o deleción en el sitio de reconocimiento enzimático, el patrón de corte se altera, generando fragmentos de restricción de diferentes tamaños moleculares visiblemente separables por electroforesis en gel de agarosa o poliacrilamida [5]. Aunque son marcadores codominantes de alta reproducibilidad, su procesamiento requiere cantidades elevadas de ADN de alta pureza y presenta un rendimiento analítico bajo (low-throughput), lo que ha relegado su uso comercial frente a los páneles automatizados [6].
Polimorfismos de Longitud de Fragmentos Amplificados (AFLP) y Microsatélites (SSR)
Los AFLP combinan la digestión enzimática con la amplificación por reacción en cadena de la polimerasa (PCR) mediante cebadores que llevan adaptadores específicos [7]. Generan patrones complejos de bandas dominantes sin necesidad de conocimiento previo de la secuencia genómica. Por su parte, los microsatélites o SSR (Simple Sequence Repeats) consisten en repeticiones en tándem de 2 a 6 pares de bases (ej. CA_n) de alto polimorfismo y naturaleza codominante [8]. Durante más de dos décadas, los microsatélites constituyeron el estándar oficial de la Sociedad Internacional de Genética Animal (ISAG) para la prueba de paternidad y trazabilidad bovina, aunque requerían análisis por electroforesis capilar individualizada [9].
Polimorfismos de Nucleótido Único (SNP)
Los marcadores SNP (Single Nucleotide Polymorphism) representan cambios de una sola base nitrogenada (transiciones A/G, C/T o transversiones A/C, A/T, G/C, G/T) en posiciones específicas del genoma [10]. Son los marcadores más abundantes en el ADN bovino, presentándose aproximadamente cada 300 a 1.000 pares de bases [11]. Debido a su distribución uniforme a lo largo de los 29 autosomas y el par sexual, y a su adaptabilidad a plataformas automatizadas de microarreglos (arrays de hibridación), los SNP han desplazado por completo a las tecnologías anteriores en la ganadería moderna [12].
| Tecnología de Marcador | Tipo de Marcador | Abundancia en el Genoma | Plataforma de Detección | Confiabilidad en Paternidad | Rendimiento Analítico | Cita Técnica |
|---|---|---|---|---|---|---|
| RFLP | Codominante | Baja (< 10.000 loci) | PCR / Gel de Agarosa | 85,0% a 92,0% | Muy bajo (Manual) | [4] |
| AFLP | Dominante | Media (~ 50.000 loci) | Electroforesis Acrilamida | 75,0% a 85,0% | Bajo | [7] |
| SSR (Microsatélites) | Codominante | Media (~ 100.000 loci) | Electroforesis Capilar | 98,0% a 99,5% | Medio | [8] |
| SNP Chip Low-Density | Codominante | Alta (9.000 a 20.000) | Microarreglo Fluorescente | 99,9% | Alto (Automatizado) | [11] |
| SNP Chip High-Density | Codominante | Ultra-alta (50k a 777k) | Sequenom / Illumina HD | > 99,99% | Ultra-alto (Robótico) | [12] |
Ejemplos de Marcadores Moleculares Asociados a Producción Láctea y Calidad
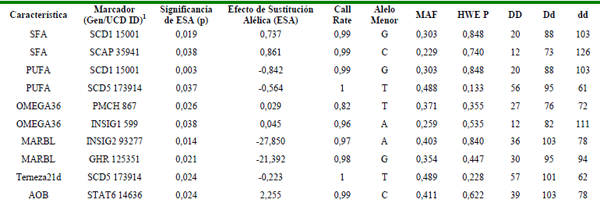
La identificación de genes candidatos y mutaciones puntuales causalmente asociadas a vías metabólicas ha permitido la implementación de la Selección Asistida por Marcadores (MAS) en ganado lechero y de carne [5].
Los marcadores genéticos asociados a características nutricionales, composición de la leche y perfil de ácidos grasos en carne permiten seleccionar toros y vientres con genotipos superiores desde el nacimiento [13].
Genes de la Síntesis de Lácteos: CSN3, LGB y DGAT1
El gen de la Diacilglicerol O-Aciltransferasa 1 (DGAT1), ubicado en el cromosoma bovino 14 (BTA14), es responsable de la etapa final en la síntesis de triacilgliceroles en la glándula mamaria [10]. El polimorfismo dinucleotídico dinucleótido [K232A] (sustitución de Lisina por Alanina en el aminoácido 232) ejerce un efecto sustancial sobre la composición de la leche:
- Alelo K (Lisina): Incrementa la concentración de grasa en leche entre un +0,20% y +0,40%, reduce el volumen total de leche y disminuye el porcentaje de proteína [11].
- Alelo A (Alanina): Asociado a un mayor volumen absoluto de leche (incremento de hasta 300 kg por lactancia), pero con una reducción simultánea en el porcentaje de materia grasa [10].
Por otro lado, los polimorfismos en los genes de las proteínas de la leche, específicamente Kappa-Caseína (CSN3) y Beta-Lactoglobulina (LGB), definen la aptitud quesera industrial [7]. La variante alélica B del gen CSN3 (asociada a las mutaciones Thr136Ile y Asp148Ala) acorta el tiempo de coagulación por cuajo en un 25%, incrementa la firmeza de la cuajada y eleva el rendimiento de queso procesado por litro de leche en un 5% a 8% respecto al alelo A [14].
Genes Modificadores de Ácidos Grasos y Marmoleado: SCD, FASN, TG y CAPN1
En la calidad organoléptica y nutricional de la carne, la enzima Estearoil-CoA Desaturasa (SCD) y la Ácido Graso Sintasa (FASN) regulan el índice de saturación de la grasa intramuscular [5]. El genotipo SCD (polimorfismo C/T en el exón 5, reemplazo Alanina293Valina) incrementa la conversión de ácido esteárico (C18:0) a ácido oleico (C18:1 monoinsaturado), reduciendo el punto de fusión de la grasa y mejorando el perfil lipídico saludable para el consumidor [5].
Para la ternura y la infiltración de grasa intramuscular (marmoleado), se emplean los siguientes marcadores de SNP específicos:
- Tiroglobulina (TG): El polimorfismo TG5 ubicado en la región 5' no traducida del gen en BTA14 promueve una mayor tasa de adipogénesis intramuscular sin incrementar el depósito indeseado de grasa subcutánea de cobertura [9].
- Calpaína (CAPN1) y Calpastatína (CAST): Las variantes SNP en CAPN1 (316 y 4751) y CAST (282) regulan la proteólisis post-mortem de las miofibrillas musculares. Los genotipos homocigotos favorables garantizan lecturas de fuerza de corte Warner-Bratzler por debajo del umbral crítico de 3,9 kg/cm² a los 14 días de maduración [6].
| Gen Candidato | Locus / Cromosoma | Polimorfismo / SNP | Genotipo Favorable | Impacto Zootécnico Medible | Cita Técnica |
|---|---|---|---|---|---|
| DGAT1 | BTA14 | Dinucleótido [K232A] | KK (Lisina/Lisina) | +0,35% Grasa en leche; -250 kg leche total | [10] |
| CSN3 | BTA6 | Thr136Ile / Asp148Ala | BB (Kappa-Caseína B) | +8,0% Rendimiento en quesería; menor tiempo coagulación | [14] |
| SCD | BTA26 | Val293Ala (Exón 5) | CC (Alanina/Alanina) | +3,5% Ácido Oleico (C18:1); menor punto fusión grasa | [5] |
| FASN | BTA19 | g.16024A>G | GG | Aumento significativo de ácidos grasos monoinsaturados | [5] |
| TG | BTA14 | Polimorfismo TG5 | TT (Homocigoto) | Aumento de 0,5 a 1,0 puntos en escala de marmoleado | [9] |
| CAPN1 | BTA29 | SNP 316 / SNP 4751 | CC / TT | Reducción del esfuerzo de corte por debajo de 3,9 kg/cm² | [6] |
| CAST | BTA7 | SNP 282 | CC | Inhibición controlada de calpaína; ternura garantizada | [6] |
Marcadores Genéticos de Caracteres Cuantitativos en Bovinos de Leche
La mayoría de los parámetros con importancia económica en ganadería bovina (producción de leche, fertilidad, persistencia, eficiencia de conversión y longevidad) poseen una estructura poligénica compleja regulada por Criterios de Locos de Características Cuantitativas (QTL, por sus siglas en inglés Quantitative Trait Loci) [11].
El mapeo de QTLs mediante la detección de haplotipos de SNP permite identificar regiones genómicas clave que explican fracciones proporcionales de la varianza aditiva total de los rodeos lecheros [10].
QTLs de Duración de la Gestación, Salud de la Ubre y Fertilidad
La duración de la gestación en vacunas lecheras Holando y sus cruzas condiciona la curva de lactancia y el período de transición al parto [10]. Estudios de asociación genómica amplia (GWAS) han identificado ventanas genómicas de SNP en los cromosomas BTA6, BTA18 y BTA25 que modulan la duración de la gestación entre -4,5 días y +3,8 días respecto a la media poblacional, facilitando la selección asistida de reproductores con menor incidencia de distocias y retención placentaria [10].
De igual manera, para la resistencia a mastitis, la puntuación de células somáticas (SCS) presenta correlación genómica con polimorfismos en el complejo mayor de histocompatibilidad bovino (BoLA-DRB3 ubicado en BTA23) [3]. La incorporación de SNP marcadores del sistema inmunológico innato en los índices de selección lechera permite reducir la recuento de células somáticas en más de un 15% por generación [1].
Consumo Residual de Alimento (RFI) y Eficiencia Metabólica
La eficiencia de conversión alimenticia representa uno de los costos operativos más elevados en establos lecheros y corrales de engorde [14]. Dado que la medición directa del consumo individual de materia seca mediante comederos automatizados es costosa e impráctica a gran escala en sistemas pastoriles, el uso de marcadores SNP preseleccionados asociados al Consumo Residual de Alimento (RFI, Residual Feed Intake) permite la identificación genómica de animales eficientes [14]. Los animales genéticamente identificados con RFI negativo consumen significativamente menos materia seca manteniendo los mismos niveles de ganancia diaria de peso vivo o volumen de producción láctea [14].
| Matriz de Punto Crítico | Fase de la Estrategia Genómica | Parámetro Operativo u Objetivo | Especificación Técnica Medible | Riesgo por Incumplimiento | Acción Correctiva Inmediata | Cita Técnica |
|---|---|---|---|---|---|---|
| PCC-01 | Muestreo biológico en finca | Colección de bulbo piloso o cartílago auricular | > 30 folículos pilosos secos o muesca de 3 mm en tubo con desecante | Lisis folicular, contaminación con estiércol o degrado de ADN | Repetición del muestreo utilizando tubos TSU (Tissue Sampling Unit) | [3] |
| PCC-02 | Cadena de custodia y envío | Temperatura y tiempo de tránsito | Envío a temperatura ambiente (< 35°C), llegada a laboratorio < 72h | Degradación enzimática del ADN por humedad o calor extremo | Descarte de muestras húmedas; acondicionamiento con gel refrigerante | [3] |
| PCC-03 | Extracción e integridad de ADN | Concentración y pureza (Relación A260/280) | Concentración ≥ 50 ng/µL; Ratio A260/280 entre 1,8 y 2,0 | Inhibición de la reacción de PCR o falla de hibridación en microarreglo | Re-extracción por protocolo de columna de sílice o purificación con fenol-cloroformo | [11] |
| PCC-04 | Genotipado por Chip SNP | Tasa de llamada (Call Rate) por muestra | Call Rate ≥ 98,5% de los SNP del panel | Pérdida de resolución genómica e imprecisión en imputación de haplotipos | Repetición del chip para muestras con Call Rate < 98,0% | [11] |
| PCC-05 | Control de Calidad de SNP | Frecuencia del Alelo Menor (MAF) y Hardy-Weinberg | MAF ≥ 0,01 (1%); Desviación HWE p > 10?6 | Introducción de artefactos o SNP no informativos en las matrices | Filtrado informático y descarte de SNP monomórficos o fuera de HWE | [12] |
| PCC-06 | Imputación Genómica | Eficiencia de imputación de Low a High Density | Precisión de imputación genómica R² ≥ 0,95 | Error en la predicción de valores de cría (gDEPs) en animales jóvenes | Actualización de la población de referencia genotipada en alta densidad (HD 777k) | [13] |
| PCC-07 | Verificación de Paternidad | Panel ISAG core SNP | Exclusión de paternidad con ≥ 100/200 SNP con 0 incongruencias | Asignación errónea de genealogía en libros genealógicos | Correlación informática con matriz de toros del centro de inseminación | [15] |
| PCC-08 | Detección de Haplotipos Letales | Tamizaje de portadores de taras recessivas | Diagnóstico de genotipo heterocigoto para HH1-HH5, BLAD, CVM, AM, NH | Ocurrencia de reabsorciones embrionarias, abortos o mortalidad al nacer | Bloqueo informático en el programa de acoplamientos asistidos (Inbreeding Control) | [3] |
| PCC-09 | Estimación de gDEPs | Combinación BLUP tradicional + matriz de parentesco genómico (G) | Ponderación del índice mediante ssGBLUP (Single-step GBLUP) | Sobrestimación o desalineación del mérito genético intrarrodeo | Re-calibración trimestral de la matriz G con los datos de progenie nacional | [12] |
| PCC-10 | Selección y Decisiones de Acoplamiento | Confiabilidad (Accuracy) mínima para selección | Confiabilidad de gDEPs ≥ 65% a 70% en reproductores sin hijas | Selección errónea de toros jóvenes para uso masivo por IATF | Limitar el uso de toros jóvenes a paquetes de semen con gDEPs consolidadas | [1] |
Paneles de Marcadores Moleculares en Evaluación y Selección Genómica
La evolución de las evaluaciones genéticas en la ganadería bovina ha transitado desde la apreciación fenotípica subjetiva hacia la estimación de Diferencias Esperadas de Progenie (DEPs o EPDs) basadas en modelos BLUP (Best Linear Unbiased Prediction) e integradas hoy con la Selección Genómica [12].
La tecnología de genotipado masivo utiliza microarreglos comerciales que van desde paneles de baja densidad (9.000 a 20.000 SNPs), densidad media (50.000 SNPs o BovineSNP50) hasta paneles de alta densidad (BovineHD de 777.962 SNPs) [11].
El Mecanismo de las DEPs Genómicas Enriquecidas (gDEPs)
La selección genómica no reemplaza las evaluaciones genéticas tradicionales, sino que las potencia drásticamente [12]. Al genotipar un ternero al nacimiento, su perfil de miles de marcadores SNP se compara contra una Población de Referencia constituida por miles de toros probados con alto número de hijas y datos de comportamiento fenotípico consolidado [13].
Este procedimiento calcula el efecto individual de cada locus SNP y estima el Mérito Genético Directo (DGV) [13]. Mediante metodologías de evaluación en un solo paso (Single-Step Genomic BLUP o ssGBLUP), se combina la matriz de parentesco genealogico tradicional (A) con la matriz de parentesco genómico (G) derivada del análisis de ADN [12].
"La selección genómica asociada a las Diferencias Esperadas de la Progenie (DEPs) brinda una oportunidad sin precedentes para aumentar la intensidad de selección y reducir el intervalo generacional. La integración de paneles genómicos en rodeos generales es un pilar estratégico que transformará la eficiencia productiva de la ganadería." — Daniel Musi, Foro Argentino de Genética Bovina [12]
"La tecnología genómica permite predecir el valor genético de animales jóvenes, incluyendo hembras, con alta confiabilidad al nacimiento. En razas lecheras como Holstein, la inclusión de información de marcadores SNP incrementa la confiabilidad de la predicción en aproximadamente un 40% para producción de leche y vida útil." — Fernando Dicroce, Especialista en Genética Animal [1]
Ventajas de la Selección Genómica en Reproductores Jóvenes
- Aumento Inmediato de la Confiabilidad (Accuracy): Un ternero recién nacido genotipado obtiene una confiabilidad en sus gDEPs equivalente a la de un toro adulto que ya ha engendrado entre 20 y 30 hijas probadas en lactancia o con datos de carcasa faenada [1].
- Reducción del Intervalo Generacional: Permite seleccionar toros y vaquillonas de reemplazo a los pocos meses o días de vida, acortando el ciclo de evaluación de 5-6 años (prueba de progenie tradicional) a menos de 1,5 a 2 años [13].
- Evaluación de Caracteres Difíciles o Costosos de Medir: Facilita la mejora de rasgos de baja heredabilidad (h2 < 0,15) o de expresión tardía en la vida del animal, como la fertilidad de las hijas, la longevidad, la resistencia a enfermedades metabólicas y la eficiencia de conversión alimenticia en pastoreo [14].
Pruebas Moleculares para el Perfil Genético y Paternidad en Ganado
La verificación precisa de la genealogía y el perfil de salud hereditaria constituye una herramienta crítica para el funcionamiento de los libros genealógicos, las cabañas de reproductores y los programas comerciales de inseminación artificial [15].
Las pruebas moleculares avanzadas permiten resolver disputas de paternidad, clasificar la composición racial y detectar portadores asintomáticos de mutaciones letales [3].
Verificación de Paternidad mediante Paneles SNP ISAG
Históricamente, las pruebas de filiación se realizaban mediante páneles de 16 a 21 microsatélites (SSR). Sin embargo, el Comité de Genética de Animales Domésticos de la ISAG estandarizó un panel internacional de marcadores de SNP para la asignación de paternidad compuesto por:
- Panel Core ISAG: 100 a 200 marcadores SNP de altísimo valor informativo y bialélicos [15].
- Panel Extendido: Hasta 500 marcadores SNP para la resolución de casos complejos de consanguinidad estrecha o tíos/hermanos con genotipos similares [15].
La probabilidad de exclusión de paternidad utilizando el panel de SNP supera el 99,99%, eliminando los errores de digitación de registros en el campo que tradicionalmente oscilaban entre un 10% y un 15% en rodeos comerciales pastoriles [15].
Diagnóstico de Enfermedades Genéticas y Haplotipos Defectuosos
Las pruebas de genotipado por ADN tamizan automáticamente mutaciones recesivas y haplotipos causantes de embrionaria precoz o defectos morfológicos [3]. Entre las principales condiciones diagnosticadas mediante chips SNP destacan:
- Ganado Holando / Lechería:
- BLAD (Deficiencia de Adhesión Leucocitaria Bovina): Mutación puntual en el gen ITGB2 que causa inmunodeficiencia letal en terneros homocigotos recesivos [3].
- CVM (Malfomación Vertebral Compleja): Mutación en el gen SLC35A3 que provoca abortos, nacimientos prematuros y severas malformaciones esqueléticas [3].
- Haplotipos de Infertilidad (HH1, HH2, HH3, HH4, HH5, HH6): Regiones del genoma donde la condición homocigota es inexistente en animales vivos debido a que produce la muerte embrionaria temprana antes de los 60 días de gestación [3].
- Ganado Angus y Carne:
- AM (Artrogriposis Múltiple / Toro Encorvado): Mutación deleción que afecta el desarrollo de la médula espinal [3].
- NH (Hidrocefalia Neuropática): Causa un agrandamiento severo de la cavidad craneal con ausencia de tejido cerebral funcional [3].
- CA (Aracnodactilia Contracturativa / Pata de Araña): Mutación que compromete el tejido conectivo causando deformación de extremidades [3].
La detección sistemática de reproductores portadores heterocigotos mediante paneles de ADN permite diseñar programas informáticos de acoplamiento que evitan totalmente el cruce entre dos portadores, erradicando la pérdida económica por mortalidad perinatal [3].
Preguntas Frecuentes (FAQ)
Q: ¿Qué enfermedades detecta la biología molecular? A: La biología molecular detecta enfermedades hereditarias recesivas como BLAD, CVM, AM, NH, CA, así como haplotipos de mortalidad embrionaria temprana (HH1 a HH6) e infecciones patógenas virales o bacterianas mediante la reacción en cadena de la polimerasa (PCR) [3].
Q: ¿Qué detecta la prueba molecular? A: La prueba molecular detecta variaciones específicas en la secuencia del ADN bovino, como mutaciones de nucleótido único (SNPs), microsatélites y deleciones genéticas, determinando el mérito genético, la filiación, el perfil racial y la presencia de taras hereditarias [1].
Q: ¿Cuáles son los marcadores genéticos? A: Los marcadores genéticos son regiones identificables del genoma e incluyen los polimorfismos de nucleótido único (SNP), los microsatélites (SSR), los polimorfismos de longitud de fragmentos de restricción (RFLP) y los fragmentos amplificados (AFLP) [4].
Q: ¿Puedes darme algunos ejemplos de marcadores moleculares? A: Ejemplos destacados incluyen la mutación K232A en el gen DGAT1 para porcentaje de grasa láctea, los alelos A/B de Kappa-Caseína (CSN3) para aptitud quesera, y el SNP TG5 en el gen de Tiroglobulina para marmoleado cárnico [10].
Q: ¿Cuál es la diferencia entre evaluar un toro por prueba de progenie y por selección genómica? A: La prueba de progenie requiere de 5 a 6 años para medir el desempeño de 20 a 30 hijas, mientras que la selección genómica evalúa miles de SNPs al nacer, otorgando alta confiabilidad inmediata y acortando el intervalo generacional [13].
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
Jorge Ghiano: Efectividad de Cooling en Bovinos de Leche
-
López Valiente S. et al.: Cruzamiento Limangus-Angus: Rendimiento de Res sin Grasa Extra
-
Acosta Aragón, Y. PhD: Measuring Silage Inoculant Profitability in Dairy
-
Carlos A.Garriz: Raza Criolla Argentina: Potencial en cruzamientos
-
Jose Antonio Rangel: Criterios clave para seleccionar cerdas de pie de cría
-
Silvia Eugenia Pinto Guillén: Cuidados críticos de cerdas en el parto y postparto
-
Enky Zurc Azem: Criterios de selección de verracos reproductores
-
NUMA GONZALEZ: Prolificidad y heterosis en cerdas F1
-
Luis Fernando Suárez: Habilidad materna: clave en la selección de cerdas
-
Angelica Lopez: Riesgos de consanguinidad en cerdas de cría
-
Daniel Musi: DEPs y Selección Genómica: Claves del Mejoramiento Genético Bovino
-
Dr. Carlos José Munar: Marcadores Moleculares en Selección Bovina
-
Claudio Fioretti: Caracteres económicos clave en genética bovina
-
Karla Inostroza y Néstor Sepúlveda: SNPs en SCD y FASN para selección genética bovina
-
Branda Sica, A.: SNP y Calidad de Carne en Novillos Hereford
-
Jaime Piñeira: Polimorfismos y Grasa Intramuscular en Bovinos Clavel de Carne
-
Henry Berger: Marcadores Moleculares: Potencial Genético en Bovinos
-
Fernando Dicroce: Marcadores Genéticos para Mejoramiento Animal en Bovinos
-
Sebastian Munilla: Marcadores Moleculares: Identificación y Filiación
-
Luis María Firpo: Evolución de la selección genética en bovinos: de lo subjetivo a los DEPs
-
Justin Sexten: Tecnologías de selección genética: ADN y genómica
-
Ana Inés Trujillo: Identificación Genética de Eficiencia en Angus
-
Maria Marcela Martinez: Selección Genómica en Bovinos de Carne: Conceptos y Aplicación
-
Luis María Firpo Brenta: Evolución de la selección: Del ojo al genoma
-
Brenda Sosa Reyes: Microsatélites en Mejoramiento Genético Bovino
-
Dr. Kahlil Lawless: Genómica para parentesco y enfermedades genéticas
-
Sebastian Munilla: Selección Genómica: Acelerando el Progreso
-
Umberto Francesa: Marcadores SNP: Identificación de Genes Económicos Bovinos
-
Jorge Quiroz-Valiente: Polimorfismo molecular: Mejora genética en ganado lechero
-
MVZ, MA, Esp. Cert. Arturo C. Sánchez Mejorada Porras: Análisis de SNP con chips de 54,000 marcadores
-
Aguilar, I.; Navajas, E.A.; Ravagnolo, O.; Peraza, P.; Montossi, F.; Dalla Rizza, M.: SNP para parentesco bovino: precisión y eficiencia
-
Jaime Piñeira, Rodrigo Morales, Francisco Sales, Andrés M. Carvajal, Francisco Gebauer: Polimorfismos genéticos y marmoleo en bovinos
-
Raschia M.A., Maizon D.O. y Poli M.A.: Loci Genéticos DG Bovinos Lecheros
-
MC Hugo O. Toledo Alvarado, PhD Felipe de J. Ruíz López.: Chips SNP para detección genética en bovinos
-
Ana Carolina Espasandin, Andrea Larracharte Cardoso, Rodrigo López-Correa: Evaluaciones Genómicas: Acelerando el Progreso Genético