Celo en Hembras Porcinas: Guía Definitiva de Detección, Sincronización y Manejo Reproductivo en Cerdas
La detección y sincronización de celo en hembras porcinas es el sistema zootécnico e hormonal diseñado para sincronizar ovulaciones y optimizar la fertilidad. Se implementa mediante machos receladores y progestágenos orales, manteniendo umbrales de 20 mg/día de Altrenogest por 18 días y un intervalo destete-celo menor a 5 días, lo que previene el anestro y optimiza los lechones nacidos vivos [8].
- Desafío Técnico y Causa Primaria: La detección y sincronización de celo en hembras porcinas requiere superar la anovulación y variabilidad folicular provocada por el estrés de lactancia.
- Impacto Cuantitativo: Pérdida de 0.8 a 1.5 lechones nacidos vivos por camada, incremento del intervalo destete-celo a más de 8 días y elevación del reflujo seminal post-IA al 25%.
- Protocolo de Intervención Verificado: Sincronización con Altrenogest a 20 mg/día por 18 días en nulíparas, flushing energético post-destete con 3.2 kg/día de alimento y recelo en grupo con machos maduros.
Fisiología del Celo y Ciclo Estral en la Cerda
El ciclo estral en la hembra porcina comprende una fase luteal de 14 a 15 días y una fase folicular de 4 a 6 días, regulada endocrinamente por el eje hipotálamo-hipófisis-gonadal. La cerda es una especie poliéstrica no estacional continua; sin embargo, factores como la temperatura ambiental, el fotoperiodo, la nutrición y el estímulo social pueden modular severamente la frecuencia y la intensidad de las pulsaciones hormonales [18]. La comprensión analítica de las fluctuaciones endocrinas a lo largo del ciclo permite diseñar estrategias de intervención precisas para optimizar los índices de parición y la productividad del hato reproductor.
Fases Hormonales y Cascada del Eje Hipotálamo Hipófisis Gonadal
La pulsatilidad de la hormona liberadora de gonadotropinas (GnRH) estimula la síntesis y liberación de la hormona folículo-estimulante (FSH) y la hormona luteinizante (LH) por la adenohipófisis. Durante el estro, la caída drástica de la progesterona circulante debido a la lisis del cuerpo lúteo elimina la retroalimentación negativa sobre el hipotálamo [8]. Esta desinhibición desencadena un incremento sostenido en la frecuencia de los pulsos de GnRH, promoviendo la secreción masiva de LH que culmina en el pico preovulatorio.
| Secuencia del Proceso | Parámetro / Condición |
|---|---|
| Fase 1 | Hipotálamo ---(GnRH) |
| Fase 2 | Adenohipófisis |
| (FSH / LH) | - |
| Fase 3 | Ovarios/Folículos |
| (17-beta-Estradiol) | - |
| Fase 4 | Reflejo de Inmovilidad |
Dinámica Folicular y Secreción de Estrógenos en la Foliculogénesis
Los folículos antrales en crecimiento producen 17-beta-estradiol, alcanzando concentraciones plasmáticas de 25 a 35 pg/mL durante el proestro tardío. La acción coordinada de los estrógenos actúa sobre el sistema nervioso central de la cerda para inducir las manifestaciones comportamentales del celo [8]. Simultáneamente, el estrógeno provoca cambios vasculares y estructurales en el tracto reproductor, tales como la hiperemia de la mucosa vulvar, el aumento del tono uterino y la producción de moco cervical hialino y filante.
Mecanismos de Luteólisis y Regulación por Prostaglandina F2 Alfa
La regresión del cuerpo lúteo al día 15 a 16 es inducida por pulsos uterinos de PGF2 alfa, permitiendo el reinicio del reclutamiento folicular. Si el reconocimiento materno de la gestación no ocurre mediante la señalización estrogénica de al menos cuatro blastocistos al día 12 de gestación, el endometrio libera PGF2 alfa de forma pulsátil [8]. La consecuente inactivación del cuerpo lúteo provoca una reducción drástica en la producción de progesterona, abriendo la ventana fisiológica para el siguiente proestro.
Protocolo de Detección de Celo y Reflejo de Tolerancia
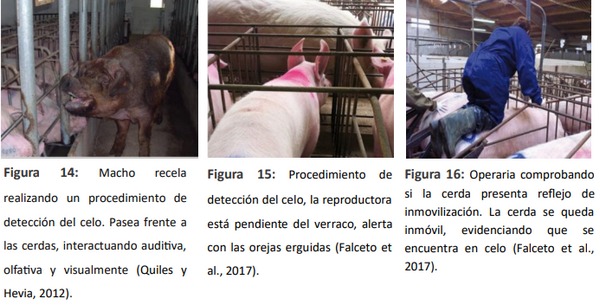
La detección precisa del celo requiere evaluar la manifestación del reflejo de inmovilidad y los signos vulvares mediante el estímulo bio-sensorial de un verraco maduro. El proceso de detección no debe considerarse una simple inspección pasiva, sino una rutina metódica de estimulación que involucra la vista, el olfato, el oído y el contacto físico directo entre el macho celador y la hembra [7].
Estimulación Bio Sensorial con Machos Receladores en Grupo
La exposición directa a un grupo de machos receladores maduros incrementa en un 30% la expresión explícita del celo frente al contacto con un solo macho. Las feromonas presentes en la saliva del verraco (especialmente androstenona y androstenol) son captadas por el sistema vomeronasal de la hembra, desencadenando la inmovilización [5].
"Nosotros podemos tener los mejores operarios trabajando en la detección de celo, pero finalmente el que induce y detecta el celo es el macho. Un grupo de machos siempre va a ser más efectivo que un macho solo." — Joaquín Spörke, Especialista en Reproducción Porcina [5]
Evaluación del Reflejo de Inmovilidad y Variaciones del Periodo Refractario
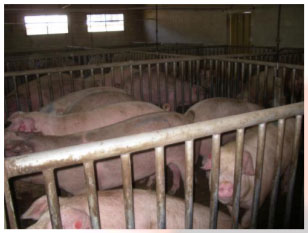
El reflejo de inmovilidad tiene una duración efectiva de 10 a 15 minutos antes de que la cerda entre en un periodo refractario de 1 a 2 horas. Durante este periodo de fatiga neuromuscular, la hembra no responderá a la presión lumbar ni a la presencia del verraco, lo que puede conducir a diagnósticos falsos negativos si el personal insiste en el recelo continuo [28].
Clasificación y Manejo del Reflujo Seminal Post Inseminación
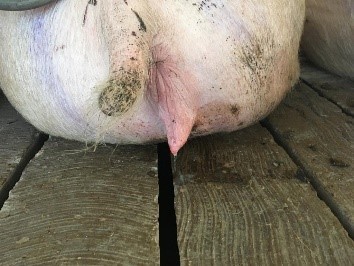
El control estricto del reflujo seminal post-inseminación artificial permite mantener las pérdidas retrógradas de espermatozoides por debajo del 10% de la dosis inyectada. El reflujo es una respuesta fisiológica o una consecuencia de una técnica deficiente de inseminación [4]. La clasificación del reflujo ayuda a identificar problemas de manipulación o irritación uterina:
| Clasificación de Reflujo | Descripción Fisiológica | Rango Aceptable (%) | Causa Primaria Identificada | Referencia |
|---|---|---|---|---|
| Tipo #1 (Transparente/Claro) | Salida de moco cervical fisiológico previo o durante la IA | 5.0% a 10.0% | Estimulación oxitocínica y lubricación vaginal normal | [4] |
| Tipo #2 (Lechoso/Semicristalino) | Mezcla de dosis seminal residual con secreciones uterinas | 2.0% a 5.0% | Falta de fijación del catéter en las crestas cervicales | [4] |
| Tipo #3 (Denso/Blanquecino) | Expulsión retrógrada masiva de la dosis administrada | Caída de 0% a 2.0% | Reflejo refractario o manipulación brusca durante IA | [4] |
| Tipo #4 (Sanguinolento/Purulento) | Presencia de eritrocitos o detritos inflamatorios en reflujo | 0.0% (Patológico) | Traumatismo de mucosa cervical o endometritis subclínica | [4] |
| Paso | Punto Crítico de Control (PCC) | Parámetro Operativo | Limite Crítico | Acción Correctiva Inmediata | Referencia |
|---|---|---|---|---|---|
| 1 | Edad del Macho Celador | > 12 meses de edad | Libido baja (< 2 min contacto) | Reemplazar macho por verraco maduro altamente activo | [7] |
| 2 | Exposición Directa a Feromonas | Contacto hocico con hocico | Distancia > 0.5 m del recelador | Colocar al macho en pasillo frontal con barrera de contacto | [5] |
| 3 | Tiempo de Estimulación por Lote | 10 a 15 min por grupo | > 20 min (Período refractario) | Mover el macho al siguiente corral para evitar fatiga de la hembra | [28] |
| 4 | Chequeo de Signos Vulvares | Edema, eritema y flujo filante | Ausencia de moco hialino | Registrar sospecha y reevaluar en 12 horas con estímulo de presión | [31] |
| 5 | Prueba de Presión Lumbar | Reflejo de inmovilidad estricto | Cerdas en movimiento continuo | Aplicar presión sobre flancos y grupa en presencia directa del macho | [7] |
| 6 | Higiene Perineal Pre-IA | Limpieza de vulva con toalla seca | Contaminación fecal externa | Limpiar de arriba hacia abajo sin introducir materia orgánica al cérvix | [4] |
| 7 | Introducción del Catéter | Angulo ascendente a 45° | Resistencia por mala trayectoria | Reorientar catéter hacia arriba para evitar la fosa suburetral | [4] |
| 8 | Fijación Cervical del Catéter | Encaje firme en crestas | Deslizamiento del catéter | Girar en sentido antihorario hasta lograr anclaje seguro | [4] |
| 9 | Velocidad de Inseminación | Infusión por tinción/gravedad (3-5 min) | Presión manual forzada | Permitir que las contracciones uterinas aspiren la dosis seminal | [4] |
| 10 | Monitoreo Post-Inseminación | Pérdida de semen < 5 mL | Reflujo masivo (> 20 mL) | Reposicionar catéter o aplicar dosis de refuerzo según protocolo | [4] |
Sincronización de Celo en Cerdas Nulíparas con Altrenogest
La administración oral de 20 mg/día de Altrenogest durante 18 días consecutivos bloquea la descarga preovulatoria de LH y sincroniza el estro tras su retirada. Este progestágeno sintético actúa simulando la presencia de un cuerpo lúteo funcional, suprimiendo la maduración de los folículos ováricos sin inhibir el desarrollo folicular inicial [17]. Al interrumpir el tratamiento, el descenso brusco del progestágeno en sangre activa la cascada gonadotrópica, provocando la aparición agrupada del celo entre 4 y 6 días posteriores al último suministro.
Dosificación Metodológica y Modulación de la Fase Luteal Artificial
La ingesta diaria e ininterrumpida del progestágeno sintético suprime el desarrollo folicular terminal sin alterar la reserva ovárica inicial de la nulípara. Es crítico asegurar que cada cerda reciba exactamente la dosis individual de 20 mg/día, administrada preferentemente sobre una pequeña porción de alimento en la primera hora de la mañana [17]. El incumplimiento de la dosis o la subdosificación involuntaria puede inducir la formación de quistes foliculares y fallas permanentes en el ciclo estral.
Protocolos Combinados con Gonadotropinas Exógenas eCG y hCG
La aplicación de 1300 UI de eCG seguida de 1000 UI de hCG a las 80 horas maximiza la tasa de ovulación y la uniformidad de cigotos. La eCG (Gonadotropina Coriónica Equina) ejerce una acción predominantemente FSH, estimulando el crecimiento del cohorte folicular, mientras que la hCG (Gonadotropina Coriónica Humana) imita el pico natural de LH, desencadenando la ovulación sincrónica a las 40-42 horas post-inyección [22].
| Tratamiento Hormonal | Dosis / Vía de Administración | Momento de Aplicación | Respuesta Esperada | Referencia |
|---|---|---|---|---|
| Altrenogest (Progestágeno) | 20 mg/día (vía oral individual) | Días 1 a 18 continuos | Bloqueo de LH y supresión de celo | [17] |
| eCG (Gonadotropina Equina) | 800 UI a 1300 UI (IM) | 24 h post-retiro Altrenogest | Reclutamiento y maduración folicular | [22] |
| hCG (Gonadotropina Humana) | 500 UI a 1000 UI (IM) | 80 h post-eCG | Inducción de la ovulación sincrónica | [22] |
| PG600 (eCG + hCG) | 400 UI eCG + 200 UI hCG (IM) | Al destete o día 0 de inducción | Estímulo de celo en anestro y primerizas | [10] |
| PGF2 Alfa (Prostaglandina) | 10 mg a 25 mg (IM) | Día 19 post-destete ("Quedadas") | Luteólisis de cuerpos lúteos persistentes | [15] |
Protocolo de Saltar Celo en Primerizas y Beneficios en Longevidad
El aplazamiento de la cobertura por 21 días en cerdas primerizas de baja condición corporal incrementa el tamaño de la siguiente camada entre 0.7 y 1.2 lechones. Esta técnica, conocida como "skip a heat", consiste en detectar el primer celo de la nulípara pero omitir la inseminación artificial, proporcionando tres semanas adicionales de alimentación hiperenergética [11]. Durante este periodo, la hembra completa su madurez esquelética, acumula reservas lipídicas y desarrolla completamente su glándula mamaria, lo que reduce drásticamente las tasas de descarte prematuro en el segundo parto.
Gestión de la Alimentación en el Intervalo Destete Celo
Suministrar entre 2.5 y 3.2 kg/día de dieta hiperenergética post-destete acelera el reinicio estral y estimula la supervivencia embrionaria en la fase preimplantacional. La restricción nutricional o el consumo insuficiente de alimento durante la lactancia previa induce un catabolismo severo que agota las reservas de grasa y músculo, comprometiendo la función del hipotálamo [14]. La nutrición en la fase de transición destete-servicio debe reponer rápidamente el balance energético negativo para garantizar una foliculogénesis de alta calidad.
Alimentación Energética Flushing y Respuesta Insulinémica Preovulatoria
La estimulación dietética con glucosa e insulina post-destete incrementa la tasa ovulatoria mediante la supresión de la atresia folicular. El protocolo de flushing nutricional eleva las concentraciones plasmáticas de insulina y del factor de crecimiento similar a la insulina tipo 1 (IGF-1), lo que potencia la sensibilidad de las células de la granulosa a la acción de la FSH y la LH [14].
| Parámetro Nutricional | Nivel Objetivo Post-Destete | Impacto Fisiológico Directo | Referencia |
|---|---|---|---|
| Consumo Diario de Alimento | 2.8 a 3.2 kg/día | Restablecimiento del balance energético neto | [14] |
| Energía Metabolizable (EM) | 3,250 a 3,350 kcal/kg | Picos insulínicos e inducción de IGF-1 | [14] |
| Lysina Digestible Sttd | 0.85% a 0.95% | Síntesis proteica y desarrollo tisular uterino | [3] |
| Adición de Dextrosa/Azúcar | 2.0% a 5.0% de la ración | Incremento pulsátil de LH y reducción de atresia | [14] |
Calibración de la Condición Corporal y Grasa Dorsal al Destete
El ajuste individual del consumo de pienso mediante el uso de calibradores de espesor de tocino dorsal previene la emaciación durante la lactancia previa. Las cerdas que llegan al destete con menos de 12 mm de tocino dorsal sufren retrasos severos en la presentación del celo y presentan tasas de ovulación deficientes [9]. El calibrador de espalda permite categorizar visual y cuantitativamente a las hembras para asignar planos de alimentación correctivos inmediatos.
Impacto del Fotoperiodo Regulado en la Expresión Hormonal Circadiana
La provisión de 16 horas continuas de luz con intensidad superior a 300 lux suprime la síntesis de melatonina y acorta el intervalo destete-celo. La melatonina, secretada por la glándula pineal durante las horas de oscuridad, ejerce un efecto inhibitorio sobre la liberación de GnRH en el porcino [18]. Mantener un fotoperiodo extendido en la sala de gestación e inseminación simula las condiciones de días largos de primavera, bloqueando el anestro estival inducido por el fotoperiodo decreciente.
Causas de Anestro y Celos Débiles en Hembras Porcinas
El anestro patológico y la baja intensidad estral en porcinos son desencadenados por el déficit energético en lactancia, el estrés térmico estival y la presencia de micotoxinas. La ausencia de signos de celo o la presentación de celos silenciosos representan una de las mayores fuentes de ineficiencia biológica en las explotaciones porcinas comerciales [17].
Fisiopatología del Anestro Estival y Estrés Térmico Ambiental
Temperaturas ambientales superiores a 25 °C inducen hipertermia corporal, disminuyen el apetito voluntario e inhiben la pulsatilidad de gonadotropinas. Cuando la temperatura de la sala supera la zona termoneutra de la cerda (18-22 °C), el animal reduce su consumo de alimento para disminuir el incremento calórico de la digestión [19]. Esta desnutrición inducida por el calor bloquea la liberación de LH, derivando en anestro anovulatorio post-destete.
Impacto de Micotoxinas Estrogénicas en la Reproducción Porcina
La ingestión de zearalenona en concentraciones superiores a 0.2 ppm provoca vulvovaginitis, hipertrofia uterina y falso celo permanente. La zearalenona es una micotoxina producida por hongos del género Fusarium cuya estructura química se une competitivamente a los receptores de estrógeno en el tracto reproductor de la cerda [21]. Esto genera signos clínicos de pseudogestación, atrofia folicular e infecundidad prolongada.
Terapia Acuopuntural y Uso de Profilaxis Hipertónica
La administración subcutánea de glucosa hipertónica en el punto Bahuai acorta el anestro post-destete y mejora la vitalidad de la descendencia. Esta técnica de estimulación neuroendocrina estimula la circulación sanguínea local e induce la liberación reflexógena de gonadotropinas endógenas [2].
| Causa Primaria de Anestro | Agente Etiológico / Mecanismo | Diagnosticador / Indicador | Estrategia de Control Verificada | Referencia |
|---|---|---|---|---|
| Déficit Energético Severo | Pérdida de > 15% de peso corporal en lactancia | Tocino dorsal < 10 mm al destete | Incrementar densidad calórica y usar skip a heat | [17] |
| Estrés Térmico Estival | Temperatura ambiente > 25 °C en maternidad | Caída del consumo a < 4.5 kg/día | Instalar paneles evaporativos y goteo de paletas | [19] |
| Micotoxicosis por Zearalenona | Contaminación del pienso (> 0.2 ppm) | Vulvovaginitis en lechonas y nulíparas | Adicionar secuestrantes enzimáticos de micotoxinas | [21] |
| Falta de Estímulo Masculino | Ausencia o lejanía del verraco recelador | Reflejo de inmovilidad ausente | Contacto directo diario con machos en grupo | [5] |
| Anestro Quístico Ovárico | Persistencia de folículos por falla de LH | Imposibilidad de preñez y ninfomanía | Aplicar 500 UI de hCG o agonistas de GnRH | [8] |
Impacto de los Días No Productivos por Fallas de Celo
Cada día no productivo adicionado por retraso en el servicio representa un coste económico directo de 2.50 a 4.00 USD por cerda alojada. Los días no productivos (DNP) se definen como aquellos días en los que la cerda reproductora no está ni en gestación ni en lactancia [10]. La mala detección de celos, las repeticiones tardías no detectadas y el anestro post-destete son las variables con mayor peso en el incremento indeseado de los DNP en la granja.
Diagnóstico Ultrasonográfico Precoz para Reducción de Días Abiertos
La ecografía en tiempo real efectuada a los 20 a 24 días post-coito detecta cerdas vacías antes del retorno al celo fisiológico. El examen ultrasonográfico permite visualizar las vesículas embrionarias (imágenes anecoicas circulares) en el cuerno uterino [20]. La identificación temprana de hembras no gestantes permite reintroducirlas de inmediato a programas de estimulación hormonal o proceder a su descarte selectivo.
Estrategias de Descarte y Reestructuración de Paridad en la Granja
El monitoreo riguroso del historial de repeticiones estrales determina el descarte técnico de hembras con más de dos fallas consecutivas. Mantener cerdas de baja fertilidad o con anestro crónico deteriora la estructura de partos del hato y reduce la producción de lechones por cerda/año [10]. Un programa reproductivo eficiente debe mantener un flujo constante de vaquillas/nulíparas de reemplazo (40-45% de reposición anual) para reemplazar las bajas por descarte zootécnico.
Preguntas Frecuentes (FAQ)
Q: ¿Cómo se utiliza el Altrenogest para sincronizar el celo en cerdas nulíparas? A: Se administra oral e individualmente a razón de 20 mg/día por hembra durante 18 días consecutivos, manifestándose el celo entre 4 y 6 días tras suspender la aplicación [17].
Q: ¿Cuál es el papel del macho celador en la detección efectiva del celo porcino? A: El macho emite feromonas salivales que estimulan el sistema vomeronasal de la cerda, induciendo el reflejo de inmovilidad cuando la hembra se encuentra en estro fisiológico [5].
Q: ¿Cómo afecta el estrés térmico el retorno al celo post-destete? A: Temperaturas superiores a 25 °C deprimen el consumo de alimento en lactancia, desencadenando un déficit energético severo que inhibe la pulsatilidad de LH y prolonga el anestro [19].
Q: ¿Qué ventajas aporta el protocolo de saltar celo en primerizas? A: Permitir una pausa de 21 días recupera la condición corporal y el desarrollo mamario de la nulípara, incrementando entre 0.7 y 1.2 lechones el tamaño de camada posterior [11].
Q: ¿Cómo ayuda el diagnóstico precoz con ecografía a reducir los días no productivos? A: Detecta cerdas vacías a los 20-24 días post-inseminación, permitiendo reestimular el celo o descartar animales infértiles antes de acumular costos de mantenimiento inútiles [20].
Fuentes y Referencias Técnicas
Este artículo fue construido utilizando exclusivamente conocimiento empírico validado de la comunidad de expertos:
-
Sheelagh Pentony: Alltech Poultry Advantage: Natural Solutions for Profitability
-
Julio Vilaboa Arroniz, Pablo Díaz Rivera y Octavio Ruiz Rosado: Condiciones de sacrificio bovino en Papaloapan, Veracruz
-
Mario Cuesta Mazorra, Gianko Alberto Fernández Prieto y Alcides Pérez Bello: Acupuntura con glucosa mejora celo y crías en cerdas
-
A.C.O. Evans y J.V. ODoherty: Factores que afectan la pubertad en cerdas primerizas
-
MVZ Jorge Perea Gayosso: Clasificación del Reflujo de Semen en Cerdas Post-IA
-
Joaquín Spörke: Optimización de Detección de Celo con Machos Celadores en Grupo
-
José Manuel Sueiro Regueira: Estimulación y detección de celo en cerdas
-
MVZ. Gerardo Gómez López: Inducción del celo en cerdas: Métodos y resultados de campo
-
Julia Sanz Moreno: Protocolos de sincronización en cerdas
-
Prof. Mike Tokach: Evaluación de Condición Corporal en Cerdas con Calibrador
-
Joaquín Spörke: Claves para la eficiencia reproductiva porcina
-
Dr. Francisco De Grau: Estrategias para Reducir Días No Productivos en Cerdas
-
Fernando Bártoli: Saltar Celo en Cerdas Primerizas: Beneficios y Protocolo
-
Prof. Mike Tokach: Alimentación post-destete y retorno al celo en cerdas
-
Hugo Torno; Claudia Gerber; Yanina Laksman; Rebelo da Fonseca, Gustavo; Agustin Napoli; Marcelo Miguez.; Oscar Alvarez; Claudio Bulgarella; Carlos Pendola; Carretero Maria.: Comparación de protocolos de detección de celo en cerdas
-
PIC México: Uso de hormonas en cerdas de reemplazo
-
Videla Dorna, I. y Wüst, A.: Uso de gonadotrofinas exógenas en cerdas para sincronización
-
Ing. Daniel Carreon Ochoa: Inducción de celo en cerdas post-destete con PGF2 y GnRH
-
Sara Williams: GnRH y eCG: Optimización reproductiva en cerdas post-destete
-
Rafael T. Pallás Alonso: Causas de anoestro y celos débiles en cerdas
-
MV. Rafael Danilo Montero Guerere: Ciclos Circadianos: Reloj Biológico y Fisiología Porcina
-
Rafael T. Pallás Alonso: Protocolo de Altrenogest en cerdas nulíparas: Dosis y duración
-
M.V. Marcelo Riveiro: Impacto del calor en la reproducción porcina
-
MVZ Dr. Omar Bellenda: Diagnóstico temprano de gestación en cerdas
-
Héctor Patullo: Anestro en cerdas: causas nutricionales y manejo
-
Maria Suarez del Cerro, Tuti Stoppani, Marcos Pobliti, María José Beribe, Federico Allegroni, Sol Pillado, Olinda Briski, Daniel Salamone, Rafael Fernandez Martin: Peso óptimo para sincronización de celo en cachorras porcinas
-
Javier Hernández Pérez: Productos Hormonales y Eficiencia en Sincronización de Cerdas
-
Carlos Fernando Aristizabal Ceballos: Detección de celo sin verraco: desafíos y soluciones
-
Marcela Saad: Métodos de sincronización de celo en cerdas
-
Kevin Cervantes Escobar: Sincronización de celo en cerdas: Progesterona oral
-
Jonathan Mendioza: Programación del Celo en Cerdas para Producción Eficiente
-
Nelson Alberto González Restrepo: Periodo refractario: impacto en la detección de celo porcino
-
Erik Bustamante: Estrategias para inducir el celo en cerdas
-
Marcelo A Pettinaroli: Sincronización de celo con PG 600 o Duogestal
-
andres sandoval: Reflejo de inmovilidad: clave para la inseminación en cerdas